استخر آبشور
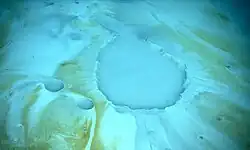
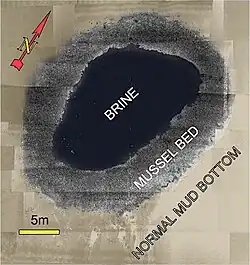
استخر آبشور، که گاهی دریاچه زیرآبی، دریاچه ژرفایی یا دریاچه آبشور نیز نامیده میشود، حجمی از آبنمک است که در یک فرورفتگی بستر دریا انباشته میشود. این استخرها تودههایی از آب با چگالی بالا هستند که شوری آنها معمولاً سه تا هشت برابر بیشتر از اقیانوس پیرامون است. استخرهای آبشور معمولاً در زیر یخ قطبی دریا و در اعماق اقیانوس یافت میشوند. نوع زیر یخ از طریق فرآیندی به نام دفع آبشور شکل میگیرد.[۱] برای استخرهای آبشور ژرفادریایی، نمک برای افزایش شیب شوری ضروری است. نمک میتواند از یکی از دو فرایند تأمین شود: انحلال رسوبات بزرگ نمکی از طریق زمینساخت نمک[۲] یا آبشور گرمایشیافته زمینگرمایی که از مراکز گسترش زمینساختی بیرون میآید.[۳]
آبشور اغلب دارای غلظتهای بالایی از هیدروژن سولفید و متان است که انرژی لازم برای جانداران شیمیوسنتزی ساکن نزدیک استخر را فراهم میکند. این موجودات اغلب از شدیددوست و همزیستان هستند.[۴][۵] استخرهای آبشور ژرفادریایی و قطبی به دلیل شوری بالا و ویژگیهای بیاکسیژن برای جانوران دریایی سمی هستند[۱] که میتواند نهایتاً به شوک سمی و احتمالاً مرگ منجر شود.
ویژگیها
استخرهای آبنمک را گاهی «دریاچه» های کف اقیانوس مینامند، زیرا آبنمک متراکم بهآسانی با آب دریای بالایی خود مخلوط نمیشود و رابط مشخصی میان دو توده آبی پدیدمیآورد. مساحت این استخرها از کمتر از ۱ متر مربع (۱۱ فوت مربع) تا پهناوری چون ۱۲۰-کیلومتر-مربع (۴۶-مایل-مربع) حوضه اورکا متغیر است.[۲] شوری بالا چگالی آبنمک را افزایش میدهد و بدین ترتیب سطح و ساحلی برای استخر فراهم میکند. بسته به غلظت، برخی کانیها مانند باریتین (باریم سولفات) از آبنمک رسوب میکنند و پوستههای بلورین در اطراف لبه استخر تشکیل میدهند.[۶]
به دلیل چگالی بالای آبنمک و نبود جریانهای اختلاطی در اقیانوس عمیق، استخرهای آبنمک اغلب بیاکسیژن میشوند و برای جانداران تنفسی کشندهاند.[۷] با این حال، استخرهایی که از شیمیوسنتز پشتیبانی میکنند، در ساحلهای خود زندگی میآفرینند؛ جایی که باکتریها و همزیستان آنها در نزدیکی بیشترین غلظت آزادسازی مواد مغذی رشد میکنند.[۸] لایههای پراکنده و سرخرنگی را میتوان بالاتر از رابط متراکم آبنمک مشاهده کرد که ناشی از تراکم بالای هالوآرکائه (باستانیان نمکدوست) است که این محیطها از آنها حمایت میکنند.[۹] این ساحلها محیطهای پیچیدهای هستند با تغییرات چشمگیر در شوری، غلظت اکسیژن، pH و دما در یک مقیاس عمودی نسبتاً کوچک. این گذارها انواع گوناگونی از جایگاههای زیستمحیطی فراهم میکنند.[۱۰][۱۱]
شکلگیری
حوضچههای آبنمک از سه روش اصلی پدید میآیند: دفع آبنمک در زیر یخ دریا، انحلال نمکها در آب بستر اقیانوس از طریق زمینساخت نمک، و گرمایش زمینگرمایی آبنمک در مرزهای زمینساختی و تفتگاهها.
- دفع آبنمک: هنگامی که آب دریا منجمد میشود، نمکها در ساختار بلوری یخ جای نمیگیرند و از آن رانده میشوند. نمکهای راندهشده، آبنمکی سرد و سنگین پدیدمیآورند که به زیر یخ دریا و سپس به بستر اقیانوس فرومیرود. دفع آبنمک در مقیاس اقیانوسی با شکلگیری ژرفاب اقیانوس اطلس شمالی (NADW) و بستراب جنوبگان (AABW) پیوند دارد که نقش مهمی در گردش دماشوری (THC) جهانی ایفا میکنند. در مقیاس محلی، آبنمک راندهشده در فرورفتگیهای بستر دریا جمع میشود و حوضچهای از آبنمک میسازد. در غیاب اختلاط، آبنمک ظرف چند هفته به محیطی بیاکسیژن تبدیل میشود.[۱]
- زمینساخت نمک: در دوران میانی ژوراسیک، خلیج مکزیک دریایی کمعمق بود که خشکید و لایهای ضخیم از نمک و کانیهای برگرفته از آب دریا تا ضخامت ۸ کیلومتر برجای گذاشت. آنگاه که خلیج دوباره پر از آب شد، لایه نمک بهوسیله رسوبات انباشتهشده روی آن از انحلال محافظت گردید. لایههای بعدی رسوب آنقدر سنگین شدند که آغاز به تغییر شکل و جابهجا کردن لایه نمک انعطافپذیر زیرین کردند. در برخی نقاط، لایه نمک اکنون در بستر دریا یا نزدیک به آن به سطح رسیدهاست و میتواند با آب دریا برهمکنش داشته باشد. در جاهایی که آب دریا با نمک تماس مییابد، رسوبات انحلال مییابند و آبنمک پدیدمیآورند. محل این رسوبات نمکی دوران ژوراسیک که به سطح رسیدهاند با رهاسازی متان نیز پیوند دارد و ویژگیهای شیمیایی حوضچههای آبنمک اعماق اقیانوس را شکل میدهد.[۲]
- گرمایش زمینگرمایی: در مراکز گسترش زمینساختی اقیانوسی زمین، صفحات از یکدیگر دور میشوند و به ماگمای نو اجازه میدهند که برخاسته و سرد شود. این فرایند در پیدایش بستر جدید دریا نقش دارد. این پشتههای میانی اقیانوسی به آب دریا امکان میدهند که از طریق شکافها به پایین نفوذ کند و با کانیها تماس یافته، آنها را بحل کند. در دریای سرخ، برای نمونه، آب عمیق دریای سرخ (RSDW) در شکافهای ایجادشده در مرز زمینساختی نفوذ میکند. این آب، نمکهای رسوبات پدیدآمده در دوران میوسن را — همانند رسوبات دوران ژوراسیک در خلیج مکزیک — انحلال میدهد. آبنمک حاصل سپس در منطقه فعال زمینگرمایی بالای اتاقک ماگما فوق داغ میشود. آبنمک گرمشده به بستر دریا بالا میآید، سرد میشود و در فرورفتگیها بهصورت حوضچههای آبنمک تهنشین میشود. محل این حوضچهها نیز با رهاسازی متان، هیدروژن سولفید و دیگر ترکیبات شیمیایی پیوند دارد که بستر مناسبی برای فعالیت شیمیوسنتزی فراهم میآورد.[۳]
پشتیبانی از حیات
به دلیل چگونگی شکلگیری و نبود اختلاط، استخرهای آبنمک بیاکسیژن هستند و برای جانداران هوازی، از جمله بیشتر یوکاریوتها و جانداران چندسلولی، کشندهاند. هنگامی که جانداری وارد یک استخر آبنمک میشود، تلاش میکند محیط را «تنفس» کند و به دلیل نبود اکسیژن دچار هیپوکسی مغزی و به دلیل شوری بیش از حد دچار شوک سمی میشود. جانداری که نتواند به اندازه کافی به لبه استخر بازگردد، به سرعت میمیرد.[۱۲] هنگامی که زیردریاییها یا خودروهای کنترلازراهدور زیرآبی (ROV) این استخرها را بررسی میکنند، مشاهده میشود که کف آنها پر از ماهی، خرچنگ، دوجورپایان و دیگر جانداران مختلفی است که بیش از حد به درون آبنمک وارد شده و جان باختهاند. اجساد جانداران به دلیل ماهیت بیاکسیژن استخر، سالها بدون فساد در آبنمک نگهداری میشوند.[۸]
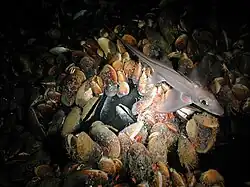
با وجود شرایط دشوار، حیات به شکل ماکروفونهایی مانند دوکفهایها میتواند در نوار باریکی در امتداد لبه استخر آبنمک یافت شود. یک جنس و گونه نو از دوکفهایها به نام Apachecorbula muriatica در لبه استخر آبنمک «والدیویا دیپ» در دریای سرخ کشف شدهاست.[۱۳] نمونههایی از ماکروفونها در فصل مشترک استخرهای آبنمک و آب دریا نیز ثبت شدهاند. دودکشهای گوگردی غیرفعال با اپیفونهایی مانند پرتاران و هیدروئیدها همراه دیده شدهاند. جانوری مانند شکمپایان، پرتاران کاپیتلید و حلزونهای قلهای نیز در ارتباط با استخرهای آبنمک دریای سرخ یافت شدهاند. اینگونهها معمولاً از همزیستان میکروبی یا لایههای باکتریایی و آواری تغذیه میکنند.[۱۴]
در حالی که جانداران معمولاً میتوانند در پیرامون استخرهای آبنمک شکوفا شوند، همواره از خطر در امان نیستند. یکی از دلایل احتمالی این است که زمینلغزشهای زیردریایی میتوانند استخرهای آبنمک را تحت تأثیر قرار داده و موجهایی از آبنمک بیششور به حوضههای پیرامون بریزند و بدینسان جوامع زیستی ساکن آن مناطق را به شدت آسیب برسانند.[۱۵]
با وجود ماهیت دشوارپذیر، استخرهای آبنمک میتوانند زیستگاهی فراهم کنند که جانداران در آن شکوفا شوند. استخرهای آبنمک اعماق دریا اغلب با فعالیت تراوش سرد همراه هستند و به حیات شیمیوسنتزی اجازه میدهند که رشد کند. متان و هیدروژن سولفید آزادشده از تراوهها توسط باکتری پردازش میشود که رابطه همزیست با جانوری مانند صدفهای سیاه تراوه دارد.[۱۶] صدفهای سیاه تراوه دو منطقه متمایز ایجاد میکنند: منطقه درونی که در لبه استخر قرار دارد، بهترین شرایط فیزیولوژیک را فراهم میکند و رشد بیشینه را ممکن میسازد؛ در حالی که منطقه بیرونی نزدیک به مرز میان بستر صدفها و کف دریای پیرامون است و این ناحیه بدترین شرایط را دارد و سبب میشود این صدفها اندازه و تراکم بیشینه کمتری داشته باشند.[۱۷] این بومسازگان به انرژی شیمیایی وابسته است و در مقایسه با تقریباً تمام حیات دیگر روی زمین، هیچ وابستگی به انرژی خورشید ندارد.[۱۸]
بخش مهمی از بررسی محیطهای حدی مانند استخرهای آبنمک، کارکرد و بقای میکروبها است. میکروبها به پشتیبانی از جامعه زیستی بزرگتر پیرامون محیطهایی مانند استخرهای آبنمک کمک میکنند و برای درک بقای دیگر شدیددوستها کلیدی هستند. زیستلایهها در ایجاد میکروبها نقش دارند و پایهای محسوب میشوند که دیگر ریزجانداران میتوانند در محیطهای حدی بر اساس آن بقا یابند. پژوهش در زمینه رشد و کارکرد زیستلایههای مصنوعی شدیددوست به دلیل دشواری بازآفرینی محیطهای حدی اعماق دریا که در آن یافت میشوند، کند پیش رفتهاست.[۱۹]
تنوع میکروبی و ترکیب جامعه
ترکیب میکروبی
میکروبشناسی حوضچههای آبنمک دریای سرخ از جمله موضوعاتی است که با بهرهگیری از متاژنومیک و امپلیکون توالییابی بهصورت گستردهای بررسی شدهاست.
تحلیل متاژنومیک
الگو:متاژنومیک تحلیل متاژنومیک رویکردی نیرومند برای شناسایی جوامع میکروبی در محیطهای گوناگون است. پیشتر، تحلیل ژنتیکی نیازمند داشتن میکروارگانیسمها در کشت بود که این امر مشکلساز است زیرا بیشتر میکروارگانیسمهای موجود در طبیعت کشت داده نشدهاند.[۲۰] متاژنومیک این مشکلات را از میان برمیدارد و به پژوهشگران امکان میدهد تا مستقیماً جوامع میکروبی نمونهبرداریشده از محیط موردنظر را بررسی و از نظر ژنتیکی توصیف کنند.[۲۱] تحلیلهای متاژنومیک جوامع میکروبی پیشتر ناشناختهای را در چندین استخر آبشور آشکار ساختهاست.[۲۲] روشهای رایج برای شناسایی جوامع میکروبی دریایی از طریق تحلیل متاژنومیک شامل نمونهبرداری، فیلتراسیون و استخراج، توالییابی دیانای و مقایسه با پایگاههای دادهاست.
شاخههای اصلی
ترکیب ردهبندی جوامع اصلی میکروبی یافتشده در آتلانتیس II و Discovery، بدون احتساب گونههای فرعی یا ناشناخته برای پرهیز از ابهام، در جدول زیر که بر پایه دادههای مقالات اصلی تهیه شده خلاصه گردیدهاست.[۲۳][۲۴][۲۵]
| حوزه | میکروبها |
|---|---|
| باکتری | [راسته] Actinomycetales[۲۵] |
| [خانواده] Microbacteriaceae[۲۳] | |
| [جنس] Bacillus[۲۴] | |
| [شاخه] Bacteroidetes[۲۵] | |
| [رده] Flavobacteria[۲۳] | |
| [شاخه] Candidatus division od1[۲۳] | |
| [شاخه] Chloroflexi[۲۵] | |
| [رده] Anaerolineae[۲۳] | |
| [رده] SAR202 clade[۲۳] | |
| [شاخه] Cyanobacteria[۲۳] | |
| [شاخه] Deinococcota[۲۵] | |
| [جنس] Meiothermus[۲۴] | |
| [رده] Deferribacteres[۲۳] | |
| [شاخه] Firmicutes[۲۵] | |
| [راسته] Thermotoaea[۲۵] | |
| [رده] Candidatus Scalindua[۲۳] | |
| [رده] Candidatus Brocadiales l[۲۳] | |
| [رده] Alphaproteobacteria[۲۳][۲۵] | |
| [جنس] Phyllobacterium[۲۴] | |
| [جنس] Afipia[۲۴] | |
| [جنس] Bradyrhizobium[۲۴] | |
| [راسته] SAR11 (Pelagibacterales)[۲۳] | |
| [رده] Betaproteobacteria[۲۳][۲۵] | |
| [جنس] Rhodoferax[۲۴] | |
| [جنس] Malikia[۲۴] | |
| [جنس] Cupriavidus[۲۴] | |
| [جنس] Ralstonia[۲۴] | |
| [رده] Deltaproteobacteria[۲۳][۲۵] | |
| [رده] Gammaproteobacteria[۲۵] | |
| [راسته] Alteromonadales[۲۳] | |
| [راسته] Oceanospirillales[۲۳] | |
| [جنس] Acinetobacter[۲۴] | |
| [جنس] Alkanindiges[۲۴] | |
| [جنس] Stenotrophomonas[۲۴] | |
| آرکه | [رده] Group c3[۲۳] |
| [رده] Marine benthic group a (MBG-A)[۲۳] | |
| [رده] Marine benthic group b (MBG-B)[۲۳] | |
| [رده] Marine group I (MGI)[۲۳] | |
| [رده] Misc crenarchaeotic group[۲۳] | |
| [رده] Psl12[۲۳] | |
| [راسته] Desulfurococcales[۲۵] | |
| [راسته] Sulfolobales[۲۵] | |
| [راسته] Thermoproteales[۲۵] | |
| [شاخه] Euryarchaeota[۲۵] | |
| [رده] Archaeoglobi[۲۳] | |
| [راسته] Archaeoglobales[۲۵] | |
| [راسته] Halobacteria[۲۳] | |
| [راسته] Halobacteriales[۲۵] | |
| [رده] Methanomicrobia[۲۳] | |
| [راسته] Methanobacteriales[۲۵] | |
| [راسته] Methanocellales[۲۵] | |
| [راسته] Methanococcales[۲۵] | |
| [راسته] Methanomicrobiales[۲۵] | |
| [راسته] Methanopyrales[۲۵] | |
| [راسته] Methanosarcinales[۲۵] | |
| [رده] Thermoplasmata[۲۳] | |
| [جنس] Candidatus Korarchaeum cryptofilum[۲۵] | |
| [جنس] Candidatus Caldiarchaeum[۲۵] |
نبود اختلاط با ستون آب در ترکیب با شوری بالا، بیاکسیژنی، دماهای شدید آب و فشار هیدروستاتیک، منجر به شکلگیری اجتماعات میکروبی ویژهای میشود که مختص این محیطها هستند.[۲۶]
چالشها
سطوح بالای شوری چالشهایی برای نگهداشت آب توسط سلولها و پیامدهای ناشی از آن بر تورژسانس و کارکرد سلولی پدیدمیآورد.[۲۶] استخرهای آبنمک همچنین اثرات یونی، کاسموتروپیک و کائوتروپیک بر سلولها میگذارند که چالشهای بیشتری برای بقای جانداران در این محیطهای فرین ایجاد میکند.[۲۷][۲۸]
افزون بر این، نبود اکسیژن توانایی جانداران را برای تولید انرژی دشوارتر میکند، زیرا اکسیژن پذیرنده الکترونی است که بیشترین بازده انرژی را دارد.[۲۹]
سازگاریها
موجودات زیستی راهکارهای گوناگونی برای رویارویی با چالشهای ناشی از شوری بالا پدیدآوردهاند. به منظور کاهش خطر اثرات کائوتروپیک بر سلولها، هالوآرکهآ رویکرد «نمک-درون» و راهبرد «حلشونده سازگار» را به کار میبرند که غلظت یونی درونسلولی (عمدتاً K+) را افزایش میدهد تا فشار اسمزی را کاهش دهد؛ بدین ترتیب این موجودات کل دستگاه سوختوسازی خود را برای حفظ غلظت نمک درون سلولهایشان سازگار کردهاند.[۳۰]
در برخی حوضچههای آبنمک، دمای بالای آب و فشارهای هیدرواستاتیک زیاد منجر به پیدایش موجودات پیزوفیل میشود که مولکولهای محافظ حرارتی (مانند هیدروکسی کتون) میسازند تا از واسرشتی پروتئینها جلوگیری کرده و خطر خشکشدگی را کاهش دهند.[۳۱][۳۲][۳۳][۳۴]
سازگاری مهم دیگر، بهرهگیری از پذیرندههای الکترون جایگزین برای تولید انرژی است؛ از جمله آهن، منگنز،[۳۵] سولفات، گوگرد عنصری،[۳۶] کربن دیاکسید، نیتریت و نیترات.[۳۷]
جانورانی نیز در این حوضچههای آبنمک بیاکسیژن یافت شدهاند؛ از جمله نخستین متازوآی شناختهشده از این محیطها که در سال ۲۰۱۰ (۱۳۸۸) توسط دانووارو و همکاران توصیف شد.[۳۸] بسیاری از سایر گونههای این محیطهای حدی هنوز ناشناخته ماندهاند.[۳۹][۴۰]
چرخه مواد مغذی در استخرهای آبشور
ترکیب شیمیایی و اهمیت متابولیکی
همانطور که از نامشان پیداست، استخرهای آبشور یا حوضههای عمیق هایپرشور بیاکسیژن (DHABs) با غلظت بسیار بالای نمک و شرایط بیاکسیژن مشخص میشوند. غلظت یونهای سدیم، کلرید، منیزیم، پتاسیم و کلسیم در استخرهای آبشور فوقالعاده بالاست. به دلیل نرخ پایین اختلاط میان آب دریا در لایههای بالایی و آب شور، آب این استخرها در حدود ده سانتیمتر اول بیاکسیژن میشود.[۴۱] با وجود تفاوتهای بزرگ در ترکیب زمینشیمیایی هر استخر بهطور جداگانه،[۴۱] و نیز لایهبندی شیمیایی شدید درون یک استخر واحد،[۴۲] روندهای شیمیایی مشترکی وجود دارند. لایههای عمیقتر DHABها شورتر، گرمتر، اسیدیتر و بیاکسیژنتر از لایههای پیشین خواهند بود.[۴۳][۴۴] غلظت فلزات سنگین (Fe, Mn, Si, Cu) و برخی مواد مغذی (NO۲−، NH۴+، NO۳− و PO۴−) با افزایش عمق افزایش مییابد، در حالی که غلظت SO۴− و کربن آلی و معدنی با عمق کاهش مییابد.[۴۲] با اینکه همه این روندها تا حدی در DHABها مشاهده میشوند، شدت و فاصلهای که این روندها در آن تأثیر میگذارند میتواند از یک متر تا دهها متر در عمق متفاوت باشد.[۴۱]
لایهبندی شدید درون DHABها موجب افزایش تنوع متابولیکی میکروبی و تفاوت در غلظت سلولها میان لایهها شدهاست. بیشترین زیستتوده سلولی در مرز میان لایههای شیمیایی متمایز یافت شدهاست (با بیشترین غلظت سلولها در مرز میان آبشور و سطح).[۴۵] میکروبها از شیبهای شیمیایی تند میان لایهها بهره میگیرند تا سوختوسازهای خود را از نظر ترمودینامیکی مطلوبتر سازند.[۴۶]
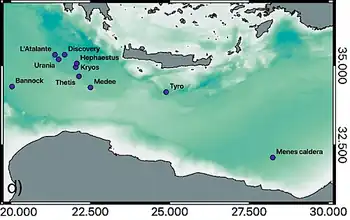
چهار DHAB که بهطور گسترده مطالعه شدهاند عبارتند از: اورانیا، بانوک، حوضه لاتالانت و دیسکاوری. هر چهار استخر آبشور در دریای مدیترانه قرار دارند، اما ویژگیهای شیمیایی متمایزی دارند: اورانیا دارای بالاترین غلظت سولفوریک اسید مشاهدهشدهاست (حدود ۱۶ میلیمول) — در مقایسه با آب دریای معمولی (۲٫۶×۱۰−۶ mM) یا دومین غلظت بالای [HS–] در حوضه بانوک (حدود ۳ میلیمول).[۴۷][۴۵] دیسکاوری دارای غلظت بسیار پایین Na+ (۶۸ میلیمول) و غلظت بسیار بالای Mg۲+ (۴٬۹۹۵ میلیمول) است — در مقایسه با آب دریای اطراف که غلظتهایی به ترتیب ۵۲۸ میلیمول و ۶۰ میلیمول دارد.[۴۵][۴۸] حوضه لاتالانت دارای غلظت بالای SO۴۲- در مقایسه با سایر استخرها است. این تنوع شدید در شرایط محیطی باعث میشود هر استخر آبشور ترکیب متابولیکی منحصر به فردی داشته باشد.
متابولیسمهای اصلی و چرخش مواد مغذی
چرخه کربن
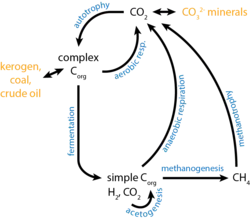
در حالی که در ابتدا تصور میشد ماده آلی ذرهای (POM) منبع مهمی از کربن برای DHABها بهشمار میرود، به دلیل عمق این مخازن، غلظت ماده آلی ذرهای که به آنها میرسد به اندازهای که در ابتدا پنداشته میشد قابلتوجه نیست.[۴۱] اکنون تصور میشود که بیشتر کربن تثبیتشده از خودتغذیگی میآید؛ بهویژه از متانزایی. اندازهگیریهای مستقیم تولید متان در DHABها شواهد مولکولی گستردهای از وقوع متانزایی در این محیطها فراهم آوردهاست.[۴۵] تحلیلهای پروتئومیکی نیز با شناسایی آنزیم RuBisCO در DHABهای گوناگون، بر حضور متانزایی صحه میگذارند.[۴۹] جالب آن است که پیشنهاد شده بهجای متانزایی با CO2 یا متانزایی استوکلاستیک، پروکاریوتهای موجود در DHABها از متانزایی متیلوتروفیک بهره میگیرند؛ چرا که این روش بازده انرژی بالاتری دارد[۵۰] و واسطههای آن میتوانند بهعنوان اسمو-محافظ مورد کاربرد قرار گیرند.[۵۱]
چرخه نیتروژن
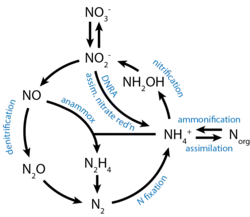
یکی از ویژگیهای کلیدی سوختوسازی در حوضچههای ژرفدریایی شورابفشان (DHABs)، کاهش اتلافی نیتروژن است. این ویژگی عمدتاً به دلیل مطلوبیت ترمودینامیکی سوختوسازهای مبتنی بر نیتروژن در محیطهای بیهوازی است. در حوضه بانوک و حوضه لاتالانت، مسیرهای آناموکس و نیتراتزدایی با بهرهگیری از ترکیبی از فناوریهای رونوشتشناسی و ردیابی مستقیم ایزوتوپ شناسایی شدهاند.[۵۲] سایر حوضچههای ژرفدریایی شورابفشان با بهرهگیری از روشهای فرارونوشتشناسی برای یافتن مسیرهای آناموکس بررسی شدهاند اما نتایج مثبت اندکی به دست آمدهاست که میتواند ناشی از محدودیتهای حساسیت رونوشتشناسی باشد. در لایههای عمیقتر این حوضچهها، تثبیت نیتروژن و جذب آمونیوم مشاهده شدهاست. این مسیرهای احیایی به انرژی فراوانی نیاز دارند و عمدتاً توسط متانوژنها برای ساخت اسموپروتکتانتها انجام میشوند.[۵۳]
چرخه گوگرد
به دلیل غلظت بالای سولفات (بهویژه در حوضه اورانیان)، کاهش سولفات در چرخه بیوژئوشیمی محیطهای بیاکسیژن عمیق دریایی (DHABs) اهمیت فوقالعادهای دارد. بالاترین نرخ کاهش سولفات معمولاً در عمیقترین لایههای این محیطها یافت میشود که در آنها پتانسیل اکسید و احیا پایینترین مقدار خود را دارد.[۴۶] باکتریهای کاهنده سولفات در آبنمکهای Kebrit Deep, Nereus Deep, Erba Deep, Atlantis II Deep و Discovery Deep شناسایی شدهاند.[۵۴] مسیرهای اکسایش گوگرد به بستن حلقههای بیوژئوشیمیایی گوگرد در این محیطها کمک میکنند. سه مسیر اصلی اکسایش گوگرد که احتمالاً در این محیطها وجود دارند عبارتند از:
- مجتمع چندآنزیمی اکسایش گوگرد که میتواند سولفید یا تیوسولفات را به سولفات اکسید کند (با گوگرد عنصری یا سولفیت بهعنوان واسطه).
- مجتمع سولفید/کینون که هیدروژن سولفید را به گوگرد عنصری اکسید میکند.
- پلیسولفید ردوکتاز که گوگرد رسوبکرده را به سولفید کاهش میدهد.
ترکیب مسیر دوم و سوم موجب افزایش بازده انرژی میشود.[۵۵] افزون بر این، برخی گروههای جدید از دریاچههای شور جداسازی شدهاند که میتوانند بهصورت بیهوازی گوگرد را با بهرهگیری از استات، پیروات، فرمات یا هیدروژن بهعنوان تنها دهندههای الکترون تنفس کنند.[۵۶]
همزیستی میکروبی
غلظت بالایی از باکتریها در استخرهای آبشور وجود دارد که نقشهای اساسی در بومسازگان ایفا میکنند؛ از جمله شرکت در روابط الگو:همزیستی یا عملکردن بهعنوان منبع غذایی برای چندین موجود در این زیستگاه. نمونههایی از این روابط عبارتند از: کرمهای لولهای و صدفها که رابطه همزیستی با بسیاری از این باکتریها برقرار میکنند تا انرژی شیمیایی حاصل از هیدروژن سولفید را تبدیل کنند و در ازای آن، غذا فراهم میسازند تا تولیدمثل و رشد باکتریها را ممکن سازند؛[۵۷] یا کپهماهیان که زیستگاه امنی برای باکتریهای تغذیهکننده از متان فراهم میکنند و خود نیز از همزیستان شیمیوسنتزکننده و تثبیتکننده کربن که در بافتهای آبششهایشان ساکن هستند، بهرهمند میشوند.[۵۸] بنابراین، این روابط همزیستی با باکتریها به موجودات زنده امکان میدهد که در این محیطهای سختتر، فراوان باشند و زیستتوده بالایی داشته باشند.[۵۹]
باکتریها همچنین میتوانند بهعنوان همزیست اپیبیونت عمل کنند که نشان داده شده نقش مهمی در سازگاری ریزموجودات با این محیطها دارند؛ از جمله موجوداتی از گروه تاژکداران یوگلنوزوآ که بهواسطه این رابطه در استخرهای آبشور شکوفا شدهاند.[۶۰]
نمونهها
کاربردهای آینده
یکی از ایدههای اصلی، بهرهگیری از شوری استخرهای نمکآبه به عنوان منبع انرژی است. این کار از طریق یک موتور اسمزی انجام میشود که آب لایه رویین با شوری بالا را از میان خود عبور داده و به دلیل فشار اسمزی آن را به سمت پایین هدایت میکند. این فرایند موجب میشود که جریان آب شور کمشدتتر (که چگالی کمتر و شوری سبکتری دارد) بهواسطه نیروی شناوری از موتور دور شود. انرژی حاصل از این تبادل میتواند توسط یک توربین برای تولید برق مورد بهرهبرداری قرار گیرد.[۷]
بررسی آبنمک مایع به منظور بهرهگیری از هدایت الکتریکی آن این امکان را فراهم میآورد که پژوهشگران بررسی کنند آیا آب مایع بر روی مریخ وجود دارد یا خیر.[۶۸] سامانه HABIT (سکونتپذیری: آبنمک، تابش و دما) بخشی از یک مأموریت ۲۰۲۰ برای پایش شرایط متغیر بر روی مریخ خواهد بود. این دستگاه شامل آزمایش BOTTLE (آزمایش مشاهده انتقال آبنمک به مایع) است که هدف آن کمیسازی تشکیل آبنمک مایع گذرا و همچنین مشاهده پایداری آن در طول زمان در شرایط غیرتعادلی است.[۶۸]
ایده سوم بهرهگیری از میکروارگانیسمهای موجود در استخرهای نمکآبه ژرفای دریا برای تولید داروهای طبیعی است.[۶۹] این میکروارگانیسمها به دلیل محیط شدید و فرسایندهای که در آن زندگی میکنند، منابع مهمی از مولکولهای زیستفعال در برابر بیماریهای گوناگون بهشمار میروند و بالقوه میتوانند به افزایش شمار داروهای در حال آزمایش بالینی منجر شوند.[۷۰] بهویژه، یک یافته نوین در پژوهشی، میکروارگانیسمهای موجود در میکروبشناسی استخرهای نمکآبه دریای سرخ دریای سرخ را به عنوان داروهای ضدسرطان بالقوه معرفی کرد.[۷۱][۷۲][۷۳]
استخرهای نمکآبه ژرفای دریا همچنین مورد توجه فراوانی در حوزه زیستدزدی قرار گرفتهاند، با این امید که محیطهای نامحتمل بتوانند به عنوان منابعی برای دستاوردهای پزشکی نوین ناشی از تنوع زیستی ناشناخته عمل کنند. برخی مناطق دارای فعالیتهای ضدباکتری و ضدسرطانی در خوشههای زیستترکیبی یافت شدهاند.[۷۴] آنزیمهای مقاوم به آنتیبیوتیک نوینی نیز کشف شدهاند که در کاربردهای گوناگون پزشکی و صنعتی سودمند هستند.[۷۵]
جستارهای وابسته
- هالوکلاین
- رودخانه زیردریا
منابع
- 1 2 3 Kvitek، Rikk (فوریه ۱۹۹۸). «Black pools of death: Hypoxic, brine-filled ice gouge depressions become lethal traps for benthic organisms in a shallow Arctic embayment». Marine Ecology Progress Series. ۱۶۲: ۱–۱۰. بیبکد:1998MEPS..162....1K. doi:10.3354/meps162001 – به واسطهٔ ResearchGate.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - 1 2 3 «NOAA Ocean Explorer: Gulf of Mexico 2002». oceanexplorer.noaa.gov. دریافتشده در ۲۸ سپتامبر ۲۰۲۰.
{{cite web}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - 1 2 Salem، Mohamed (۱ ژوئن ۲۰۱۷). «Study of Conrad and Shaban deep brines, Red Sea, using bathymetric, parasound and seismic surveys». NRIAG Journal of Astronomy and Geophysics. ۶ (۱): ۹۰–۹۶. بیبکد:2017JAsGe...6...90S. doi:10.1016/j.nrjag.2017.04.003. S2CID 132353952.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Extremophile life near brine pools بایگانیشده در نوامبر ۱۰, ۲۰۰۶ توسط Wayback Machine
- ↑ Eder، W؛ Jahnke، LL؛ Schmidt، M؛ Huber، R (ژوئیه ۲۰۰۱). «Microbial diversity of the brine-seawater interface of the Kebrit Deep, Red Sea, studied via 16S rRNA gene sequences and cultivation methods». Appl. Environ. Microbiol. ۶۷ (۷): ۳۰۷۷–۸۵. بیبکد:2001ApEnM..67.3077E. doi:10.1128/AEM.67.7.3077-3085.2001. PMC 92984. PMID 11425725.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Stevens، Eric W. (اکتبر ۲۰۱۳). «Barite crusts from a brine pool in the Gulf of Mexico and the role of sulfur oxidizing bacteria in the precipitation of barite (BaSO4)» (به انگلیسی آمریکا). hdl:11299/162398.
{{cite journal}}: یادکرد journal نیازمند|journal=است (کمک)نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - 1 2 Arias, Francisco J.; Heras, Salvador De Las (2019). "On the feasibility of ocean brine pool power stations". International Journal of Energy Research (in English). 43 (15): 9049–9054. Bibcode:2019IJER...43.9049A. doi:10.1002/er.4708. hdl:2117/170786. ISSN 1099-114X. S2CID 208754788.
- 1 2 "Brine Pools: The Underwater Lakes of Despair". Amusing Planet (in English). Retrieved 28 سپتامبر 2020.
- ↑ DasSarma، Shiladitya؛ DasSarma، Priya (۱۵ مارس ۲۰۱۲). «Halophiles». Encyclopedia of Life Sciences. Chichester, UK: John Wiley & Sons, Ltd. doi:10.1002/9780470015902.a0000394.pub3. شابک ۹۷۸-۰-۴۷۰-۰۱۶۱۷-۶.
{{cite book}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Antunes, André; Olsson-Francis, Karen; McGenity, Terry J. (2020), "Exploring Deep-Sea Brines as Potential Terrestrial Analogues of Oceans in the Icy Moons of the Outer Solar System", Astrobiology: Current, Evolving, and Emerging Perspectives, vol. 38, Caister Academic Press, pp. 123–162, doi:10.21775/9781912530304.06, ISBN 978-1-912530-30-4, PMID 31967579
{{یادکرد}}: نگهداری یادکرد:پارامتر اثر با شابک (رده) - ↑ Bougouffa، S.؛ Yang، J. K.؛ Lee، O. O.؛ Wang، Y.؛ Batang، Z.؛ Al-Suwailem، A.؛ Qian، P. Y. (ژوئن ۲۰۱۳). «Distinctive Microbial Community Structure in Highly Stratified Deep-Sea Brine Water Columns». Applied and Environmental Microbiology. ۷۹ (۱۱): ۳۴۲۵–۳۴۳۷. بیبکد:2013ApEnM..79.3425B. doi:10.1128/AEM.00254-13. شاپا ۰۰۹۹-۲۲۴۰. PMC 3648036. PMID 23542623.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Frazer, Jennifer. "Playing in a Deep-Sea Brine Pool Is Fun, as Long as You're an ROV [Video]". Scientific American Blog Network (in English). Retrieved 30 اکتبر 2020.
- ↑ Oliver, P. Graham; Vestheim, Hege; Antunes, André; Kaartvedt, Stein (May 2015). "Systematics, functional morphology and distribution of a bivalve (Apachecorbula muriatica gen. et sp. nov.) from the rim of the 'Valdivia Deep' brine pool in the Red Sea". Journal of the Marine Biological Association of the United Kingdom (in English). 95 (3): 523–535. Bibcode:2015JMBUK..95..523O. doi:10.1017/S0025315414001234. hdl:1822/39421. ISSN 0025-3154. S2CID 55354847.
- ↑ Vestheim، Hege؛ Kaartvedt، Stein (۲۶ فوریه ۲۰۱۵). «A deep sea community at the Kebrit brine pool in the Red Sea». Marine Biodiversity. ۴۶ (۱): ۵۹–۶۵. doi:10.1007/s12526-015-0321-0. شاپا ۱۸۶۷-۱۶۱۶. S2CID 16122787.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Sawyer, Derek E.; Mason, R. Alan; Cook, Ann E.; Portnov, Alexey (15 ژانویه 2019). "Submarine Landslides Induce Massive Waves in Subsea Brine Pools". Scientific Reports (in English). 9 (1): 128. Bibcode:2019NatSR...9..128S. doi:10.1038/s41598-018-36781-7. ISSN 2045-2322. PMC 6333809. PMID 30644410. S2CID 58010364.
- ↑ Hourdez, Stéphane; Frederick, Lee-Ann; Schernecke, Andrea; Fisher, Charles R. (2001). "Functional respiratory anatomy of a deep-sea orbiniid polychaete from the Brine Pool NR-1 in the Gulf of Mexico". Invertebrate Biology (in English). 120 (1): 29–40. doi:10.1111/j.1744-7410.2001.tb00023.x. ISSN 1744-7410.
- ↑ Smith, Emily B.; Scott, Kathleen M.; Nix, Erica R.; Korte, Carol; Fisher, Charles R. (September 2000). "Growth and Condition of Seep Mussels (Bathymodiolus Childressi) at a Gulf of Mexico Brine Pool". Ecology (in English). 81 (9): 2392–2403. doi:10.1890/0012-9658(2000)081[2392:GACOSM]2.0.CO;2. ISSN 0012-9658.
- ↑ World Wildlife Fund. "Deep sea ecology: hydrothermal vents and cold seeps". March 23, 2006. Accessed October 3, 2007.
- ↑ Zhang, Weipeng; Wang, Yong; Bougouffa, Salim; Tian, Renmao; Cao, Huiluo; Li, Yongxin; Cai, Lin; Wong, Yue Him; Zhang, Gen; Zhou, Guowei; Zhang, Xixiang (2015). "Synchronized dynamics of bacterial niche-specific functions during biofilm development in a cold seep brine pool". Environmental Microbiology (in English). 17 (10): 4089–4104. Bibcode:2015EnvMi..17.4089Z. doi:10.1111/1462-2920.12978. hdl:10754/561085. ISSN 1462-2920. PMID 26171930.
- ↑ Hugenholtz, Philip; Goebel, Brett M.; Pace, Norman R. (15 سپتامبر 1998). "Impact of Culture-Independent Studies on the Emerging Phylogenetic View of Bacterial Diversity". Journal of Bacteriology (in English). 180 (18): 4765–4774. doi:10.1128/JB.180.18.4765-4774.1998. ISSN 0021-9193. PMC 107498. PMID 9733676.
- ↑ Simon, Carola; Daniel, Rolf (15 فوریه 2011). "Metagenomic Analyses: Past and Future Trends". Applied and Environmental Microbiology (in English). 77 (4): 1153–1161. Bibcode:2011ApEnM..77.1153S. doi:10.1128/AEM.02345-10. ISSN 0099-2240. PMC 3067235. PMID 21169428.
- ↑ Behzad, Hayedeh; Ibarra, Martin Augusto; Mineta, Katsuhiko; Gojobori, Takashi (2016). "Metagenomic studies of the Red Sea". Gene (in English). 576 (2): 717–723. doi:10.1016/j.gene.2015.10.034. hdl:10754/581498. PMID 26526132.
- 1 2 3 4 5 6 7 8 9 10 11 12 13 14 15 16 17 18 19 20 21 22 23 24 25 26 Bougouffa, S.; Yang, J. K.; Lee, O. O.; Wang, Y.; Batang, Z.; Al-Suwailem, A.; Qian, P. Y. (May 2013). "Distinctive Microbial Community Structure in Highly Stratified Deep-Sea Brine Water Columns". Applied and Environmental Microbiology (in English). 79 (11): 3425–3437. Bibcode:2013ApEnM..79.3425B. doi:10.1128/AEM.00254-13. ISSN 0099-2240. PMC 3648036. PMID 23542623.
- 1 2 3 4 5 6 7 8 9 10 11 12 13 Wang, Yong; Yang, Jiangke; Lee, On On; Dash, Swagatika; Lau, Stanley C K; Al-Suwailem, Abdulaziz; Wong, Tim Y H; Danchin, Antoine; Qian, Pei-Yuan (2011). "Hydrothermally generated aromatic compounds are consumed by bacteria colonizing in Atlantis II Deep of the Red Sea". The ISME Journal (in English). 5 (10): 1652–1659. Bibcode:2011ISMEJ...5.1652W. doi:10.1038/ismej.2011.42. ISSN 1751-7362. PMC 3176515. PMID 21525946.
- 1 2 3 4 5 6 7 8 9 10 11 12 13 14 15 16 17 18 19 20 21 22 23 24 25 Wang, Yong; Cao, Huiluo; Zhang, Guishan; Bougouffa, Salim; Lee, On On; Al-Suwailem, Abdulaziz; Qian, Pei-Yuan (2013). "Autotrophic Microbe Metagenomes and Metabolic Pathways Differentiate Adjacent Red Sea Brine Pools". Scientific Reports (in English). 3 (1): 1748. Bibcode:2013NatSR...3.1748W. doi:10.1038/srep01748. ISSN 2045-2322. PMC 3638166. PMID 23624511.
- 1 2 Mei, Yunjun; Liu, Huan; Zhang, Shunxi; Yang, Ming; Hu, Chun; Zhang, Jian; Shen, Ping; Chen, Xiangdong (19 سپتامبر 2017). "Effects of salinity on the cellular physiological responses of Natrinema sp. J7-2". PLOS ONE (in English). 12 (9) e0184974. Bibcode:2017PLoSO..1284974M. doi:10.1371/journal.pone.0184974. ISSN 1932-6203. PMC 5604999. PMID 28926633.
- ↑ Hallsworth، John E.؛ Yakimov، Michail M.؛ Golyshin، Peter N.؛ Gillion، Jenny L. M.؛ D'Auria، Giuseppe؛ de Lima Alves، Flavia؛ La Cono، Violetta؛ Genovese، Maria؛ McKew، Boyd A.؛ Hayes، Sandra L.؛ Harris، Gayle (۲۰۰۷). «Limits of life in MgCl۲-containing environments: chaotropicity defines the window». Environmental Microbiology. ۹ (۳): ۸۰۱–۸۱۳. بیبکد:2007EnvMi...9..801H. doi:10.1111/j.1462-2920.2006.01212.x. شاپا ۱۴۶۲-۲۹۱۲. PMID 17298378.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Hallsworth، John E.؛ Heim، Sabina؛ Timmis، Kenneth N. (۲۷ نوامبر ۲۰۰۳). «Chaotropic solutes cause water stress in Pseudomonas putida». Environmental Microbiology. ۵ (۱۲): ۱۲۷۰–۱۲۸۰. بیبکد:2003EnvMi...5.1270H. doi:10.1111/j.1462-2920.2003.00478.x. شاپا ۱۴۶۲-۲۹۱۲. PMID 14641573.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Oren، Aharon (۵ نوامبر ۲۰۱۰). «Thermodynamic limits to microbial life at high salt concentrations». Environmental Microbiology. ۱۳ (۸): ۱۹۰۸–۱۹۲۳. doi:10.1111/j.1462-2920.2010.02365.x. شاپا ۱۴۶۲-۲۹۱۲. PMID 21054738.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Gunde-Cimerman، Nina؛ Plemenitaš، Ana؛ Oren، Aharon (۱ مه ۲۰۱۸). «Strategies of adaptation of microorganisms of the three domains of life to high salt concentrations». FEMS Microbiology Reviews. ۴۲ (۳): ۳۵۳–۳۷۵. doi:10.1093/femsre/fuy009. شاپا ۰۱۶۸-۶۴۴۵. PMID 29529204.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Tanne، Christoph؛ Golovina، Elena A.؛ Hoekstra، Folkert A.؛ Meffert، Andrea؛ Galinski، Erwin A. (۴ آوریل ۲۰۱۴). «Glass-forming property of hydroxyectoine is the cause of its superior function as a desiccation protectant». Frontiers in Microbiology. ۵: ۱۵۰. doi:10.3389/fmicb.2014.00150. شاپا ۱۶۶۴-۳۰۲X. PMC 3983491. PMID 24772110.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Kamanda Ngugi، David؛ Blom، Jochen؛ Alam، Intikhab؛ Rashid، Mamoon؛ Ba-Alawi، Wail؛ Zhang، Guishan؛ Hikmawan، Tyas؛ Guan، Yue؛ Antunes، Andre؛ Siam، Rania؛ El Dorry، Hamza (۸ اوت ۲۰۱۴). «Comparative genomics reveals adaptations of a halotolerant thaumarchaeon in the interfaces of brine pools in the Red Sea». The ISME Journal. ۹ (۲): ۳۹۶–۴۱۱. doi:10.1038/ismej.2014.137. شاپا ۱۷۵۱-۷۳۶۲. PMC 4303633. PMID 25105904.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Ngugi، David Kamanda؛ Blom، Jochen؛ Stepanauskas، Ramunas؛ Stingl، Ulrich (۱۱ دسامبر ۲۰۱۵). «Diversification and niche adaptations of Nitrospina-like bacteria in the polyextreme interfaces of Red Sea brines». The ISME Journal. ۱۰ (۶): ۱۳۸۳–۱۳۹۹. doi:10.1038/ismej.2015.214. شاپا ۱۷۵۱-۷۳۶۲. PMC 5029188. PMID 26657763.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Kato، C.؛ Qureshi، M. (۱۹۹۹). «Pressure response in deep-sea piezophilic bacteria». Journal of Molecular Microbiology and Biotechnology. ۱ (۱): ۸۷–۹۲. doi:10.1023/A:1008989800098. PMID 10941789. S2CID 32898991.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Van Cappellen، Philippe؛ Viollier، Eric؛ Roychoudhury، Alakendra؛ Clark، Lauren؛ Ingall، Ellery؛ Lowe، Kristine؛ Dichristina، Thomas (۲۱ اوت ۱۹۹۸). «Biogeochemical Cycles of Manganese and Iron at the Oxic−Anoxic Transition of a Stratified Marine Basin (Orca Basin, Gulf of Mexico)». Environmental Science & Technology. 32 (19): 2931–2939. بیبکد:1998EnST...32.2931V. doi:10.1021/es980307m. شاپا ۰۰۱۳-۹۳۶X.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Guan، Yue؛ Hikmawan، Tyas؛ Antunes، André؛ Ngugi، David؛ Stingl، Ulrich (۲۰۱۵). «Diversity of methanogens and sulfate-reducing bacteria in the interfaces of five deep-sea anoxic brines of the Red Sea». Research in Microbiology. ۱۶۶ (۹): ۶۸۸–۶۹۹. doi:10.1016/j.resmic.2015.07.002. hdl:10754/594182. شاپا ۰۹۲۳-۲۵۰۸. PMID 26192212.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Borin، Sara؛ Mapelli، Francesca؛ Rolli، Eleonora؛ Song، Bongkeun؛ Tobias، Craig؛ Schmid، Markus C.؛ De Lange، Gert J.؛ Reichart، Gert J.؛ Schouten، Stefan؛ Jetten، Mike؛ Daffonchio، Daniele (۲۳ ژانویه ۲۰۱۳). «Anammox bacterial populations in deep marine hypersaline gradient systems». Extremophiles. ۱۷ (۲): ۲۸۹–۲۹۹. doi:10.1007/s00792-013-0516-x. hdl:2066/111535. شاپا ۱۴۳۱-۰۶۵۱. PMID 23340764. S2CID 12353717.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Roberto Danovaro؛ Antonio Dell'Anno؛ Antonio Pusceddu؛ Cristina Gambi؛ Iben Heiner؛ Reinhardt Møbjerg Kristensen (۶ آوریل ۲۰۱۰). The first metazoa living in permanently anoxic conditions. BioMed Central Ltd. OCLC 808847572.
{{cite book}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Neves، Ricardo Cardoso؛ Gambi، Cristina؛ Danovaro، Roberto؛ Kristensen، Reinhardt Møbjerg (۸ اوت ۲۰۱۴). «Spinoloricus cinziae (Phylum Loricifera), a new species from a hypersaline anoxic deep basin in the Mediterranean Sea». Systematics and Biodiversity. ۱۲ (۴): ۴۸۹–۵۰۲. بیبکد:2014SyBio..12..489N. doi:10.1080/14772000.2014.943820. شاپا ۱۴۷۷-۲۰۰۰. S2CID 84682701.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Danovaro، Roberto؛ Gambi، Cristina؛ Dell'Anno، Antonio؛ Corinaldesi، Cinzia؛ Pusceddu، Antonio؛ Neves، Ricardo Cardoso؛ Kristensen، Reinhardt Møbjerg (۷ ژوئن ۲۰۱۶). «The challenge of proving the existence of metazoan life in permanently anoxic deep-sea sediments». BMC Biology. ۱۴ (۱): ۴۳. doi:10.1186/s12915-016-0263-4. شاپا ۱۷۴۱-۷۰۰۷. PMC 4895820. PMID 27267928.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - 1 2 3 4 Merlino، Giuseppe؛ Barozzi، Alan؛ Michoud، Grégoire؛ Ngugi، David Kamanda؛ Daffonchio، Daniele (۱ ژوئیه ۲۰۱۸). «Microbial ecology of deep-sea hypersaline anoxic basins». FEMS Microbiology Ecology. ۹۴ (۷) fiy۰۸۵. doi:10.1093/femsec/fiy085. hdl:10754/627936. شاپا ۰۱۶۸-۶۴۹۶. PMID 29905791.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - 1 2 Bougouffa, S.; Yang, J. K.; Lee, O. O.; Wang, Y.; Batang, Z.; Al-Suwailem, A.; Qian, P. Y. (May 2013). "Distinctive Microbial Community Structure in Highly Stratified Deep-Sea Brine Water Columns". Applied and Environmental Microbiology (in English). 79 (11): 3425–3437. Bibcode:2013ApEnM..79.3425B. doi:10.1128/AEM.00254-13. ISSN 0099-2240. PMC 3648036. PMID 23542623.
- ↑ Anschutz, Pierre; Blanc, Gérard (1 ژوئیه 1996). "Heat and salt fluxes in the Atlantis II Deep (Red Sea)". Earth and Planetary Science Letters (in English). 142 (1): 147–159. Bibcode:1996E&PSL.142..147A. doi:10.1016/0012-821X(96)00098-2. ISSN 0012-821X.
- ↑ De Lange, G. J; Middelburg, J. J; Van der Weijden, C. H; Catalano, G; Luther, G. W; Hydes, D. J; Woittiez, J. R. W; Klinkhammer, G. P (10 دسامبر 1990). "Composition of anoxic hypersaline brines in the Tyro and Bannock Basins, eastern Mediterranean". Marine Chemistry. Anoxic Brines of the Mediterranean Sea (in English). 31 (1): 63–88. Bibcode:1990MarCh..31...63D. doi:10.1016/0304-4203(90)90031-7. ISSN 0304-4203.
- 1 2 3 4 van der Wielen, Paul W. J. J.; Bolhuis, Henk; Borin, Sara; Daffonchio, Daniele; Corselli, Cesare; Giuliano, Laura; D'Auria, Giuseppe; de Lange, Gert J.; Huebner, Andreas; Varnavas, Sotirios P.; Thomson, John (7 ژانویه 2005). "The Enigma of Prokaryotic Life in Deep Hypersaline Anoxic Basins". Science (in English). 307 (5706): 121–123. Bibcode:2005Sci...307..121V. doi:10.1126/science.1103569. ISSN 0036-8075. PMID 15637281. S2CID 206507712.
- 1 2 Borin، Sara؛ Brusetti، Lorenzo؛ Mapelli، Francesca؛ D'Auria، Giuseppe؛ Brusa، Tullio؛ Marzorati، Massimo؛ Rizzi، Aurora؛ Yakimov، Michail؛ Marty، Danielle؛ De Lange، Gert J.؛ Van der Wielen، Paul (۹ ژوئن ۲۰۰۹). «Sulfur cycling and methanogenesis primarily drive microbial colonization of the highly sulfidic Urania deep hypersaline basin». Proceedings of the National Academy of Sciences of the United States of America. ۱۰۶ (۲۳): ۹۱۵۱–۹۱۵۶. بیبکد:2009PNAS..106.9151B. doi:10.1073/pnas.0811984106. شاپا ۰۰۲۷-۸۴۲۴. PMC 2685740. PMID 19470485.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ La Cono، Violetta؛ Smedile، Francesco؛ Bortoluzzi، Giovanni؛ Arcadi، Erika؛ Maimone، Giovanna؛ Messina، Enzo؛ Borghini، Mireno؛ Oliveri، Elvira؛ Mazzola، Salvatore؛ L'Haridon، Stephan؛ Toffin، Laurent (اوت ۲۰۱۱). «Unveiling microbial life in new deep-sea hypersaline Lake Thetis. Part I: Prokaryotes and environmental settings». Environmental Microbiology. ۱۳ (۸): ۲۲۵۰–۲۲۶۸. بیبکد:2011EnvMi..13.2250L. doi:10.1111/j.1462-2920.2011.02478.x. شاپا ۱۴۶۲-۲۹۲۰. PMID 21518212.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Yakimov، Michail M.؛ La Cono، Violetta؛ Spada، Gina L.؛ Bortoluzzi، Giovanni؛ Messina، Enzo؛ Smedile، Francesco؛ Arcadi، Erika؛ Borghini، Mireno؛ Ferrer، Manuel؛ Schmitt-Kopplin، Phillippe؛ Hertkorn، Norbert (۲۶ ژانویه ۲۰۱۵). «Microbial community of the deep-sea brine LakeKryosseawater-brine interface is active below the chaotropicity limit of life as revealed by recovery of mRNA». Environmental Microbiology. ۱۷ (۲): ۳۶۴–۳۸۲. بیبکد:2015EnvMi..17..364Y. doi:10.1111/1462-2920.12587. شاپا ۱۴۶۲-۲۹۱۲. PMID 25622758. S2CID 31463948.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Van Der Wielen، Paul W. J. J. (۱ ژوئن ۲۰۰۶). «Diversity of ribulose-1,5-bisphosphate carboxylase/oxygenase large-subunit genes in the MgCl2-dominated deep hypersaline anoxic basin discovery». FEMS Microbiology Letters. ۲۵۹ (۲): ۳۲۶–۳۳۱. doi:10.1111/j.1574-6968.2006.00284.x. شاپا ۰۳۷۸-۱۰۹۷. PMID 16734797.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Oren، Aharon (ژوئن ۱۹۹۹). «Bioenergetic Aspects of Halophilism». Microbiology and Molecular Biology Reviews. ۶۳ (۲): ۳۳۴–۳۴۸. doi:10.1128/MMBR.63.2.334-348.1999. شاپا ۱۰۹۲-۲۱۷۲. PMC 98969. PMID 10357854.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Yakimov, Michail M.; La Cono, Violetta; Slepak, Vladlen Z.; La Spada, Gina; Arcadi, Erika; Messina, Enzo; Borghini, Mireno; Monticelli, Luis S.; Rojo, David; Barbas, Coral; Golyshina, Olga V. (19 دسامبر 2013). "Microbial life in the Lake Medee, the largest deep-sea salt-saturated formation". Scientific Reports (in English). 3 (1): 3554. Bibcode:2013NatSR...3.3554Y. doi:10.1038/srep03554. ISSN 2045-2322. PMC 3867751. PMID 24352146.
- ↑ Borin، Sara؛ Mapelli، Francesca؛ Rolli، Eleonora؛ Song، Bongkeun؛ Tobias، Craig؛ Schmid، Markus C.؛ De Lange، Gert J.؛ Reichart، Gert J.؛ Schouten، Stefan؛ Jetten، Mike؛ Daffonchio، Daniele (مارس ۲۰۱۳). «Anammox bacterial populations in deep marine hypersaline gradient systems». Extremophiles: Life Under Extreme Conditions. ۱۷ (۲): ۲۸۹–۲۹۹. doi:10.1007/s00792-013-0516-x. hdl:2066/111535. شاپا ۱۴۳۳-۴۹۰۹. PMID 23340764. S2CID 12353717.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Pachiadaki, Maria G.; Yakimov, Michail M.; LaCono, Violetta; Leadbetter, Edward; Edgcomb, Virginia (June 2014). "Unveiling microbial activities along the halocline of Thetis, a deep-sea hypersaline anoxic basin". The ISME Journal (in English). 8 (12): 2478–2489. Bibcode:2014ISMEJ...8.2478P. doi:10.1038/ismej.2014.100. ISSN 1751-7370. PMC 4260694. PMID 24950109.
- ↑ Guan, Yue; Hikmawan, Tyas; Antunes, André; Ngugi, David; Stingl, Ulrich (1 نوامبر 2015). "Diversity of methanogens and sulfate-reducing bacteria in the interfaces of five deep-sea anoxic brines of the Red Sea". Research in Microbiology. Deep Sea Microbiology (in English). 166 (9): 688–699. doi:10.1016/j.resmic.2015.07.002. hdl:10754/594182. ISSN 0923-2508. PMID 26192212.
- ↑ Friedrich، Cornelius G.؛ Rother، Dagmar؛ Bardischewsky، Frank؛ Quentmeier، Armin؛ Fischer، Jörg (ژوئیه ۲۰۰۱). «Oxidation of Reduced Inorganic Sulfur Compounds by Bacteria: Emergence of a Common Mechanism?». Applied and Environmental Microbiology. ۶۷ (۷): ۲۸۷۳–۲۸۸۲. بیبکد:2001ApEnM..67.2873F. doi:10.1128/AEM.67.7.2873-2882.2001. شاپا ۰۰۹۹-۲۲۴۰. PMC 92956. PMID 11425697.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Sorokin، Dimitry Y؛ Messina، Enzo؛ Smedile، Francesco؛ Roman، Pawel؛ Damsté، Jaap S Sinninghe؛ Ciordia، Sergio؛ Mena، Maria Carmen؛ Ferrer، Manuel؛ Golyshin، Peter N؛ Kublanov، Ilya V؛ Samarov، Nazar I (ژانویه ۲۰۱۷). «Discovery of anaerobic lithoheterotrophic haloarchaea, ubiquitous in hypersaline habitats». The ISME Journal. ۱۱ (۵): ۱۲۴۵–۱۲۶۰. بیبکد:2017ISMEJ..11.1245S. doi:10.1038/ismej.2016.203. شاپا ۱۷۵۱-۷۳۶۲. PMC 5437934. PMID 28106880.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ «NOAA Ocean Explorer: Gulf of Mexico 2002». oceanexplorer.noaa.gov. دریافتشده در ۲۹ مارس ۲۰۲۲.
{{cite web}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Duperron, Sébastien; Lorion, Julien; Samadi, Sarah; Gros, Olivier; Gaill, Françoise (2009). "Symbioses between deep-sea mussels (Mytilidae: Bathymodiolinae) and chemosynthetic bacteria: diversity, function and evolution". Comptes Rendus Biologies (in English). 332 (2–3): 298–310. doi:10.1016/j.crvi.2008.08.003. PMID 19281960.
- ↑ Nougué, Odrade; Gallet, Romain; Chevin, Luis-Miguel; Lenormand, Thomas (2015). "Niche Limits of Symbiotic Gut Microbiota Constrain the Salinity Tolerance of Brine Shrimp". The American Naturalist (in English). 186 (3): 390–403. Bibcode:2015ANat..186..390N. doi:10.1086/682370. ISSN 0003-0147. PMID 26655356. S2CID 44744283.
- ↑ Wang، Yong؛ Zhang، Wei Peng؛ Cao، Hui Luo؛ Shek، Chun Shum؛ Tian، Ren Mao؛ Wong، Yue Him؛ Batang، Zenon؛ Al-Suwailem، Abdulaziz؛ Qian، Pei-Yuan (۲۰۱۴). «Diversity and distribution of eukaryotic microbes in and around a brine pool adjacent to the Thuwal cold seeps in the Red Sea». Frontiers in Microbiology. ۵: ۳۷. doi:10.3389/fmicb.2014.00037. شاپا ۱۶۶۴-۳۰۲X. PMC 3922051. PMID 24575081.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Duarte, Carlos M.; Røstad, Anders; Michoud, Grégoire; Barozzi, Alan; Merlino, Giuseppe; Delgado-Huertas, Antonio; Hession, Brian C.; Mallon, Francis L.; Afifi, Abdulakader M.; Daffonchio, Daniele (22 ژانویه 2020). "Discovery of Afifi, the shallowest and southernmost brine pool reported in the Red Sea". Scientific Reports (in English). 10 (1): 910. Bibcode:2020NatSR..10..910D. doi:10.1038/s41598-020-57416-w. ISSN 2045-2322. PMC 6976674. PMID 31969577. S2CID 210844928.
- ↑ Wang, Yong; Yang, Jiang Ke; Lee, On On; Li, Tie Gang; Al-Suwailem, Abdulaziz; Danchin, Antoine; Qian, Pei-Yuan (21 دسامبر 2011). "Bacterial Niche-Specific Genome Expansion Is Coupled with Highly Frequent Gene Disruptions in Deep-Sea Sediments". PLOS ONE (in English). 6 (12) e29149. Bibcode:2011PLoSO...629149W. doi:10.1371/journal.pone.0029149. ISSN 1932-6203. PMC 3244439. PMID 22216192.
- ↑ Salem, Mohamed (1 ژوئن 2017). "Study of Conrad and Shaban deep brines, Red Sea, using bathymetric, parasound and seismic surveys". NRIAG Journal of Astronomy and Geophysics (in English). 6 (1): 90–96. Bibcode:2017JAsGe...6...90S. doi:10.1016/j.nrjag.2017.04.003. ISSN 2090-9977. S2CID 132353952.
- ↑ Siam, Rania; Mustafa, Ghada A.; Sharaf, Hazem; Moustafa, Ahmed; Ramadan, Adham R.; Antunes, Andre; Bajic, Vladimir B.; Stingl, Uli; Marsis, Nardine G. R.; Coolen, Marco J. L.; Sogin, Mitchell (20 اوت 2012). "Unique Prokaryotic Consortia in Geochemically Distinct Sediments from Red Sea Atlantis II and Discovery Deep Brine Pools". PLOS ONE (in English). 7 (8) e42872. Bibcode:2012PLoSO...742872S. doi:10.1371/journal.pone.0042872. ISSN 1932-6203. PMC 3423430. PMID 22916172.
- ↑ Abdallah, Rehab Z.; Adel, Mustafa; Ouf, Amged; Sayed, Ahmed; Ghazy, Mohamed A.; Alam, Intikhab; Essack, Magbubah; Lafi, Feras F.; Bajic, Vladimir B.; El-Dorry, Hamza; Siam, Rania (2014). "Aerobic methanotrophic communities at the Red Sea brine-seawater interface". Frontiers in Microbiology (in English). 5: 487. doi:10.3389/fmicb.2014.00487. ISSN 1664-302X. PMC 4172156. PMID 25295031.
- ↑ Yakimov, Michail M.; Cono, Violetta La; Spada, Gina L.; Bortoluzzi, Giovanni; Messina, Enzo; Smedile, Francesco; Arcadi, Erika; Borghini, Mireno; Ferrer, Manuel; Schmitt-Kopplin, Phillippe; Hertkorn, Norbert (2015). "Microbial community of the deep-sea brine Lake Kryos seawater–brine interface is active below the chaotropicity limit of life as revealed by recovery of mRNA". Environmental Microbiology (in English). 17 (2): 364–382. Bibcode:2015EnvMi..17..364Y. doi:10.1111/1462-2920.12587. ISSN 1462-2920. PMID 25622758. S2CID 31463948.
- ↑ Salem، Mohamed (۱ ژوئن ۲۰۱۷). «Study of Conrad and Shaban deep brines, Red Sea, using bathymetric, parasound and seismic surveys». NRIAG Journal of Astronomy and Geophysics. ۶ (۱): ۹۰–۹۶. بیبکد:2017JAsGe...6...90S. doi:10.1016/j.nrjag.2017.04.003. شاپا ۲۰۹۰-۹۹۷۷. S2CID 132353952.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - 1 2 Nazarious، Miracle Israel؛ Ramachandran، Abhilash Vakkada؛ Zorzano، Maria-Paz؛ Martin-Torres، Javier (۱ سپتامبر ۲۰۱۹). «Calibration and preliminary tests of the Brine Observation Transition To Liquid Experiment on HABIT/ExoMars 2020 for demonstration of liquid water stability on Mars». Acta Astronautica. ۱۶۲: ۴۹۷–۵۱۰. بیبکد:2019AcAau.162..497N. doi:10.1016/j.actaastro.2019.06.026. hdl:2164/14224. شاپا ۰۰۹۴-۵۷۶۵.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Li، Dehai؛ Wang، Fengping؛ Xiao، Xiang؛ Zeng، Xiang؛ Gu، Qian-Qun؛ Zhu، Weiming (مه ۲۰۰۷). «A new cytotoxic phenazine derivative from a deep sea bacterium Bacillus sp». Archives of Pharmacal Research. ۳۰ (۵): ۵۵۲–۵۵۵. doi:10.1007/BF02977647. شاپا ۰۲۵۳-۶۲۶۹. PMID 17615672. S2CID 10515104.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Ziko، Laila؛ Saqr، Al-Hussein A.؛ Ouf، Amged؛ Gimpel، Matthias؛ Aziz، Ramy K.؛ Neubauer، Peter؛ Siam، Rania (۱۸ مارس ۲۰۱۹). «Antibacterial and anticancer activities of orphan biosynthetic gene clusters from Atlantis II Red Sea brine pool». Microbial Cell Factories. ۱۸ (۱): ۵۶. doi:10.1186/s12934-019-1103-3. شاپا ۱۴۷۵-۲۸۵۹. PMC 6423787. PMID 30885206.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Craig, H. (23 دسامبر 1966). "Isotopic Composition and Origin of the Red Sea and Salton Sea Geothermal Brines". Science (in English). 154 (3756): 1544–1548. Bibcode:1966Sci...154.1544C. doi:10.1126/science.154.3756.1544. ISSN 0036-8075. PMID 17807292. S2CID 40574864.
- ↑ Sagar، Sunil؛ Esau، Luke؛ Hikmawan، Tyas؛ Antunes، Andre؛ Holtermann، Karie؛ Stingl، Ulrich؛ Bajic، Vladimir B.؛ Kaur، Mandeep (۶ فوریه ۲۰۱۳). «Cytotoxic and apoptotic evaluations of marine bacteria isolated from brine-seawater interface of the Red Sea». BMC Complementary and Alternative Medicine. ۱۳ (۱): ۲۹. doi:10.1186/1472-6882-13-29. شاپا ۱۴۷۲-۶۸۸۲. PMC 3598566. PMID 23388148.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Grötzinger, Stefan Wolfgang; Alam, Intikhab; Alawi, Wail Ba; Bajic, Vladimir B.; Stingl, Ulrich; Eppinger, Jörg (2014). "Mining a database of single amplified genomes from Red Sea brine pool extremophiles—improving reliability of gene function prediction using a profile and pattern matching algorithm (PPMA)". Frontiers in Microbiology (in English). 5: 134. doi:10.3389/fmicb.2014.00134. ISSN 1664-302X. PMC 3985023. PMID 24778629.
- ↑ Ziko، Laila؛ Saqr، Al-Hussein A.؛ Ouf، Amged؛ Gimpel، Matthias؛ Aziz، Ramy K.؛ Neubauer، Peter؛ Siam، Rania (۱۸ مارس ۲۰۱۹). «Antibacterial and anticancer activities of orphan biosynthetic gene clusters from Atlantis II Red Sea brine pool». Microbial Cell Factories. ۱۸ (۱): ۵۶. doi:10.1186/s12934-019-1103-3. شاپا ۱۴۷۵-۲۸۵۹. PMC 6423787. PMID 30885206.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Elbehery، Ali H. A.؛ Leak، David J.؛ Siam، Rania (۲۲ دسامبر ۲۰۱۶). «Novel thermostable antibiotic resistance enzymes from the Atlantis II Deep Red Sea brine pool». Microbial Biotechnology. ۱۰ (۱): ۱۸۹–۲۰۲. doi:10.1111/1751-7915.12468. شاپا ۱۷۵۱-۷۹۱۵. PMC 5270753. PMID 28004885.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده)
- مشارکتکنندگان ویکیپدیا. «Brine pool». در دانشنامهٔ ویکیپدیای انگلیسی، بازبینیشده در ۳ ژوئن ۲۰۲۶.
- مشارکتکنندگان ویکیپدیا. «Lac de saumure». در دانشنامهٔ ویکیپدیای فرانسوی، بازبینیشده در ۳ ژوئن ۲۰۲۶.
پیوند به بیرون
- خلیج مکزیک ۲۰۰۲ — اداره ملی اقیانوسی و جوی
- دریاچههای زیر اقیانوس: چشمههای آبنمک — Amusing Planet
آبگیرها، استخرها و چالههای آب | ||
|---|---|---|
| آبگیرها |
|  |
| استخرها |
| |
| چالههای آب |
| |
| زیستبوم |
| |
| بومسازگانها | ||
| جستارهای وابسته |
| |
- پهنههای آبی
- زمینچهرهای ساحلی و اقیانوسی