ویروس لکه حلقوی پاپایا
| ویروس لکه حلقوی پاپایا | |
|---|---|
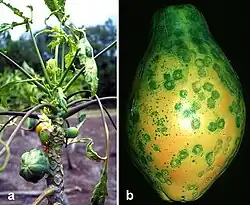 | |
| علائم PRSV روی درخت پاپایا (a) و میوه (b) | |
| طبقهبندی ویروسها | |
| Group: | Group IV ((+)ssRNA) |
| تیره: | Potyviridae |
| سرده: | |
| گونه: | Potyvirus papayanuli |
| مترادف | |
| |
ویروس لکه حلقوی پاپایا (PRSV) یک ویروس گیاهی بیماریزا[۱] از سردهٔ پوتیویروس و خانوادهٔ ویروسی Potyviridae[۲] است که عمدتاً درخت پاپایا را آلوده میکند.
این ویروس یک ذرهٔ میلهای شکل انعطافپذیر بدون پوشش است که طول آن بین ۷۶۰ تا ۸۰۰ نانومتر و قطر آن ۱۲ نانومتر میباشد. این ویروس بین گیاهان از طریق فعالیتهای مکانیکی مانند هرس و توسط گونههای متعدد شته مانند Myzus persicae منتقل میشود. هیچ انتقال بذری شناسایی نشده است.[۳]
دو نوع اصلی از این ویروس وجود دارد، اما هر دو از نظر سرمی غیرقابل تشخیص هستند و از نظر ژنتیکی چنان به هم نزدیکند که اکنون به عنوان یک گونهٔ ویروسی واحد در نظر گرفته میشوند. نوعی که نام ویروس از آن گرفته شده، جدایههای نوع P (PRSV-P) هستند. این نوع پاپایا و چندین عضو از خانوادهٔ خربزه (کدوییان) را آلوده میکند. نوع دیگر، جدایههای نوع W (PRSV-W)، پاپایا را آلوده نمیکند. جدایههای PRSV-W کدوییانی مانند هندوانه، خیار و کدو را آلوده میکنند و در اصل به عنوان ویروس موزاییک هندوانه ۱ شناخته میشدند.[۴][۵]
تاریخچه
تولید پاپایای هاوایی دو بار به شدت تحت تأثیر PRSV قرار گرفته است. این ویروس در اوایل سال ۱۹۳۷ به اوآهو معرفی شد.[۶] بیماری برای چندین سال خفیف بود تا اینکه در حدود سال ۱۹۵۰ یا جهش یافت یا یک سویهٔ مهاجمتر معرفی شد. در عرض ۱۲ سال، میزان زمینهای تحت کشت پاپایا ۹۴٪ کاهش یافت. سپس تولید از اوآهو به منطقهٔ پونا در جزیره هاوایی («جزیره بزرگ») تحت قرنطینهٔ شدید منتقل شد. در سال ۱۹۷۱، PRSV در باغهای خانگی یافت شد، اما تلاشهایی برای جلوگیری از گسترش آن صورت گرفت. این ویروس در سال ۱۹۹۲ در مزارع تجاری ظهور کرد و تا سال ۱۹۹۵ تولید در پونا غیرممکن شد. تولیدکنندگان تجاری دوباره به ساحل هاماکوا نقل مکان کردند، اما تنها با موفقیت محدودی همراه بودند. تولید پاپایای هاوایی تا پایان آن دهه به نصف کاهش یافت. ارقام پاپایای تراریخته که به PRSV مقاوم هستند در سال ۱۹۹۸ وارد تولید شدند و صنعت را احیا کردند.[۷]
پراکندگی و خاستگاه
هر دو پاتوتیپ در سراسر جهان پراکنده هستند. برای نمونه، PRSV-P شناخته شده است که در خاورمیانه، آفریقا، آمریکای جنوبی و مرکزی وجود دارد. همچنین در چین، فرانسه، آلمان، هند، ایتالیا، مکزیک، تایوان و ایالات متحده یافت شده است. جدایههای PRSV-W در ایالات متحده، کارائیب، مکزیک، ایتالیا، آلمان، استرالیا، فرانسه، هند، خاورمیانه و آمریکای جنوبی یافت شدهاند.
با استفاده از مطالعات فیلوژنی ژنتیکی، پژوهشگران گمان میکنند که این ویروس حدود ۲۲۵۰ سال پیش از آسیا، به احتمال زیاد هند، منشأ گرفته است. از آنجا به آرامی در سراسر قاره گسترش یافت و حدود ۶۰۰ سال پیش به چین رسید. همچنین در ۳۰۰ سال گذشته مستقیماً از هند به استرالیا و قارهٔ آمریکا معرفی شد. پاپایا تنها ۵۰۰ سال پیش به هند معرفی شد و در آن زمان ویروس از کدوییان جهش کرد. با این حال، ویروس بارها در طول تکامل خود بین پاتوتیپها تغییر جهت داده است.[۸]
PRSV-P
علائم نمونهٔ بیماریهای ویروسی است. پاپایا زردی، بدشکلی برگ و موزاییک شدید را نشان میدهد. لکهها و رگههای روغنی یا آبسوخته روی تنه و دمبرگها ظاهر میشوند. میوه برجستگیها و «لکه حلقوی» کلاسیک را نشان خواهد داد. همچنین نشان داده شده که یک جدایهٔ شدید از PRSV باعث نکروز بافتی میشود.[۹] علائم کدوییان شبیه علائم پاپایا شامل تاول، موزاییک، زردی و بدشکلیهای برگ است.[۱۰]
این ویروس دو نوع جسم انکلوزیون تولید میکند که در زیر میکروسکوپ نوری با رنگآمیزی مناسب نوارهای اپیدرمی قابل مشاهده هستند.[۱۱] یکی از این انکلوزیونها، انکلوزیون استوانهای معمول (CI) است که برای گروه پوتیویروس تشخیصی محسوب میشود و دیگری انکلوزیون بیشکل (AI) نام دارد. حضور هر دو انکلوزیون میتواند برای این ویروس تشخیصی باشد.[۱۲]
PRSV-W
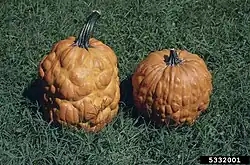
در کدو، هندوانه و سایر کدوییان، PRSV-W باعث ایجاد لکههای رنگپریده و بدشکلی برگها و میوه میشود.[۱۳] PRSV-W یکی از عوامل محدودکننده در کشت کدوییان در فلوریدا در نظر گرفته میشود.[۱۴]
PRSV-W نباید با ویروس موزاییک هندوانه ۲، یکی دیگر از پوتیویروسهایی که کدوییان را در سراسر جهان، از جمله فلوریدا، آلوده میکند و اکنون به سادگی به عنوان ویروس موزاییک هندوانه (WMV) شناخته میشود، اشتباه گرفته شود. PRSV دامنهٔ میزبانی متفاوت، ویژگیهای سرمی متفاوت و هیچ همسانی توالی نوکلئوتیدی با WMV ندارد.[۱۵] WMV همچنین دارای اجسام انکلوزیون سیتوپلاسمی متفاوتی است که میتواند آن را از PRSV-W متمایز کند.[۱۶]
پادتنهای پلیکلونال و مونوکلونال برای هر دو پروتئین CI و AI و همچنین برای پروتئین کپسید PRSV-W ساخته شده است.[۱۷]
ناقلان
شتهها وسیلهٔ غالب انتقال PRSV هستند. PRSV یک ویروس ناپایا است، به این معنا که فراتر از قطعات دهانی تغذیهای شته وارد نمیشود و در میزبان حشرهای خود گردش یا تکثیر نمییابد. ویروسهای ناپایا به سرعت و به آسانی بین گیاهان منتقل میشوند. بسیاری از گونههای شته میتوانند PRSV را منتقل کنند، بهویژه شته سبز هلو و شته جالیز.[۱۸][۱۹]
انتقال بذری با نرخ ۲ گیاه آلوده از نسل دوم از ۱۳۵۵ گیاه مشاهده شده است.[۲۰] این روش انتقال در مقایسه با انتقال از طریق ناقلان شته ناچیز است.[۲۱] با این حال، اگر بذر آلوده زنده بماند، میتواند به عنوان یک منبع مایهٔ تلقیح عمل کند که سپس میتواند توسط ناقلان حشرهای گسترش یابد.
انتقال بیماری همچنین میتواند با کاشت گیاهچههای آلوده در مزارعی که ویروس در آن حضور ندارد رخ دهد. استفاده از گیاهچههای «تمیز» و عاری از ویروس برای کاشت از اهمیت بسیار بالایی برخوردار است.
کنترل
مقاومت شناختهشدهای به PRSV وجود دارد، اگرچه برخی ارقام علامتدارتر از سایرین هستند.[۲۲] چهار روش اصلی برای کنترل PRSV وجود دارد: قرنطینه و جابهجایی جغرافیایی، حذف گیاهان بیمار و توریکشی، محافظت متقاطع، و اصلاح ژنتیکی گیاه میزبان. از آنجا که PRSV یک ویروس ناپایا است و در نتیجه توسط شتهها در یک دورهٔ زمانی بسیار کوتاه به گیاهان سالم منتقل میشود، کنترل حشرهکشی دشوار و غیرعملی است. هنگامی که علائم مشاهده شد، برای سمپاشی علیه شتهها بسیار دیر است – بیماری به احتمال زیاد قبلاً به گیاهان سالم مجاور منتقل شده است. برای اجرای موفقیتآمیز کنترل ناقل، سمپاشیهای پیشگیرانهٔ مکرر مورد نیاز است که به ندرت انجام میشود.
پیشگیری از طریق قرنطینه و جابهجایی جغرافیایی زمینهای زراعی رایج است و در هاوایی، فیلیپین و برزیل رخ داده است.[۲۱][۲۲] هنگامی که مزارع آلوده میشوند، مانند مورد تولیدکنندگان پاپایای اوآهو، تلاشهایی برای انتقال مناطق کشت به مزارع عاری از ویروس صورت میگیرد. این معمولاً فقط یک اجتناب موقت از بیماری است که در نهایت به مزارع جدید گسترش مییابد.
حذف گیاهان بیمار، یا برداشت و نابودی گیاهان آلوده، راهی برای کنترل گسترش PRSV است. این روش زمانی که PRSV شروع به تهاجم به منطقهٔ پونا در هاوایی کرد، به طور ناموفق به کار گرفته شد. سرکوب گسترش PRSV از طریق حذف گیاهان بیمار دشوار است، زیرا این ویروس بسیار سریع و مؤثر توسط شتهها گسترش مییابد.
همچنین میتوان از توریکشی برای جلوگیری از انتشار ویروس توسط ناقلان حشرهای استفاده کرد. تولید در زیر توری برای تولیدکنندگان معیشتی و کوچکمقیاس بسیار پرهزینه است،[۲۲] اما در تایوان به طور مؤثری استفاده شد، زیرا جابهجایی جغرافیایی در چنین جزیرهٔ کوچکی امکانپذیر نبود.[۲۳]
محافظت متقاطع
محافظت متقاطع از نظر عملی، اگرچه نه از نظر نحوهٔ عمل، شبیه به واکسنهای ویروسی در انسانها است. یک سویهٔ خفیف از PRSV به گیاه میزبان وارد میشود که سپس نسبت به سویههای حاد ویروس مقاومت پیدا میکند. توسعهٔ محافظت متقاطع در پاپایا از سال ۱۹۷۹ در هاوایی مورد تحقیق قرار گرفت. تأخیر در شروع علائم و همچنین کاهش شدت علائم به دست آمد. با این حال، تلقیح سویهٔ خفیف نیز باعث بیماریزایی در گیاهان پاپایا شد.[۲۱]
محافظت متقاطع در تایوان، تایلند و هاوایی با استفاده از سویههای HA 5-1 و HA 6-1 انجام میشود.[۲۴]
تراریختهها
دو رقم تراریخته پاپایا وجود دارد، رنگینکمان (Rainbow) و سانآپ (SunUp)، که هر دو توسط دنیس گونسالوس[۲۵] و تیمش ایجاد شدند و برای تولید در ۱ مه ۱۹۹۸ معرفی شدند.[۲۶] رنگینکمان (ایجاد شده توسط دنیس گونسالوس[۲۵]) یک هیبرید F1 است که حاصل تلاقی بین کاپوهو با گوشت زرد و سانآپ با گوشت قرمز میباشد.[۲۷] رنگینکمان در ۷۶٪ از سطح زیر کشت پاپایای هاوایی تولید میشود، در حالی که سانآپ به ندرت به صورت تجاری کشت میشود. تصور میشود سانآپ نسبت به سویههای خارجی PRSV مقاومتر باشد، در حالی که رنگینکمان نسبت به چنین سویههای خارجی ویروس حساسیت نشان داده است.[۲۲] نشان داده شده که ارقام تراریخته در برابر سویههای هاوایی PRSV بسیار مؤثر هستند و در برخی آزمایشها مقاومت کامل در برابر ویروس را در مقایسه با ۱۰۰٪ عفونت در سویههای حساس نشان دادهاند.[۲۸][۲۹]
مقاومت مشتق از بیمارگر (PDR) تکنیک وارد کردن یک قطعهٔ ژن از بیمارگر به گیاه تراریخته است که سپس به گیاه زراعی در برابر بیمارگر مقاومت میدهد. این روش در توسعهٔ پاپایای تراریخته به کار گرفته شد. ژن پروتئین پوششی PRSV با استفاده از تفنگ ژنی تازه اختراعشده به بافت گیاهی بسیار جنینزا وارد شد که منجر به توسعهٔ لاین تراریختهٔ ۵۵–۱ گردید که ثابت شد در کنترل سویههای هاوایی PRSV مؤثر است. PDR احتمالاً از طریق تداخل آرانای عمل میکند.[۳۰]
آزادسازی
ارزیابی انتشار یا عدم انتشار پاپایای تراریخته در ایالات متحده توسط APHIS، EPA و FDA انجام شد. این رخداد از این نظر منحصربهفرد بود که محصولات تراریخته معمولاً توسط عملیات تجاری توسعه و ترویج میشوند، در حالی که پاپایای تراریخته و پروندهٔ آزادسازی آن توسط پژوهشگران دانشگاه هاوایی به تصویب رسید. دانشگاه برای کمک به نجات صنعت پاپایای هاوایی بسیار باانگیزه بود و در نتیجه نقش رهبری در پیشبرد تجاریسازی میوه را بر عهده گرفت.[۲۱]
ژاپن ۲۰٪ از بازار صادراتی هاوایی را تشکیل میدهد. ژاپن از زمان معرفی پاپایای تراریخته در سال ۱۹۹۸ در برابر تأیید آن مقاومت کرده بود. از سال ۲۰۱۱، پاپایای تراریختهٔ رنگینکمان برای صادرات به ژاپن تأیید شده است.[۲۷]
پایداری مقاومت
تاکنون در هاوایی، هیچ شکستی در مقاومت پروتئین پوششی کدگذاریشده در سویههای تراریختهٔ پاپایا رخ نداده است. قرار گرفتن در معرض سویههای خارجی ویروس یک خطر جدی است، زیرا نشان داده شده که پاپایاهای رنگینکمان به PRSV از گوام، تایوان و تایلند حساس هستند.[۲۲][۳۱]
یک لاین تراریختهٔ جدید به نظر میرسد در برابر PRSV از مناطق مختلف مقاوم باشد.[۳۰]
دورگهگیری
تلاشهای زیادی برای انتقال مقاومت به PRSV از گونههای Vasconcellea به پاپایا صورت گرفته است. گیاهان دورگهٔ مقاوم بارور تولید شدهاند، اما شناخته شده نیست که تجاریسازی شده باشند.[۲۴]
تأثیر اقتصادی
در هاوایی، PRSV تأثیرات چشمگیری داشته است. بین سالهای ۱۹۹۲ و ۱۹۹۷، تقریباً تمام مزارع در منطقهٔ پونا تحت تأثیر قرار گرفتند.[۲۱] این یک صنعت محلی به ارزش سالانه ۱۱ میلیون دلار است.[۳۲]
پاپایا برای مصرف شخصی توسط کشاورزان خردهپای معیشتی در بخشهایی از آسیای جنوب شرقی کشت میشود و مازاد اندک آن در بازار به فروش میرسد. PRSV بزرگترین مانع برای تولید پاپایا در فیلیپین است. در سال ۱۹۹۴، خسارت PRSV معادل ۶۰ میلیون پزوی تولید پاپایا را در منطقهٔ تاگالوگ جنوبی نابود کرده بود و سطوح تولید را تا ۸۰٪ کاهش داده بود.[۲۲]
برزیل تقریباً نیمی از تولید جهانی را به خود اختصاص میدهد و هند دومین و نیجریه سومین در تولید جهانی هستند.[۳۳] جابهجاییهای چشمگیر جغرافیایی تولید برای اجتناب از PRSV رایج بوده است. برای نمونه، بین سالهای ۱۹۷۳ و ۱۹۸۴، تولید پاپایا در برزیل به طور قابل توجهی از ریو دو ژانیرو و سائوپائولو به ایالتهای شمالی اسپیریتو سانتو و باهیا منتقل شد.[۲۱] همانند مورد هاوایی، PRSV عموماً به مرور زمان به جابهجاییهای صنعت میرسد. مجموع هزینههای اقتصادی چنین هزینههای توزیع مجدد ناشناخته است، اما احتمالاً قابل توجه است.
واکنش منفی علیه پاپایای تراریخته منجر به تخریب پنهانی مزارع پاپایا در تاریکی شب شده است. در برخی موارد، کشاورزان تا ۱۵٬۰۰۰ دلار از درختان پاپایا را از دست دادهاند.[۳۲]
جستارهای وابسته
- مورین فیچ
- فهرست بیماریهای پاپایا
منابع
- ↑ "About Plant Viruses". Archived from the original on 2014-10-10. Retrieved 2014-10-09.
- ↑ "Species List: Potyviridae". International Committee on Taxonomy of Viruses. Retrieved 28 March 2026.
- ↑ "Description of Plant Viruses: Papaya ringspot virus".
- ↑ Webb; Scott (1965). "Isolation and identification of watermelon on mosaic viruses 1 and 2". Phytopathology. 55: 895–900.
- ↑ Purcifull, D.E.; Hiebert, E. (1979). "Serological Distinction of Watermelon Mosaic Virus Isolates" (PDF). Phytopathology. 69 (2). American Phytopathological Society: 112–116. doi:10.1094/phyto-69-112.
- ↑ Parris, G.K. (1938) A new disease of papaya in Hawaii. Proc. Am. Soc. Hortic. Sci. 36, 263–265.
- ↑ Tripathi, S.; Suzuki, J. N. Y.; Ferreira, S. A.; Gonsalves, D. (2008). "Papaya ringspot virus-P: Characteristics, pathogenicity, sequence variability and control". Molecular Plant Pathology. 9 (3): 269–280. doi:10.1111/j.1364-3703.2008.00467.x. PMC 6640413. PMID 18705869.
- ↑ Olarte Castillo, X. A.; Fermin, G.; Tabima, J.; Rojas, Y.; Tennant, P. F.; Fuchs, M.; Sierra, R.; Bernal, A. J.; Restrepo, S. (2011). "Phylogeography and molecular epidemiology of Papaya ringspot virus". Virus Research. 159 (2): 132–140. doi:10.1016/j.virusres.2011.04.011. PMID 21549774.
- ↑ Gonsalves, D.; Tripathi, S.; Carr, J.B.; Suzuki, J.Y. (2010). "Papaya Ringspot virus". The Plant Health Instructor. American Phytopathological Society. doi:10.1094/PHI-I-2010-1004-01. Archived from the original on 2013-01-18. Retrieved 2012-12-02.
- ↑ Dahal, G.; Lecoq, H.; Albrechtsen, S. E. (1997). "Occurrence of papaya ringspot potyvirus and cucurbit viruses in Nepal". Annals of Applied Biology. 130 (3): 491. doi:10.1111/j.1744-7348.1997.tb07677.x.
- ↑ "The Plant Viruses of Florida and their Inclusions". Archived from the original on 2014-10-09. Retrieved 2014-10-09.
- ↑ "Inclusions of PRSV". Archived from the original on 2014-10-15. Retrieved 2014-10-09.
- ↑ "Papaya Ringspot virus in Squash". Archived from the original on 2014-10-15. Retrieved 2014-10-09.
- ↑ Webb, S.; Hiebert, E.; Kucharek, T.A. (2003). "Identity and distribution of viruses infecting cucurbits in Florida". Phytopathology. 93 (S1). American Phytopathological Society: 89. doi:10.1094/PHYTO.2003.93.6.S1. PMID 18944040.
- ↑ "Description of Plant Viruses: Watermelon mosaic virus 2".
- ↑ "Cylindrical Inclusions of Watermelon Mosaic virus". Archived from the original on 2014-10-15. Retrieved 2014-10-09.
- ↑ Baker, C.A.; Lecoq, H.; Purcifull, D.E. (1991). "Serological and Biological Variability Among Papaya Ringspot Virus Type-W Isolated in Florida" (PDF). Phytopathology. 81 (7): 722–728. doi:10.1094/phyto-81-722.
- ↑ Heu R.A.; Nagata N.M.; Fukada M.T.; Yonahara B.Y. (May 2002). Papaya Ringspot Virus Established on Maui (PDF) (Report). Hawaii Department of Agriculture.
- ↑ Kalleshwaraswamy CM, Kumar NK. (2008). "Transmission efficiency of Papaya ringspot virus by three aphid species". Phytopathology. 98 (5): 541–6. doi:10.1094/PHYTO-98-5-0541. PMID 18943221.
- ↑ Bayot, R. G., Villegas, V. N., Magdalita, P. M., Jovellana, M. D., Espino, T. M., & Exconde, S. B. (1990). Seed transmissibility of papaya ringspot virus. Philippine Journal of Crop Science, 15(2), 107–111.
- 1 2 3 4 5 6 Gonsalves, D. (1998). "CONTROL OF PAPAYA RINGSPOT VIRUS IN PAPAYA: A Case Study". Annual Review of Phytopathology. 36: 415–437. doi:10.1146/annurev.phyto.36.1.415. PMID 15012507. S2CID 28864226.
- 1 2 3 4 5 6 Papaya Ringspot Virus-Resistant (PRVR) Papaya "Why genetically engineer virus resistance into papaya?" Fact Sheet (PDF) (Report). USAID, ABSP & Cornell University. September 10, 2004.
- ↑ Fuller G.B. (2005). Use and Regulation of Genetically Modified Organisms (PDF) (Report). Asian Productivity Organization. pp. 31–21. Archived from the original (PDF) on 2011-11-24.
- 1 2 Ordaz-Pérez, Daniela; Gámez-Vázquez, Josué; Hernández-Ruiz, Jesús; Espinosa-Trujillo, Edgar; Rivas-Valencia, Patricia; Castro-Montes, Ivonne (2 September 2017). "Resistencia de Vasconcellea cauliflora al Virus de la mancha anular de la papaya-potyvirus (PRSV-P) y su introgresión en Carica papaya". Revista Mexicana de Fitopatología, Mexican Journal of Phytopathology. 35 (3). doi:10.18781/r.mex.fit.1703-4.
- 1 2 "The man behind the Rainbow - Biology Fortified, Inc". Biology Fortified, Inc. (in American English). 2012-06-21. Retrieved 2017-08-07.
- ↑ "Dennis Gonsalves: Public Sector Hero". Cornell Alliance for Science (in English). 2015-11-02. Archived from the original on 2017-08-08. Retrieved 2017-08-07.
- 1 2 "Hawaii Grown Papayas".
- ↑ Ferreira, S. A.; Pitz, K. Y.; Manshardt, R.; Zee, F.; Fitch, M.; Gonsalves, D. (2002). "Virus Coat Protein Transgenic Papaya Provides Practical Control of Papaya ringspot virusin Hawaii". Plant Disease. 86 (2): 101–105. doi:10.1094/PDIS.2002.86.2.101. PMID 30823304.
- ↑ Tripathi S, Suzuki J, Gonsalves D (2007). "Development of Genetically Engineered Resistant Papaya for Papaya ringspot virus in a Timely Manner: A Comprehensive and Successful Approach". Development of genetically engineered resistant papaya for papaya ringspot virus in a timely manner: a comprehensive and successful approach. Methods in Molecular Biology. Vol. 354. pp. 197–240. doi:10.1385/1-59259-966-4:197. ISBN 978-1-59259-966-0. PMID 17172756.
- 1 2 Mishra, Ritesh; Gaur, Rajarshi Kumar; Patil, Basavaprabhu L. (2016). "Current Knowledge of Viruses Infecting Papaya and Their Transgenic Management". Plant Viruses: Evolution and Management. pp. 189–203. doi:10.1007/978-981-10-1406-2_11. ISBN 978-981-10-1405-5.
- ↑ Tennant, P. F. (1994). "Differential Protection Against Papaya Ringspot Virus Isolates in Coat Protein Gene Transgenic Papaya and Classically Cross-Protected Papaya". Phytopathology. 84 (11): 1359–1366. doi:10.1094/Phyto-84-1359.
- 1 2 Kelleher J.S. (August 21, 2011). "Hawaii's geneticially modified papayas attacked". The Maui News. Archived from the original on March 6, 2012.
- ↑ Sarris, Alexander (2003). Medium-term prospects for agricultural commodities: projections to the year 2010 (Vol. 1). Rome: Food and Agricultural Organization (FAO). p. 118. ISBN 92-5-105077-5.
پیوند به بیرون
- توصیف ویروسهای گیاهی: ویروس لکه حلقوی پاپایا
- ویروسهای گیاهی آنلاین:ویروس لکه حلقوی پاپایا
- ویروسهای گیاهی آنلاین:ویروس موزاییک هندوانه ۱
- ICTVdB - پایگاه دادهٔ جهانی ویروسها:پوتیویروس لکه حلقوی پاپایا
- ICTVdB - پایگاه دادهٔ جهانی ویروسها: ویروس موزاییک هندوانه ۱
- گروههای خانواده - روش بالتیمور بایگانیشده در ۲۰۱۳-۰۳-۳۰ توسط Wayback Machine
- استاد دانش محصول: ویروس لکه حلقوی پاپایا (سویهٔ P)
- انجمن بیماریشناسی گیاهی آمریکا: ویروس لکه حلقوی پاپایا
- بیماریهای گیاهی ویروسی