باکتریهای گوگردی ارغوانی
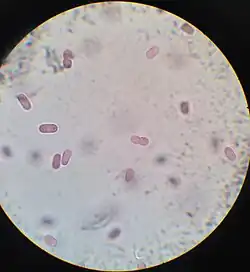
باکتریهای گوگردی ارغوانی (PSB) بخشی از گروهی از پروتئوباکتریا هستند که قادر به انجام فتوسنتز بوده و در مجموع «باکتریهای ارغوانی» نامیده میشوند. آنها بیهوازی یا خرد هوازی هستند و اغلب در محیطهای آبی لایهلایه، از جمله چشمههای آب گرم، تودههای آب راکد و همچنین بسترهای میکروبی در پهنه میانکشندی یافت میشوند.[۱][۲] برخلاف گیاهان، جلبکها و سیانوباکتریها، باکتریهای گوگردی ارغوانی از آب بهعنوان عامل کاهنده استفاده نمیکنند و در نتیجه اکسیژن تولید نمیکنند. در عوض، آنها میتوانند از گوگرد به شکل سولفید یا تیوسولفات بهعنوان دهندهٔ الکترون در مسیرهای فتوسنتزی خود استفاده کنند. برخی گونهها میتوانند از H2، Fe2+ یا NO2− نیز استفاده کنند.[۱] گوگرد اکسید میشود و دانههای گوگرد عنصری تولید میکند. این گوگرد نیز میتواند در ادامه اکسید شده و اسید سولفوریک تشکیل دهد.
باکتریهای گوگردی ارغوانی عمدتاً به دو خانوادهٔ کروماتیاسی و اکتوتایورودوسپیراسه تقسیم میشوند که بهترتیب دانههای گوگردی درونسلولی و برونسلولی تولید میکنند و در ساختار غشاهای درونی خود نیز تفاوتهایی دارند.[۱] آنها بخشی از راستهٔ کروماتیالها را تشکیل میدهند که در ردهٔ گاماپروتئوباکتریا قرار دارد. سردهٔ هالوثیوبالیوس نیز در راستهٔ کروماتیالها قرار دارد و خانوادهٔ ویژهٔ خود را دارد، اما فتوسنتزی نیست.
ویژگیهای باکتریهای گوگردی ارغوانی
رنگیزههای اصلی فتوسنتزی: باکتریوکلروفیلهای a یا b
محل رنگیزههای فتوسنتزی: غشای پلاسمایی و کروماتوفور (مجموعههای غشایی لایهای که با غشای پلاسمایی پیوستگی دارند)
دهندههای الکترون فتوسنتزی: H2، H2S، S
رسوب گوگرد: درون سلول
نوع متابولیسم: فتولیتواتوتروف[۳]
بومشناسی
زیستگاه
باکتریهای گوگردی ارغوانی عموماً در نواحی بیهوازیِ روشنِ دریاچهها و دیگر زیستگاههای آبی، که در آنها هیدروژن سولفید تجمع مییابد، و همچنین در «چشمههای گوگردی» یافت میشوند؛ در این چشمهها، هیدروژن سولفیدی که از طریق فرایندهای ژئوشیمیایی یا زیستی تولید میشود میتواند موجب شکلگیری شکوفاییهایی از باکتریهای گوگردی ارغوانی شود. شرایط بیهوازی برای فتوسنتز ضروری است؛ این باکتریها نمیتوانند در محیطهای اکسیژندار بهخوبی رشد کنند.[۴]
مناسبترین دریاچهها برای رشد باکتریهای گوگردی ارغوانی، دریاچههای مروُمیکتیک (دائماً لایهبندیشده) هستند.[۵] دریاچههای مروُمیکتیک به این دلیل لایهبندی میشوند که در بخش پایینی خود آب متراکمتر (معمولاً شور) و در نزدیکی سطح آب کمتراکمتر (معمولاً شیرین) دارند. رشد باکتریهای گوگردی ارغوانی با لایهبندی در دریاچه سراسرآمیخته نیز پشتیبانی میشود.[۵] این دریاچهها بهصورت حرارتی لایهبندی میشوند؛ در بهار و تابستان، آب سطحی گرم شده و در نتیجه از آب سردتر زیرین کمتراکمتر میشود. این وضعیت لایهبندی بهاندازهٔ کافی پایداری ایجاد میکند تا رشد باکتریهای گوگردی ارغوانی امکانپذیر شود. اگر سولفات کافی برای پشتیبانی از احیای سولفات وجود داشته باشد، سولفیدی که در رسوبات تولید میشود به سمت بالا و درون آبهای بیهوازیِ کف منتشر میشود و باکتریهای گوگردی ارغوانی میتوانند تودههای متراکمی از سلولها، موسوم به شکوفایی، تشکیل دهند که معمولاً همراه با باکتریهای فتوتروف سبز هستند.
باکتریهای گوگردی ارغوانی همچنین در بسترهای میکروبی میانکشندی یافت میشوند و یکی از اجزای مهم آنها هستند. پوششهایی مانند بستر میکروبی سیپویست بهدلیل جریان جزرومد و ورود آب شیرین، محیطهایی پویا دارند و در نتیجه محیطهایی با لایهبندی مشابه دریاچههای مروُمیکتیک ایجاد میکنند. رشد باکتریهای گوگردی ارغوانی هنگامی امکانپذیر میشود که گوگرد حاصل از مرگ و تجزیهٔ ریزسازوارههای موجود در لایههای بالاتر در این حوضچههای میانکشندی تأمین شود.[۱] لایهبندی و وجود منبع گوگرد به باکتری گوگردی ارغوانی اجازه میدهد در این حوضچههای میانکشندی که پوششهای میکروبی در آنها وجود دارند رشد کنند. باکتریهای گوگردی ارغوانی میتوانند با ترشح مواد پلیمری خارجسلولی که قادرند رسوبات موجود در حوضچهها را به یکدیگر متصل کنند، به پایدارسازی رسوبات این محیطهای پوشش میکروبی کمک کنند.[۶][۷]
اهمیت بومشناختی
باکتریهای گوگردی ارغوانی میتوانند با مشارکت در چرخه عناصر غذایی و استفاده از متابولیسم خود برای تغییر محیط پیرامونشان، بر محیط زیست اثر بگذارند. آنها میتوانند نقش مهمی در تولید اولیه داشته باشند و از این طریق، از طریق تثبیت کربن، بر چرخه کربن اثر بگذارند.[۲] باکتریهای گوگردی ارغوانی همچنین در چرخه فسفر[۸] و چرخه آهن زیستگاه خود نقش دارند.[۹] از طریق بالا آمدن این جانداران، فسفر، که مادهای مغذی و محدودکننده در لایهٔ اکسیژندار دریاچههاست، بازیافت شده و در اختیار باکتریهای هتروتروف قرار میگیرد.[۸] این امر نشان میدهد که اگرچه باکتریهای گوگردی ارغوانی در لایهٔ بیهوازی زیستگاه خود یافت میشوند، میتوانند با تأمین مواد مغذی معدنی برای لایهٔ بالاییِ اکسیژندار، رشد بسیاری از جانداران هتروتروف را تقویت کنند. شکل دیگری از بازیافت مواد مغذی معدنی و ماده آلی محلول توسط باکتریهای گوگردی ارغوانی از طریق زنجیره غذایی انجام میشود؛ آنها بهعنوان منبع غذایی برای جانداران دیگر عمل میکنند.[۸]
برخی باکتریهای گوگردی ارغوانی برای بهینهسازی شرایط محیطی بهمنظور رشد خود تکامل یافتهاند. برای نمونه، در گودال سیاه ساوث اندروس در باهاما، باکتریهای گوگردی ارغوانی ویژگی جدیدی پیدا کردهاند که به آنها امکان میدهد از متابولیسم خود برای تبدیل انرژی نوری به انرژی گرمایی و انتشار آن در محیط اطراف استفاده کنند.[۱۰] بهدلیل ناکارآمدی کاروتنوئیدها یا مراکز برداشت نور این جانداران، آنها قادرند انرژی نوری اضافی را به شکل انرژی گرمایی آزاد کنند.[۱۰] این سازگاری به آنها اجازه میدهد با کارایی بیشتری در محیط خود رقابت کنند. آنها با افزایش دمای آب پیرامون خود، کنام ایجاد میکنند که رشد خودشان را پشتیبانی میکند و در عین حال به آنها امکان میدهد بر جانداران دیگری که تحمل دمای بالا ندارند غلبه کنند.
رشد در دریاچههای مروُمیکتیک
دریاچههای مروُمیکتیک دریاچههایی با لایهبندی دائمی هستند که بر اثر شیب غلظت نمک ایجاد میشوند. لایهٔ پایینیِ بسیار شور از لایهٔ بالاییِ آب شیرین بهوسیلهٔ کموکلاین جدا میشود؛ جایی که شوری بهشدت تغییر میکند. بهدلیل تفاوت زیاد چگالی، لایههای بالایی و پایینی با یکدیگر مخلوط نمیشوند و در نتیجه در زیر کموکلاین محیطی بیهوازی ایجاد میشود.[۱۱] این محیط بیهوازی همراه با نور و دسترسی کافی به سولفید، برای باکتریهای گوگردی ارغوانی ایدئال است.[۱۲][۱۱]
مطالعهای که در دریاچه ماهونی انجام شد نشان داد که باکتریهای گوگردی ارغوانی در بازیافت مادهٔ مغذی معدنی، یعنی فسفر، نقش دارند.[۱۱] بالا آمدن باکتریهای گوگردی ارغوانی به لایهٔ بالایی آب، منبعی از فسفر متصلشده ایجاد میکند و فعالیت فسفاتاز باعث آزاد شدن این فسفر در آب میشود. سپس فسفر محلول توسط باکتریهای هتروتروف جذب شده و در فرایندهای رشد و نمو مورد استفاده قرار میگیرد. به این ترتیب، باکتریهای گوگردی ارغوانی در چرخه فسفر مشارکت کرده و از هدررفت مواد مغذی جلوگیری میکنند.[۱۱]
مطالعهای در سوئیس نشان داد که در میان جانداران باکتری گوگردی ارغوانی موجود در دریاچه کادانیو، سویهٔ Cad16T بالاترین نرخ جذب CO2 را داشت.[۲]
نشانگرهای زیستی
باکتریهای گوگردی ارغوانی رنگیزههای مزدوجی به نام کاروتنوئید تولید میکنند که در مجموعه برداشت نور نقش دارند. هنگامی که این جانداران میمیرند و به کف فرو میروند، برخی از مولکولهای رنگیزهای آنها به شکل تغییریافته در رسوبات حفظ میشوند. یکی از مولکولهای کاروتنوئیدی تولیدشده، اوکنون، بهصورت دیاژنتیکی تغییر یافته و به نشانگر زیستی اوکان تبدیل میشود. کشف اوکان در رسوبات دریایی نشاندهندهٔ حضور باکتریهای گوگردی ارغوانی در زمان دفن رسوبات است. اوکان در یک برونزد سنگ رسوبی در شمال استرالیا که قدمت آن به ۱٫۶۴ میلیارد سال پیش میرسد شناسایی شده است.[۱۳] نویسندگان این مطالعه نتیجه گرفتند که بر اساس وجود نشانگر زیستی باکتریهای گوگردی ارغوانی، اقیانوس پیشینزیستی دیرینه در اعماق خود باید بیهوازی و سولفیدی بوده باشد. این یافته شواهدی در حمایت از فرضیه اقیانوس کانفیلد فراهم میکند.
زیستپالایی
باکتریهای گوگردی ارغوانی میتوانند در کاهش ترکیبات آلی زیانآور محیطزیستی و انتشار بو در تالابهای فاضلاب کود دامی نقش داشته باشند؛ جایی که رشد آنها شناخته شده است. ترکیبات زیانآوری مانند متان، که یک گاز گلخانهای است، و هیدروژن سولفید، که ترکیبی سمی و دارای بوی تند است، ممکن است در تالابهای فاضلاب یافت شوند. باکتریهای گوگردی ارغوانی میتوانند به کاهش غلظت هر دوی این مواد و ترکیبات دیگر کمک کنند.[۱۴]
فتوهمسانسازی، جذب کربن توسط جانداران از طریق فتوسنتز است. هنگامی که باکتریهای گوگردی ارغوانی در تالابهای فاضلاب فتوسنتز انجام میدهند، میتوانند از کربن موجود در ترکیبات زیانآوری مانند متان[۱۵] بهعنوان منبع کربن استفاده کنند. این فرایند متان، یعنی یک گاز گلخانهای، را از تالاب حذف کرده و اثر آلودگی جوی ناشی از تالابها را کاهش میدهد.
H2S میتواند در همین فرایندهای فتوسنتزی که ترکیبات آلی را حذف میکنند، بهعنوان منبع گوگرد برای باکتریهای گوگردی ارغوانی عمل کند. استفاده از H2S بهعنوان عامل کاهنده توسط باکتریهای گوگردی ارغوانی باعث حذف آن از تالاب شده و به کاهش بو و سمیت در تالابها منجر میشود.[۱۶][۱۷][۱۸]
جستارهای وابسته
منابع
- 1 2 3 4 Hunter, C. Neil; Daldal, Fevzi; Thurnauer, Marion C.; Beatty, J. Thomas, eds. (2009). The Purple Phototrophic Bacteria. Advances in Photosynthesis and Respiration (in English). Vol. 28. doi:10.1007/978-1-4020-8815-5. ISBN 978-1-4020-8814-8.
- 1 2 3 Storelli, Nicola; Peduzzi, Sandro; Saad, Maged; Frigaard, Niels-Ulrik; Perret, Xavier; Tonolla, Mauro (May 2013). "CO2 assimilation in the chemocline of Lake Cadagno is dominated by a few types of phototrophic purple sulfur bacteria". FEMS Microbiology Ecology. 84 (2): 421–432. Bibcode:2013FEMME..84..421S. doi:10.1111/1574-6941.12074. PMID 23330958.
- ↑ Usha Mina, Pranav kumar (2014). Life science funtamental and practice.
- ↑ Proctor, Lita M (1997). "Nitrogen-fixing, photosynthetic, anaerobic bacteria associated with pelagic copepods" (PDF). Aquatic Microbial Ecology. 12: 105–113. doi:10.3354/ame012105.
- 1 2 Van Germerden, Hans; Mas, Jordi (1995). Anoxygenic photosynthetic bacteria. Dordrecht: Kluwer Academic Publishers. pp. 50–57. ISBN 978-0-306-47954-0. Retrieved 6 October 2017.
- ↑ Hubas, Cédric; Jesus, Bruno; Ruivo, Mickael; Meziane, Tarik; Thiney, Najet; Davoult, Dominique; Spilmont, Nicolas; Paterson, David M.; Jeanthon, Christian (2013). "Proliferation of Purple Sulphur Bacteria at the Sediment Surface Affects Intertidal Mat Diversity and Functionality". PLOS ONE. 8 (12) e82329. Bibcode:2013PLoSO...882329H. doi:10.1371/journal.pone.0082329. PMC 3855458. PMID 24340018.
- ↑ Stal, Lucas J. (2010). "Microphytobenthos as a biogeomorphological force in intertidal sediment stabilization". Ecological Engineering. 36 (2): 236–245. Bibcode:2010EcEng..36..236S. doi:10.1016/j.ecoleng.2008.12.032.
- 1 2 3 Overmann, Jorg (1997). Advances in Microbial Ecology. Vol. 15. Boston, MA: Springer US. pp. 252–258, 278, 279. doi:10.1007/978-1-4757-9074-0. ISBN 978-1-4757-9074-0. S2CID 27575273.
- ↑ Haaijer, Suzanne; Crienen, Gijs; Jetten, Mike; Op den Camp, Huub (2012-02-03). "Anoxic Iron Cycling Bacteria from an Iron Sulfide- and Nitrate-Rich Freshwater Environment". Frontiers in Microbiology. 3: 26. Bibcode:2012FrMic...300026H. doi:10.3389/fmicb.2012.00026. PMC 3271277. PMID 22347219.
- 1 2 Herbert, Rodney; Gall, Andrew; Maoka, Takashi; Cogdell, Richard; Robert, Bruno; Takaichi, Shinichi; Schwabe, Stephanie (Feb 2008). "Phototrophic purple sulfur bacteria as heat engines in the South Andros Black Hole". Photosynthesis Research. 95 (2–3): 261–268. Bibcode:2008PhoRe..95..261H. doi:10.1007/s11120-007-9246-1. PMID 17906940. S2CID 8240348.
- 1 2 3 4 Overmann, Jorg; Beatty, J. Thomas; Hall, Ken J. (27 June 1996). "Purple Sulfur Bacteria Control the Growth of Aerobic Heterotrophic Bacterioplankton in a Meromictic Salt Lake". American Society for Microbiology (in English). 62 (9): 3251–8. Bibcode:1996ApEnM..62.3251O. doi:10.1128/aem.62.9.3251-3258.1996. PMC 1388937. PMID 16535399.
- ↑ Rogozin, D. Yu; Zykov, V. V.; Tarnovskii, M. O. (1 January 2016). "Dynamics of purple sulfur bacteria in a meromictic saline Lake Shunet (Khakassia, Siberia) in 2007–2013". Microbiology (in English). 85 (1): 93–101. doi:10.1134/S0026261716010100. PMID 27301131. S2CID 18715218.
- ↑ Brocks, Jochen J.; Schaeffer, Philippe (2008-03-01). "Okenane, a biomarker for purple sulfur bacteria (Chromatiaceae), and other new carotenoid derivatives from the 1640 Ma Barney Creek Formation". Geochimica et Cosmochimica Acta. 72 (5): 1396–1414. Bibcode:2008GeCoA..72.1396B. doi:10.1016/j.gca.2007.12.006.
- ↑ McGarvey, J.A.; Miller, W.G.; Lathrop, J.R.; Silva, C.J.; Bullard, G.L. (2009). "Induction of purple sulfur bacterial growth in dairy wastewater lagoons by circulation". Letters in Applied Microbiology. 49 (4): 427–433. doi:10.1111/j.1472-765X.2009.02683.x. PMID 19674295.
- ↑ Leytem, A.B.; Bjorneberg, D.L.; Koehn, A.C.; Moraes, L.E.; Kebreab, E.; Dungan, R.S. (2017). "Methane emissions from dairy lagoons in the western United States". Journal of Dairy Science. 100 (8): 6785–6803. doi:10.3168/jds.2017-12777. PMID 28601464.
- ↑ "Hydrogen sulfide." http://www.npi.gov.au/resource/hydrogen-sulfide National Pollutant Inventory, Australian Government Department of Environment and Energy, [www.npi.gov.au/resource/hydrogen-sulfide](http://www.npi.gov.au/resource/hydrogen-sulfide).
- ↑ Caumette, P (1993). "Ecology and physiology of phototrophic bacteria and sulfate-reducing bacteria in marine salterns". Experientia. 49 (6–7): 473–481. Bibcode:1993Expea..49..473C. doi:10.1007/BF01955148. S2CID 40165089.
- ↑ Dungan, RS; Leytem, AB (2015). "Detection "of Purple Sulfur Bacteria in Purple and Non-Purple Dairy Wastewaters". Journal of Environmental Quality. 44 (5): 1550–1555. doi:10.2134/jeq2015.03.0128. PMID 26436272.
- گاماپروتئوباکتریا