بستر میکروبی
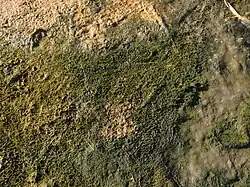
بستر میکروبی (Microbial mat) یک لایهٔ چندتایی یا بیوفیلمی از کلونیهای میکروبی است که عمدتاً از باکتریها و/یا باستانیان (آرکئا) تشکیل شده است. بسترهای میکروبی در سطوح تماسِ موادِ گوناگون رشد میکنند؛ عمدتاً روی بسترهای غوطهور در آب یا مرطوب، اما شمار اندکی از آنها در بیابانها نیز زنده میمانند.[۱] شماری از آنها نیز بهعنوان درونهمزیست در جانوران یافت میشوند.
بسترهای میکروبی اگرچه در ضخیمترین حالت تنها چند سانتیمتر ضخامت دارند، اما گسترهٔ وسیعی از محیطهای شیمیاییِ درونی را ایجاد میکنند. در نتیجه، آنها عموماً از لایههایی از میکروارگانیسمها تشکیل شدهاند که معمولاً از گونههای بههممرتبطی هستند که میتوانند از مواد شیمیاییِ غالب در لایهٔ خود تغذیه کنند یا دستکم آنها را تحمل نمایند. در شرایط مرطوب، این بسترها معمولاً توسط موادِ لزجِ ترشحشده توسط میکروارگانیسمها در کنار یکدیگر نگه داشته میشوند. در بسیاری از موارد، برخی از باکتریها شبکههای درهمتنیدهای از رشتهها تشکیل میدهند که باعثِ افزایش استحکام و مقاومت بستر میشود. شناختهشدهترین شکلهای فیزیکیِ آنها، بسترهای مسطح و ستونهای کوتاهِ موسوم به استروماتولیتها هستند، اما شکلهای کروی نیز در میان آنها دیده میشود.
بسترهای میکروبی با قدمتی در حدود ۳۵۰۰ میلیون سال، قدیمیترین شکلِ حیات در روی زمین هستند که شواهدِ فسیلیِ محکمی برای آنها وجود دارد و مهمترین اعضا و حافظانِ اکوسیستمهای سیارهٔ زمین بودهاند. آنها در ابتدا برای تأمین انرژی و «غذای» شیمیاییِ خود به چاههای گرمابی وابسته بودند، اما تکاملِ قابلیت فتوسنتز به آنها اجازه داد تا با بهرهگیری از یک منبع انرژیِ در دسترستر (یعنی نور خورشید)، در خارج از این محیطها نیز تکثیر شوند. مرحلهٔ نهایی و مهمترین بخش از این رهاییبخشی، تکاملِ فتوسنتزِ اکسیژنزا بود؛ چرا که مواد شیمیاییِ اولیهٔ موردنیاز برای این فرایند، تنها کربن دیاکسید و آب است.
در نتیجه، بسترهای میکروبی شروع به تولید اتمسفری کردند که امروزه میشناسیم و در آن اکسیژن آزاد، یک عنصرِ حیاتی است. تقریباً در همان زمان، آنها احتمالاً زادگاهِ سلولهای پیچیدهترِ یوکاریوتی نیز بودهاند؛ سلولهایی که تمامیِ ارگانیسمهای چندسلولی از آنها ساخته شدهاند.[۲] بسترهای میکروبی تا پیش از انقلاب بستر کامبرین بهطور فراوان در بستر کمعمقِ دریاها حضور داشتند، اما پس از آن، با افزایشِ تواناییِ نقبزنیِ جانوران، سطوحِ بسترها شکسته شد و آبِ حاوی اکسیژن به لایههای عمیقتر نفوذ کرد و میکروارگانیسمهای بیهوازی (حساس به اکسیژن) که در آنجا میزیستند را مسموم ساخت. اگرچه این انقلاب بسترهای میکروبی را از بسترِ نرمِ دریاهای کمعمق به بیرون راند، اما آنها همچنان در بسیاری از محیطهایی که نقبزنی در آنها محدود یا غیرممکن است (مانند بسترها و سواحل سنگی، و تالابهای پُرنمک و لبشور) به شکوفایی خود ادامه میدهند. آنها همچنین در کفِ اقیانوسهای عمیق نیز یافت میشوند.
از آنجا که بسترهای میکروبی تواناییِ استفاده از تقریباً همهچیز را بهعنوان «غذا» دارند، علاقهٔ چشمگیری برای کاربردهای صنعتیِ آنها، بهویژه در زمینه تصفیه آب و پاکسازی آلودگی وجود دارد.
توصیف
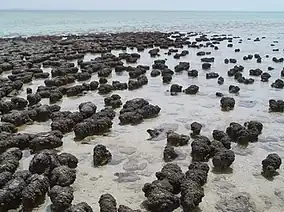
بسترهای میکروبی ممکن است با عناوینِ بسترهای جلبکی و بسترهای باکتریایی نیز نامیده شوند. آنها نوعی بیوفیلم هستند که بهاندازهٔ کافی بزرگاند تا با چشم غیرمسلح دیده شوند و آنقدر مستحکماند که بتوانند در برابر تنشهای فیزیکیِ متوسط دوام بیاوردند. این کلونیهای باکتریایی روی سطوح در انواع مختلفِ مرزهای تماسی تشکیل میشوند؛ برای مثال در مرز تماس میانِ آب و رسوب یا صخرههای کف دریا، میانِ هوا و سنگ یا رسوب، میانِ خاک و سنگبستر، و غیره. چنین سطوحِ تماسی شیبهای شیمیاییِ (Chemical gradients) عمودی ایجاد میکنند (یعنی تغییراتِ عمودی در ترکیب شیمیایی) که باعث میشود لایههای مختلف برای انواع مختلفی از باکتریها مناسب باشند و در نتیجه، بسترهای میکروبی را به لایههایی تقسیم میکنند که ممکن است مرزِ کاملاً مشخصی داشته باشند یا بهطور تدریجی در یکدیگر ادغام شوند.[۳] میکروبهای گوناگون میتوانند با استفاده از «نانوسیمها» برای انتقال الکترون از واکنشهای متابولیکیِ خود (تا عمقِ دو سانتیمتریِ رسوبات)، بر محدودیتهایِ نفوذ و انتشار غلبه کنند؛ برای مثال، الکترونها میتوانند از واکنشهای شاملِ سولفید هیدروژن در اعماقِ رسوبات، به اکسیژنِ موجود در آب (که بهعنوان گیرندهٔ الکترون عمل میکند) منتقل شوند.[۴][۵]
شناختهشدهترین انواعِ بستر میکروبی احتمالاً بسترهای لمینتدارِ (لایه لایه) مسطح هستند که روی سطوح تقریباً افقی تشکیل میشوند، و همچنین استروماتولیتها (ستونهای کوتاهی که با حرکت آهستهٔ میکروبها به سمت بالا برای جلوگیری از مدفونشدنِ زیر رسوبات تهنشینشده در آب ساخته میشوند). با این حال، بسترهای کروی نیز وجود دارند؛ برخی در بخشِ خارجیِ گلولههای سنگی یا مواد جامدِ دیگر قرار دارند و برخی دیگر «درون» کرههای رسوبی تشکیل میشوند.[۳]
ساختار
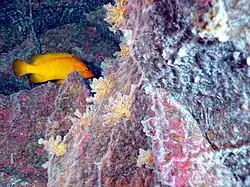
یک بستر میکروبی از چندین لایه تشکیل شده است که در هر یک از آنها نوعِ خاصی از میکروارگانیسمها (عمدتاً باکتریها) غالب هستند. اگرچه ترکیبِ بسترهای منفرد بسته به محیطِ آنها متفاوت است، اما بهعنوان یک قاعده کلی، محصولاتِ جانبیِ هر گروه از میکروارگانیسمها، بهعنوان «غذا» برای گروههای دیگر عمل میکند. در واقع، هر بستر زنجیرهٔ غذاییِ خاص خود را تشکیل میدهد و یک یا چند گروه در رأس این زنجیره قرار دارند، زیرا محصولات جانبیِ آنها توسط گروههای دیگر مصرف نمیشود. انواع مختلفِ میکروارگانیسمها بر اساس مزیت نسبیِ خود برای زندگی در یک لایهٔ خاص، بر آن لایه مسلط میشوند. به بیان دیگر، آنها بهجای اینکه لزوماً در راحتترین و مطلوبترین مکانِ ممکن زندگی کنند، در موقعیتهایی قرار میگیرند که میتوانند عملکرد بهتری نسبت به سایر گروهها داشته باشند — روابط بومشناختی (اکولوژیک) میان گروههای مختلف، ترکیبی از رقابت و همکاری است. از آنجا که قابلیتهای متابولیکیِ باکتریها (اینکه چه چیزی میتوانند «بخورند» و چه شرایطی را میتوانند تحمل کنند) عموماً به فیلوژنی آنها بستگی دارد (یعنی نزدیکترین گروهها از نظر تکاملی، مشابهتترین متابولیسمها را دارند)، لایههای مختلف یک بستر، هم بر اساس مشارکتهای متابولیکیِ متفاوتِ آنها در جامعه و هم بر اساس روابط فیلوژنتیکیشان دستهبندی میشوند.
در یک محیطِ مرطوب که نور خورشید منبع اصلیِ انرژی است، لایههای بالایی عموماً تحت تسلط سیانوباکتریهای هوازی و فتوسنتزکننده (باکتریهای سبز-آبی که رنگِ آنها بهدلیلِ داشتن کلروفیل است) هستند، در حالی که لایههای زیرین عموماً در سلطهٔ باکتریهای بیهوازی و کاهندهٔ سولفات قرار دارند.[۶] گاهی لایههای میانیای نیز وجود دارند (که تنها در طول روز اکسیژندار میشوند) و محل زندگی باکتریهای بیهوازی اختیاری هستند. برای نمونه، در حوضچههای پُرنمک نزدیک گررو نگرو (Guerrero Negro) در مکزیک، انواع مختلفی از بسترها کاوش شدند. در این میان برخی بسترها دارای یک لایهٔ ارغوانیِ میانی بودند که محل زیستِ باکتریهای ارغوانی فتوسنتزکننده بود.[۷] برخی دیگر از بسترها دارای لایهٔ سفیدی از باکتریهای شیمیپروردِ اکسیدکنندهٔ گوگرد و در زیر آن، یک لایهٔ زیتونیرنگ از باکتریهای گوگردی سبز فتوسنتزکننده و باکتریهای هتروتروف بودند.[۸] با این حال، این ساختار لایهای در طول روز ثابت نیست: برخی گونههای سیانوباکتری در هنگام صبح به سمتِ لایههای عمیقتر مهاجرت میکنند و عصر به جایگاه خود بازمیگردند تا در میانهٔ روز از تابش شدیدِ نور خورشید و پرتوهای فرابنفش در امان بمانند.[۸][۹]
بسترهای میکروبی معمولاً توسطِ مواد لزجِ خارجسلولی که خودشان ترشح میکنند، در کنار یکدیگر نگه داشته شده و به بستر (محل استقرار) خود متصل میشوند. در بسیاری از موارد، برخی از باکتریها رشتههایی (تارهایی) را شکل میدهند که در هم گره میخورند و در نتیجه مقاومت و یکپارچگیِ ساختاریِ کلونی را افزایش میدهند، بهویژه اگر این رشتهها دارای غلاف (پوششهای خارجی مستحکم) باشند.[۳]
این ترکیب از مواد لزج و تارهای درهمتنیده، میکروارگانیسمهای دیگری مانند پروتوزوآها (که برخی از آنها از باکتریهای سازندهٔ بستر تغذیه میکنند) و دیاتومها را نیز به خود جذب میکند تا بخشی از جامعهٔ این بستر شوند. دیاتومها غالباً سطحِ بسترهای میکروبیِ غوطهور در آب را با پوششهای نازک و پوستینمانندی مهر و موم میکنند.[۳]
ضخامتِ بسترهای دریایی ممکن است به چند سانتیمتر برسد، که تنها چند میلیمترِ بالاییِ آن دارای اکسیژن است.[۱۰]
انواع محیطهای کلونیسازیشده
بسترهای میکروبیِ زیر آب بهگونهای توصیف شدهاند که از شیبهای شیمیاییِ (Chemical gradients) محلی (تغییرات موضعی در ترکیب شیمیایی محیط) بهرهبرداری کرده و تا حدودی آنها را تغییر میدهند. بیوفیلمهای نازکتر و با پیچیدگیِ کمتر در بسیاری از محیطهای زیرهوایی (حاشیهٔ خشکی و هوا) —برای مثال روی صخرهها، ذراتِ معدنی مانند شن، و درونِ خاک— میزیند. آنها باید بتوانند دورههای طولانی را بدون آبِ مایع، و اغلب در حالتِ خواب (Dormant) دوام بیاورند. بسترهای میکروبی که در مناطقِ کشندی (جزر و مدی) مانند مردابِ نمکی سیپویست (Sippewissett salt marsh) زندگی میکنند، معمولاً حاوی نسبتِ بالایی از میکروارگانیسمهای مشابه هستند که میتوانند ساعتها بدون آب زنده بمانند.[۳]
بسترهای میکروبی و بیوفیلمهای با پیچیدگیِ کمتر، در محدودهٔ دمایی ۴۰- درجهٔ سلسیوس تا ۱۲۰+ درجهٔ سلسیوس یافت میشوند، چرا که تغییرات فشار بر روی نقطهای که آب در آن مایع باقی میماند، تأثیر میگذارد.[۳]
آنها حتی بهعنوانِ ارگانیسمهای درونهمزیست در برخی جانوران، مانند رودهٔ عقبیِ برخی از خارپوستان، ظاهر میشوند.[۱۱]
اهمیت اکولوژیک و زمینشناختی

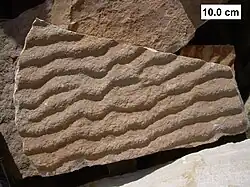
بسترهای میکروبی از تمامی انواعِ متابولیسم و استراتژیهای تغذیهای که در زمین تکامل یافتهاند، استفاده میکنند: فتوسنتزِ اکسیژنزا و غیراکسیژنزا؛ شیمیپروردیِ هوازی و بیهوازی (استفاده از مواد شیمیایی بهجای نور خورشید بهعنوان منبع انرژی)؛ تنفس یاختهای و تخمیرِ آلی و معدنی (یعنی تبدیل غذا به انرژی با استفاده یا بدون استفاده از اکسیژن)؛ اتوتروفی (تولید غذا از ترکیبات معدنی) و هتروتروفی (تولید غذا تنها از ترکیبات آلی، از طریق ترکیبی از شکارگری و پسماندخواری).[۳]
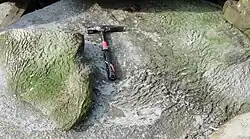
بیشترِ سنگهای رسوبی و ذخایرِ کانی، بیشتر از طریق یک تودهسازیِ صخرهمانند رشد کردهاند تا صرفاً «تهنشینشدن» از آب؛ و این تودهسازیِ رسوبی دستکم تحت تأثیر —و گاهی بهخاطر— عملکرد میکروبها بوده است. استروماتولیتها، بیوهرمها (Bioherms - گنبدها یا ستونهایی که از درون شبیه استروماتولیتها هستند) و بیوسترومها (Biostromes - ورقههای مجزای رسوبی) از جملهٔ همین تودههای ساختهشده تحتتأثیر میکروبها هستند.[۳] سایر انواع بسترهای میکروبی نیز بافتهای چروکیده و شبیه به «پوست فیل» در رسوباتِ دریایی ایجاد کردهاند، اگرچه سالها طول کشید تا این بافتها بهعنوان فسیلهای اثریِ ناشی از بسترها شناسایی شوند.[۱۳] بسترهای میکروبی غلظتِ فلزات را در بسیاری از رسوبات و ذخایر کانی افزایش دادهاند، و بدون این عملکردِ آنها، استخراجِ این فلزات از نظرِ اقتصادی امکانپذیر نبود — نمونههایی از این دست شامل ذخایر آهن (سولفید و اکسیدِ آهن)، اورانیوم، مس، نقره و طلا میشود.[۳]
نقش در تاریخچه حیات
| {{{before}}} | تاریخچه حیات {{{years}}} |
{{{after}}} |
قدیمیترین بسترها
بسترهای میکروبی از قدیمیترین نشانههای واضحِ حیات هستند؛ چرا که ساختارهای رسوبیِ القاشده توسط میکروبها (MISS) با قدمت ۳۴۸۰ میلیون سال در استرالیای غربی یافت شدهاند.[۳][۱۴][۱۵] حتی در آن دورهٔ بسیار کهن نیز، ساختارِ این بسترها احتمالاً شبیه به بسترهای امروزی که فاقدِ باکتریهای فتوسنتزکننده هستند، بوده است. این احتمال نیز وجود دارد که بسترهای غیرفتوسنتزکننده از ۴۰۰۰ میلیون سال پیش حضور داشتهاند. اگر چنین باشد، منبعِ انرژی آنها چاههای گرمابی (چشمههای آب گرمِ پُرفشار در اطراف آتشفشانهای زیرآبی) بوده است، و انشعابِ فرگشتی میان باکتریها و باستانیان نیز احتمالاً در همین حوالی رخ داده است.[۱۶]
قدیمیترین بسترها احتمالاً بیوفیلمهایی کوچک و تکگونهای متشکل از شیمیپروردها بودند که برای تأمینِ انرژی و «غذای» شیمیاییِ خود به چاههای گرمابی وابسته بودند. در مدت کوتاهی (از نظر معیارهای زمینشناسی)، تجمعِ میکروارگانیسمهای مرده باعثِ ایجاد یک کنام بومشناختیِ جدید برای هتروتروفهایِ لاشهخوار گردید؛ احتمالاً ارگانیسمهای انتشاردهندهٔ متان و کاهندهٔ سولفاتی که لایههای جدیدی در این بسترها تشکیل دادند و منابعِ مواد شیمیاییِ زیستشناختی و مفیدِ آنها را غنیتر ساختند.[۱۶]
فتوسنتز
بهطور کلی تصور میشود که فتوسنتز —یعنی تولید بیولوژیکیِ انرژی شیمیایی از نور— اندکی پس از ۳۰۰۰ میلیون (۳ میلیارد) سال پیش فرگشت یافته است.[۱۶] با این حال، تحلیلهای ایزوتوپی نشان میدهد که فتوسنتزِ اکسیژنزا ممکن است حتی در ۳۵۰۰ میلیون سال پیش نیز پدیدهای گسترده و رایج بوده باشد.[۱۶] انواعِ مختلفی از واکنشهای فتوسنتزی وجود دارد، و تحلیلهایِ DNA باکتریایی نشان میدهد که فتوسنتز نخستین بار در باکتریهای ارغوانیِ غیراکسیژنزا پدیدار شد، در حالی که فتوسنتزِ اکسیژنزا (که در سیانوباکتریها و بسیار بعدتر در گیاهان مشاهده میشود) آخرین نوعی بود که فرگشت یافت.[۱۷]
نخستین فرآیندهای فتوسنتزی ممکن است با استفاده از پرتوهای مادون قرمز صورت گرفته باشند؛ با بهرهگیری از نسخههای تغییریافتهٔ رنگدانههایی که کارکرد اولیهٔ آنها، تشخیصِ پرتوهای گرماییِ مادونقرمزِ ساطعشده از چاههای گرمابی بوده است. فرگشت و توسعهٔ تولیدِ انرژی از طریق فتوسنتز، میکروارگانیسمها را قادر ساخت که در ابتدا مناطق وسیعتری در اطرافِ چاههای گرمابی را کُلونیسازی کنند و سپس از نور خورشید بهعنوان یک منبع انرژیِ پایدارتر بهره گیرند. با این اتفاق، نقشِ چاههای گرمابی از تأمینکنندهٔ اصلیِ حیات در مکانهای خاص، به تأمینکنندهٔ فلزات اِحیایی (Reduced metals) برای کلِ اقیانوسها تغییر یافت.[۱۷] لاشهخوارانِ هتروتروف نیز احتمالاً فتوسنتزکنندهها را در این مهاجرت و خروج از «پناهگاههایِ گرمابی» همراهی میکردند.[۱۶]
تکامل باکتریهای ارغوانی (که نه اکسیژن تولید میکنند و نه آن را مصرف میکنند، اما میتوانند آن را تحمل کنند) به بسترها اجازه داد تا مناطقی را که بهطور محلی غلظت اکسیژن نسبتاً بالایی داشتند، کلونیسازی کنند؛ محیطهایی که اکسیژن برای ارگانیسمهای سازشنیافته سمی بود.[۱۸] در پی این اتفاق، بسترهای میکروبی توانستند به لایههای اکسیدشده و اِحیاشده (Reduced) تفکیک شوند.[۱۶]
سیانوباکتریها و اکسیژن
آخرین مرحلهٔ عمده در تکامل بسترهای میکروبی، ظهورِ سیانوباکتریها بود؛ فتوسنتزکنندههایی که اکسیژن را هم تولید و هم مصرف میکردند. این پدیده ساختارِ معمولی و مدرنِ بسترهای زیردریایی را شکل داد: یک لایهٔ روییِ غنی از اکسیژن متشکل از سیانوباکتریها؛ یک لایه از باکتریهای ارغوانیِ فتوسنتزکننده که قادر به تحمل اکسیژن بودند؛ و لایههای زیرینِ بدون اکسیژن (تحت سلطهٔ H2S) از هتروتروفهای لاشهخوار، عمدتاً ارگانیسمهای تولیدکنندهٔ متان و کاهندهٔ سولفات.[۱۶]
تخمین زده میشود که پیدایشِ فتوسنتزِ اکسیژنزا، بهرهوریِ بیولوژیکی را بین ۱۰۰ تا ۱۰۰۰ برابر افزایش داده است. تمامی واکنشهای فتوسنتزی نیازمندِ یک عامل کاهنده هستند، اما اهمیتِ فتوسنتزِ اکسیژنزا در این است که از آب بهعنوان عامل کاهنده استفاده میکند، و آب در قیاس با عوامل کاهندهای که در نتیجهٔ فرآیندهای زمینشناختی تولید میشدند و فتوسنتز تا پیش از آن به آنها وابسته بود، بسیار فراوانتر است. افزایشِ ناشی از این امر در جمعیتِ باکتریهای فتوسنتزکننده در لایههای روییِ بسترهای میکروبی، باعث افزایشِ متناظرِ جمعیتِ میکروارگانیسمهای شیمیپرورد و هتروتروفی در لایههای پایینی شد؛ میکروارگانیسمهایی که بهترتیب از محصولاتِ جانبیِ فتوسنتزکنندهها و از اجساد و/یا بدنِ زندهٔ سایر ارگانیسمهای بستر تغذیه میکردند. این افزایش جمعیت، بسترهای میکروبی را به بومسازگانهایِ (اکوسیستمهای) غالبِ سیاره زمین تبدیل کرد. از این نقطه به بعد، حیاتِ بیولوژیکی بهتنهایی منابعِ موردنیاز خود را در مقادیر بسیار بیشتری نسبت به فرآیندهای ژئوشیمیایی تولید میکرد.[۱۹]
فتوسنتزِ اکسیژنزا در بسترهای میکروبی همچنین باعثِ افزایش محتوای اکسیژن آزادِ اتمسفر زمین شد؛ این کار هم بهطور مستقیم (با انتشار اکسیژن) و هم بهطور غیرمستقیم صورت میگرفت، چرا که بسترها هیدروژن مولکولی (H2) ساطع میکردند و بخشی از این هیدروژن، پیش از آنکه بتواند دوباره با اکسیژن آزاد ترکیب شود و آب بیشتری بسازد، از اتمسفرِ زمین خارج و فرار میکرد؛ بنابراین، بسترهای میکروبی نقش عمدهای در فرگشتِ ارگانیسمهایی ایفا کردند که در ابتدا میتوانستند اکسیژن آزاد را تحمل کنند و سپس قادر شدند از آن بهعنوان منبع انرژی بهره گیرند.[۱۹] اکسیژن برای ارگانیسمهایی که با آن سازگار نیستند، سمی است؛ اما بازدهِ متابولیکی (سوختوساز) در ارگانیسمهای سازگار با اکسیژن را بهطور چشمگیری افزایش میدهد[۱۸] — برای نمونه، تخمیرِ بیهوازی بازدهِ خالصی برابر با ۲ مولکولِ آدنوزین تریفسفات (سوخت داخلی سلولها) بهازای هر مولکول گلوکز تولید میکند، در حالی که تنفس هوازی بازدهِ خالصی معادل ۳۶ مولکول دارد.[۲۰] اکسیژنه شدنِ اتمسفرِ زمین پیشنیازی اساسی برای فرگشتِ نوع پیچیدهترِ سلول، یعنی سلولهای یوکاریوتی، بود که در نهایت تمامیِ ارگانیسمهای چندسلولی از آنها ساخته شدند.[۲۱]
سیانوباکتریها کاملترین «ابزارِ» بیوشیمیایی را در میان تمامی ارگانیسمهایِ سازندهٔ بستر در اختیار دارند: مکانیسمهای فتوسنتزِ متعلق به هر دو گروهِ باکتریهای سبز و باکتریهای ارغوانی؛ تواناییِ تولید اکسیژن؛ و استفاده از چرخه کلوین که کربن دیاکسید و آب را به کربوهیدراتها و قندها تبدیل میکند. این احتمال وجود دارد که آنها بسیاری از این زیرسیستمها را از سایر ارگانیسمهای بستر و از طریق ترکیبی از انتقال افقی ژن و درونهمزیستی و ادغامِ پس از آن به دست آورده باشند. در هر صورت و با هر دلیلی، سیانوباکتریها مستقلترین و خودکفاترین اعضایِ بستر هستند و بهخوبی برای زندگیِ مستقل تکامل یافته بودند؛ هم بهعنوان بسترهای شناور در آب و هم بهعنوان نخستین نسلِ فیتوپلانکتونها که پایهریزِ بیشترِ زنجیرههای غذاییِ دریاییِ مدرن هستند.[۱۶]
خاستگاه یوکاریوتها
زمانِ دقیقِ نخستین ظهورِ یوکاریوتها هنوز نامشخص است: شواهدِ قابلقبولی وجود دارد که فسیلهای تاریخگذاریشده در میان ۱۶۰۰ تا ۲۱۰۰ میلیون سال پیش نمایانگرِ یوکاریوتها هستند،[۲۲] اما حضورِ استرانها (Steranes) در شیلهای استرالیا ممکن است نشاندهندهٔ حضور یوکاریوتها در ۲۷۰۰ میلیون سال پیش باشد.[۲۳] همچنان بحثها دربارهٔ خاستگاه و منشأ یوکاریوتها در جریان است و بسیاری از نظریهها بر این ایده متمرکز هستند که در ابتدا، یک باکتری بهعنوان یک ارگانیسمِ همزیستِ درونی (Endosymbiont) درونِ یک آرکئای (باستانیِ) بیهوازی وارد شد و سپس این دو با یکدیگر ترکیب و ادغام شدند تا به یک ارگانیسمِ واحد تبدیل شوند. اگر چنین همزیستیِ درونیای یک عامل کلیدی در فرگشت یوکاریوتها بوده باشد، بسترهای میکروبی قطعاً این روند را تسریع و تسهیل میکردند.[۲] دو سناریوی شناختهشده برای این رویداد وجود دارد:
- با خاموششدنِ چرخهٔ فتوسنتز در شب، مرزِ میان منطقهٔ دارای اکسیژن و منطقهٔ بدونِ اکسیژنِ یک بستر به سمت بالا حرکت میکرد، و پس از طلوع خورشید و آغاز مجددِ فتوسنتز، این مرز دوباره پایین میرفت. همزیستی میانِ ارگانیسمهای مستقلِ هوازی و بیهوازی، به هر دوی آنها این امکان را میداد که در منطقهای که در معرض «جزر و مد» اکسیژنی بود، بهراحتی زندگی کنند؛ و ادغام و همزیستیِ درونیِ متعاقبِ آنها، این شراکتِ فیزیولوژیک را قادر میساخت تا از نظر حرکتی نیز مستقلتر و پویاتر شود.[۱۶]
- شراکتِ اولیه ممکن است میان آرکئاهای بیهوازیِ نیازمندِ هیدروژنِ مولکولی (H2) و باکتریهای هتروتروفی که آن را تولید میکردند (و میتوانستند با یا بدون حضورِ اکسیژن زنده بمانند)، شکل گرفته باشد.[۱۶][۲۴]
حیات در خشکی
بسترهای میکروبی که قدمتی حدوداً ۱۲۰۰ میلیون ساله دارند، نخستین شواهد از وجود حیات در محیطهای خشکی را فراهم میآورند.[۲۵]
نخستین جانوران چندسلولی
الگو:انقلاب بستر کامبرین زیواگان ادیاکاران بهعنوان نخستین شواهدِ پذیرفتهشده بهطور گسترده، از وجود جانوران چندسلولی بهشمار میروند. اکثرِ لایههای سنگی مربوط به دوره ادیاکاران که دارای بافتِ «پوست فیل» (مشخصهٔ بسترهای میکروبی) هستند، شامل فسیلهای گوناگونی میشوند؛ و از طرفی فسیلهای ادیاکاران بهندرت در بسترهایی که فاقدِ این ساختارهای میکروبی هستند، یافت میشوند.[۲۶] آدولف زایلاخر این جانوران را بدین ترتیب دستهبندی کرده است: «پیوستگان به بستر» (Mat encrusters) که بهطور دائم به بستر میکروبی متصل بودند؛ «خراشدهندگان بستر» (Mat scratchers) که بدون از بین بردنِ بستر، سطحِ آن را میچریدند؛ «فرورفتگان در بستر» (Mat stickers) که تغذیهکنندگانی معلق بودند و تا حدودی درون بستر فرورفته بودند؛ و «نقبزنانِ زیر بستر» (Undermat miners) که در زیر بستر میکروبی نقب میزدند و از موادِ در حال تجزیهٔ بستر تغذیه میکردند.[۲۷]
انقلاب بستر کامبرین
با آغازِ کامبرینِ پیشین، ارگانیسمها برای یافتنِ غذا یا حفاظتِ بیشتر شروع به نقبزنیِ عمودی کردند؛ این کار باعث از همپاشیدگیِ بسترهای میکروبی شد و در نتیجه به آب و اکسیژن اجازه داد تا مسافت قابلتوجهی به زیرِ سطحِ بستر نفوذ کرده و میکروارگانیسمهای بیهوازی و حساس به اکسیژن در لایههای زیرین را از بین ببرند. در نتیجهٔ این رویداد که انقلاب بستر کامبرین نامیده میشود، بسترهای میکروبیِ دریایی به محیطهایی محدود شدند که در آنها فعالیتِ نقبزنی وجود ندارد یا بسیار ناچیز است:[۲۸] محیطهای بسیار خشنی چون تالابهای پُرنمک و مصبهای لبشور که برای ارگانیسمهای نقبزنی که بسترها را از بین بردند، غیرقابلسکونت هستند؛[۲۹] «بسترهای» سنگی که نقبزنان نمیتوانند به آنها نفوذ کنند؛[۳۰] و همچنین اعماقِ اقیانوسها، جایی که امروزه فعالیتِ نقبزنی، در سطحی مشابه با دریاهای کمعمقِ ساحلی پیش از زمان انقلاب، وجود دارد.[۲۸]
وضعیت کنونی
اگرچه انقلاب بستر کامبرین کنامهای زیستی (Niches) جدیدی برای جانوران باز کرد، اما برای بسترهای میکروبی بهطور کامل فاجعهبار نبود؛ هرچند که باعث شد پراکندگیِ آنها بهطور چشمگیری کاهش یابد.
استفاده از بسترهای میکروبی در دیرینهشناسی
بیشترِ فسیلها تنها شاملِ بخشهای سختِ ارگانیسمها، مانند صدفها، هستند و بنابراین تنها اطلاعاتی مستقیم دربارهٔ این ساختارها فراهم میآورند. این مسئله باعث میشود مواردِ نادری که در آنها فسیلهای نرمتنان (بقایای ارگانیسمهای نرمتن و همچنین بخشهای نرمِ ارگانیسمهایی که معمولاً تنها بخشهای سختشان یافت میشود) حفظ شدهاند، بسیار ارزشمند و گرانبها باشند. بسترهای میکروبی در حفظِ فسیلهای نرمتنان از راههای زیر نقش داشتهاند:
- بهدام انداختن اجساد بر روی سطوحِ چسبناکِ بستر و جلوگیری از شناور شدن یا دور شدنِ آنها توسط جریان آب.[۳۱][۳۲]
- حفاظتِ فیزیکی از اجساد در برابر خوردهشدن توسط لاشهخواران و شکسته شدن توسط حیواناتِ نقبزن، و همچنین حفاظت از رسوباتِ فسیلدار در برابر فرسایش. برای مثال، سرعتِ جریانِ آبی که برای فرسایشِ یک رسوبِ متصل به بسترِ میکروبی نیاز است، ۲۰ تا ۳۰ برابرِ سرعتی است که برای فرسایشِ یک رسوبِ برهنه لازم است.[۳۱][۳۲]
- جلوگیری یا کاهش روندِ تجزیه با محافظتِ فیزیکی بقایا در برابر باکتریهای عاملِ فساد، و همچنین با ایجادِ شرایط شیمیایی که برای این باکتریها نامطلوب و خصمانه است.[۳۱][۳۲]
- حفظِ ردپاها و نقبها با محافظت از آنها در برابر فرسایش.[۳۱] بسیاری از فسیلهای اثری به مراتب قدیمیتر از فسیلهای بدنیِ جانورانی هستند که تصور میشود قادر به ایجادِ آنها بودهاند؛ در نتیجه بسترهای میکروبی در این موارد به دیرینهشناسان کمک میکنند تا برآورد دقیقتری از زمانِ پیدایش جانورانی با این قابلیتها داشته باشند.[۳۳]
کاربردهای صنعتی
تواناییِ جوامعِ بسترهای میکروبی برای استفاده از طیف وسیعی از منابع بهعنوان «غذا»، در سالهای اخیر علاقه و توجه را برای کاربردهای صنعتیِ آنها برانگیخته است. آزمایشهایی برای استفاده از این بسترها در تصفیهٔ آب، هم برای مصرفِ انسانی و هم در مزارع پرورش ماهی صورت گرفته است،[۳۴][۳۵] و مطالعاتی در زمینهٔ پتانسیلِ آنها برای پاکسازیِ نشتهای نفتی نیز در جریان است.[۳۶] بهدلیل پتانسیل تجاریِ رو به رشدِ این فناوری، چندین درخواستِ ثبت اختراع برای توسعه، نصب و استفاده از بسترهای میکروبی، بهویژه در زمینهٔ پاکسازیِ آلایندهها و پسماندها ثبت یا تأیید شده است.[۳۷]
جستارهای وابسته
پانویس
- ↑ Schieber, J.; Bose, P; Eriksson, P. G.; Banerjee, S.; Sarkar, S.; Altermann, W.; Catuneanu, O. (2007). Atlas of Microbial Mat Features Preserved within the Siliciclastic Rock Record. Elsevier. ISBN 978-0-444-52859-9. Archived from the original on 24 اكتبر 2008. Retrieved 2008-07-01.
{{cite book}}: تاریخ وارد شده در|archive-date= - 1 2 Nobs, Stephanie-Jane; MacLeod, Fraser I.; Wong, Hon Lun; Burns, Brendan P. (2022-05-01). "Eukarya the chimera: eukaryotes, a secondary innovation of the two domains of life?". Trends in Microbiology. 30 (5): 421–431. doi:10.1016/j.tim.2021.11.003. ISSN 0966-842X. PMID 34863611. S2CID 244823103.
- 1 2 3 4 5 6 7 8 9 10 Krumbein, W.E.; Brehm, U.; Gerdes, G.; Gorbushina, A.A.; Levit, G.; Palinska, K.A. (2003). "Biofilm, Biodictyon, Biomat Microbialites, Oolites, Stromatolites, Geophysiology, Global Mechanism, Parahistology". In Krumbein, W.E.; Paterson, D.M.; Zavarzin, G.A. (eds.). Fossil and Recent Biofilms: A Natural History of Life on Earth (PDF). Kluwer Academic. pp. 1–28. ISBN 978-1-4020-1597-7. Archived from the original (PDF) on January 6, 2007. Retrieved 2008-07-09.
- ↑ Nielsen, L.; Risgaard-Petersen, N.; Fossing, H.; Christensen, P.; Sayama, M. (2010). "Electric currents couple spatially separated biogeochemical processes in marine sediment". Nature. 463 (7284): 1071–1074. Bibcode:2010Natur.463.1071N. doi:10.1038/nature08790. PMID 20182510. S2CID 205219761.
- ↑ Sanderson, Katharine (24 February 2010). "Bacteria buzzing in the seabed". Nature News. doi:10.1038/news.2010.90.
- ↑ Risatti, J. B.; Capman, W. C.; Stahl, D. A. (1994-10-11). "Community structure of a microbial mat: the phylogenetic dimension". Proceedings of the National Academy of Sciences. 91 (21): 10173–7. Bibcode:1994PNAS...9110173R. doi:10.1073/pnas.91.21.10173. PMC 44980. PMID 7937858.
- ↑ Stal, Lucas J. (1995). "Physiological ecology of cyanobacteria in microbial mats and other communities". New Phytologist. 131: 1–32.
- 1 2 Garcia-Pichel, F.; Mechling, M.; Castenholz, R. (May 1994). "Diel Migrations of Microorganisms within a Benthic, Hypersaline Mat Community" (PDF). Appl. and Env. Microbiology: 1500–1511 – via ncbi.nlm.nih.gov.
- ↑ Bebout, B. M.; Garcia-Pichel, F. (December 1995). "UV B-Induced Vertical Migrations of Cyanobacteria in a Microbial Mat". Appl. Environ. Microbiol. 61 (12): 4215–4222 – via aem.asm.org.
- ↑ Che, L. M.; Andréfouët, S.; Bothorel, V.; Guezennec, M.; Rougeaux, H.; Guezennec, J.; Deslandes, E.; Trichet, J.; Matheron, R.; Le Campion, T.; Payri, C.; Caumette, P. (2001). "Physical, chemical, and microbiological characteristics of microbial mats (KOPARA) in the South Pacific atolls of French Polynesia". Canadian Journal of Microbiology. 47 (11): 994–1012. doi:10.1139/cjm-47-11-994. PMID 11766060. Retrieved 2008-07-18 – via nrc.ca.
- ↑ Temara, A.; de Ridder, C.; Kuenen, J.G.; Robertson, L.A. (February 1993). "Sulfide-oxidizing bacteria in the burrowing echinoid, Echinocardium cordatum (Echinodermata)". Marine Biology. 115 (2): 179. Bibcode:1993MarBi.115..179T. doi:10.1007/BF00346333. S2CID 85351601.
- ↑ Porada H.; Ghergut J.; Bouougri El H. (2008). "Kinneyia-Type Wrinkle Structures—Critical Review And Model Of Formation". PALAIOS. 23 (2): 65–77. Bibcode:2008Palai..23...65P. doi:10.2110/palo.2006.p06-095r. S2CID 128464944.
- 1 2 Manten, A. A. (1966). "Some problematic shallow-marine structures". Marine Geol. 4 (3): 227–232. Bibcode:1966MGeol...4..227M. doi:10.1016/0025-3227(66)90023-5. hdl:1874/16526. S2CID 129854399. Archived from the original on 2008-10-21. Retrieved 2007-06-18.
- ↑ Borenstein, Seth (13 November 2013). "Oldest fossil found: Meet your microbial mom". AP News. Archived from the original on 29 ژوئن 2015. Retrieved 15 November 2013.
- ↑ Noffke, Nora; Christian, Christian; Wacey, David; Hazen, Robert M. (8 November 2013). "Microbially Induced Sedimentary Structures Recording an Ancient Ecosystem in the ca. 3.48 Billion-Year-Old Dresser Formation, Pilbara, Western Australia". Astrobiology. 13 (12): 1103–24. Bibcode:2013AsBio..13.1103N. doi:10.1089/ast.2013.1030. PMC 3870916. PMID 24205812.
- 1 2 3 4 5 6 7 8 9 10 Nisbet, E.G. & Fowler, C.M.R. (December 7, 1999). "Archaean metabolic evolution of microbial mats". Proceedings of the Royal Society B. 266 (1436): 2375. doi:10.1098/rspb.1999.0934. PMC 1690475.
- 1 2 Blankenship, R.E. (1 January 2001). "Molecular evidence for the evolution of photosynthesis". Trends in Plant Science. 6 (1): 4–6. Bibcode:2001TPS.....6....4B. doi:10.1016/S1360-1385(00)01831-8. PMID 11164357.
- 1 2 Abele, D. (7 November 2002). "Toxic oxygen: The radical life-giver" (PDF). Nature. 420 (27): 27. Bibcode:2002Natur.420...27A. doi:10.1038/420027a. PMID 12422197. S2CID 4317378.
- 1 2 Hoehler, T.M.; Bebout, B.M.; Des Marais, D.J. (19 July 2001). "The role of microbial mats in the production of reduced gases on the early Earth". Nature. 412 (6844): 324–7. Bibcode:2001Natur.412..324H. doi:10.1038/35085554. PMID 11460161. S2CID 4365775.
- ↑ "Introduction to Aerobic Respiration". University of California, Davis. Archived from the original on September 8, 2008. Retrieved 2008-07-14.
- ↑ Hedges, S.B.; Blair, J.E; Venturi, M.L.; Shoe, J.L (28 January 2004). "A molecular timescale of eukaryote evolution and the rise of complex multicellular life". BMC Evolutionary Biology. 4 2. doi:10.1186/1471-2148-4-2. PMC 341452. PMID 15005799.
- ↑ Knoll, Andrew H.; Javaux, E.J; Hewitt, D.; Cohen, P. (2006). "Eukaryotic organisms in Proterozoic oceans". Philosophical Transactions of the Royal Society B. 361 (1470): 1023–38. doi:10.1098/rstb.2006.1843. PMC 1578724. PMID 16754612.
- ↑ Brocks, J. J.; Logan, G. A.; Buick, R.; Summons, R. E. (1999-08-13). "Archean Molecular Fossils and the Early Rise of Eukaryotes". Science. 285 (5430): 1033–6. Bibcode:1999Sci...285.1033B. CiteSeerX 10.1.1.516.9123. doi:10.1126/science.285.5430.1033. PMID 10446042.
- ↑ Martin W. & Müller, M. (March 1998). "The hydrogen hypothesis for the first eukaryote". Nature. 392 (6671): 37–41. Bibcode:1998Natur.392...37M. doi:10.1038/32096. PMID 9510246. S2CID 338885. Retrieved 2008-07-16.
- ↑ Prave, A. R. (2002). "Life on land in the Proterozoic: Evidence from the Torridonian rocks of northwest Scotland". Geology. 30 (9): 811–812. Bibcode:2002Geo....30..811P. doi:10.1130/0091-7613(2002)030<0811:LOLITP>2.0.CO;2. ISSN 0091-7613.
- ↑ Runnegar, B. N.; Fedonkin, M. A. (1992). "Proterozoic metazoan body fossils". In Schopf, W. J.; Klein, C. (eds.). The Proterozoic biosphere. Cambridge: Cambridge University Press. pp. 369–388. ISBN 978-0-521-36615-1.
- ↑ Seilacher, A. (1999). "Biomat-related lifestyles in the Precambrian". PALAIOS. 14 (1): 86–93. Bibcode:1999Palai..14...86S. doi:10.2307/3515363. JSTOR 3515363. Retrieved 2008-07-17.
- 1 2 Bottjer, D.J.; Hagadorn, J.W.; Dornbos, S.Q. (September 2000). "The Cambrian substrate revolution" (PDF). GSA Today. Vol. 10, no. 9. pp. 1–9. Retrieved 2008-06-28.
- ↑ Seilacher, Adolf; Luis A. Buatoisb; M. Gabriela Mángano (2005-10-07). "Trace fossils in the Ediacaran–Cambrian transition: Behavioral diversification, ecological turnover and environmental shift". Palaeogeography, Palaeoclimatology, Palaeoecology. 227 (4): 323–56. Bibcode:2005PPP...227..323S. doi:10.1016/j.palaeo.2005.06.003.
- ↑ Bottjer, D. J.; Hagadorn, J. W.; Dornbos, S. Q. "The Cambrian substrate revolution" (PDF). Archived from the original (PDF) on 2006-09-09. Retrieved 2008-06-28 – via amherst.edu.
- 1 2 3 4 Briggs, D. E. G. (2003). "The role of biofilms in the fossilization of non-biomineralized tissues". In Krumbein, W. E.; Paterson, D. M.; Zavarzin, G. A. (eds.). Fossil and Recent Biofilms: A Natural History of Life on Earth. Kluwer Academic. pp. 281–290. ISBN 978-1-4020-1597-7. Retrieved 2008-07-09 – via Google Books.
- 1 2 3 Muscioni, Marco; Garassino, Alessandro; Colla, Andrea; Bruce, Niel; Chiarenza, Alfio Alessandro; Fanti, Federico (November 2025). "An Upper Cretaceous arthropod assemblage from Villaggio del Pescatore (Campanian, Italy) and its implications for peri‐Tethyan palaeobiogeography and palaeoecology". Papers in Palaeontology. 11 (6). doi:10.1002/spp2.70048. hdl:11585/1029912. ISSN 2056-2799.
- ↑ Seilacher, A. (1994). "How valid is Cruziana Stratigraphy?". International Journal of Earth Sciences. 83 (4): 752–8. Bibcode:1994GeoRu..83..752S. doi:10.1007/BF00251073. S2CID 129504434.
- ↑ Potts, D. A.; Patenaude, E. L.; Görres, J. H.; Amador, J. A. "Wastewater Renovation and Hydraulic Performance of a Low Profile Leaching System" (PDF). geomatrixsystems.com. GeoMatrix, Inc. Retrieved 2008-07-17.
- ↑ Bender, J (August 2004). "A waste effluent treatment system based on microbial mats for black sea bass Centropristis striata recycled-water mariculture". Aquacultural Engineering. 31 (1–2): 73–82. Bibcode:2004AqEng..31...73B. doi:10.1016/j.aquaeng.2004.02.001. Retrieved 2008-07-17.
- ↑ "Role of microbial mats in bioremediation of hydrocarbon polluted coastal zones". IST World. Archived from the original on 2011-07-23. Retrieved 2008-07-17.
- ↑ "Compositions and methods of use of constructed microbial mats – United States Patent 6033559". Retrieved 2008-07-17.; "Silage-microbial mat system and method – United States Patent 5522985". Retrieved 2008-07-17.; "GeoMat". GeoMatrix, Inc. Retrieved 2008-07-17. همچنین اشاره به اختراعات ثبتشده شماره 7351005 و 7374670 در ایالات متحده دارد.
پیوند به بیرون
- صفحه بسترهای میکروبی بایگانیشده در ۲۳ آوریل ۲۰۱۴ توسط Wayback Machine (به انگلیسی) – نمای کلی از بسترهای میکروبی و تصاویری از بسترها در موقعیتها و بزرگنماییهای مختلف.
- پیدازیستی
- پیشینزیستی
- جانوران کامبرین
- زندگی در پیشینزیستی
- زندگی در کامبرین
- زیستشناسی فرگشتی
- فسیلها
- میکروبیولوژی
- نخستزیستی