زیواگان ادیاکاران
| بخشی از مجموعهای در مورد |
| انفجار کامبرین |
|---|
 |
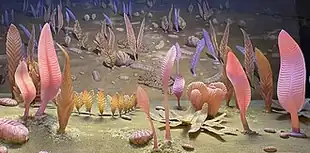
زیواگانِ ادیاکاران (به انگلیسی: Ediacaran biota) که پیشتر در برخی از منابع زیواگانِ وندین (Vendian biota) نامیده میشد، مجموعهای از کهنترین جاندارانِ پیچیده و چندسلولیِ شناختهشده در تاریخ زمین هستند که در دوره ادیاکاران (حدود ۶۳۵ تا ۵۳۸٫۸ میلیون سال پیش) میزیستند. بیشتر این ارگانیسمها نرمبدن (فاقد هرگونه اسکلت معدنی، استخوان یا صدف) بودند و عمدتاً ساختارهایی لحافیشکل، برگمانند یا دیسکیشکل داشتند و بیشتر آنها روی بستر دریا بیحرکت بودند. ردفسیلها و بقایای این زیواگان در سراسر جهان یافت شدهاند، با این حال کاربرد اصطلاح «زیواگان ادیاکاران» به دلیل ابهامات در طبقهبندی و تنوع بسیار بالای این جانداران، همواره در میان دانشمندان محل بحث بوده است.
پیدایش و شکوفایی این جانداران پس از پایان یخبندانهای گستردهٔ دورهٔ کریوژنین (معروف به زمین گوی برفی) آغاز شد و در رخدادی موسوم به «انفجار آوالون» (حدود ۵۷۵ میلیون سال پیش) تنوع و گستردگی آنها به اوج خود رسید. بقایای این جاندارانِ نرمبدن بهشکلی استثنایی در میان سنگهای رسوبی حفظ شدهاند؛ فرایندی که عمدتاً به لطف وجود بسترهای میکروبیِ گسترده در کف اقیانوسهای آن دوران امکانپذیر شده است.
تعیین جایگاه دقیق زیواگان ادیاکاران در درخت حیات یکی از بزرگترین چالشهای دیرینشناسی است. هنوز بهطور قطعی ثابت نشده است که تمام این ارگانیسمها «جانور» بودهاند. در حالی که برخی پژوهشگران آنها را گلسنگ، جلبک، قارچ یا حتی یک فرمانروی کاملاً مستقل و منقرضشده از حیات به نام «وندوبیونتا» میدانند، یافتههای جدید نشان میدهند که برخی از آنها ویژگیهای جانوری داشتهاند. برای مثال، یافت شدن کلسترول در فسیل دیکینسونیا یا کشف ساختارهای مشابه با اسفنجها، مرجانها و نرمتنان اولیه در برخی از این جانداران، فرضیهٔ جانور بودنِ دستکم بخشی از این زیواگان را تقویت کرده است.
دوران سلطهٔ این جانداران با پایان دورهٔ ادیاکاران و آغاز رخداد «انفجار کامبرین» به پایان رسید. با پیدایش جانورانِ دارای اسکلت و صدف و همچنین ظهور جاندارانِ نقبزنی که بسترهای میکروبی کف اقیانوسها را از بین بردند (رویدادی موسوم به انقلاب بستر کامبرین)، زیواگان ادیاکاران بهسرعت رو به افول گذاشتند. عواملی چون پیدایش نخستین شکارچیان، رقابتهای بومشناختی و تغییرات شدید در شیمی اقیانوسها باعث شدند تا این نخستین «تجربهٔ بزرگ طبیعت» در حیات چندسلولی، تا حد زیادی ناپدید شود و زیستبومهای دریایی در اختیار جانوران دورهٔ کامبرین با الگوهای بدنی آشناتر برای ما قرار گیرند.
زیواگان ادیاکاران در بستر زمان | ||||||||||||||||
−۶۵۰ — – −۶۴۰ — – −۶۳۰ — – −۶۲۰ — – −۶۱۰ — – −۶۰۰ — – −۵۹۰ — – −۵۸۰ — – −۵۷۰ — – −۵۶۰ — – −۵۵۰ — – −۵۴۰ — – −۵۳۰ — – −۵۲۰ — – −۵۱۰ — – −۵۰۰ — – −۴۹۰ — |
| |||||||||||||||
تاریخچه
−۴۵۰۰ — – — – −۴۰۰۰ — – — – −۳۵۰۰ — – — – −۳۰۰۰ — – — – −۲۵۰۰ — – — – −۲۰۰۰ — – — – −۱۵۰۰ — – — – −۱۰۰۰ — – — – −۵۰۰ — – — – ۰ — |
| |||||||||||||||||||||||||||||||||
نخستین سنگوارههای کشفشدهٔ ادیاکاران، فسیلهای دیسکمانندِ آسپیدلا ترانوویکا[وا ۱] در سال ۱۸۶۸ بودند. کاشف آنها، الکساندر موری،[وا ۲]زمینشناس اسکاتلندی، این فسیلها را برای تعیین و تطبیقِ سنِ صخرههای اطرافِ جزیره نیوفاندلند مفید یافت.[۳] با این حال، از آنجا که این فسیلها در لایههای زیرینِ «چینههای بنیادین» (قدیمیترین لایههای فسیلدارِ دورهٔ کامبرین) قرار داشتند — لایههایی که در آن زمان تصور میشد حاوی نخستین نشانههای حیات جانوریاند[۳] — همتایانِ الکانا بیلینگز[وا ۳] پیشنهاد او را مبنی بر اینکه این فسیلها بقایای جانداران هستند، نپذیرفتند. در عوض، آن فسیلها بهعنوانِ ساختارهای خروج گاز (دودخان) یا سَنگالهای غیرآلی تفسیر شدند.[۳] در آن زمان هیچ ساختار مشابهی در نقاط دیگرِ جهان کشف نشده بود و این یافتهها تا مدتها مورد توجه قرار نگرفتند.[۳]
در سال ۱۹۳۳، گئورگ گوریچ[وا ۴] نمونههایی را در نامیبیا کشف کرد، اما آنها را به دورهٔ کامبرین نسبت داد.[۴] در سال ۱۹۴۶، رگ اسپریگ متوجه فسیلهایی شبیه به «عروس دریایی» در تپههای ادیاکارا واقع در کوهستان فلیندرز استرالیا شد؛ فسیلهایی که در آن زمان تصور میشد متعلق به دورهٔ کامبرین آغازین باشند.[۵]
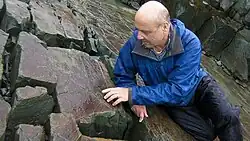
تا پیش از کشف سنگوارهٔ چارنیا در بریتانیا، وجود حیات در دورهٔ پرکامبرین بهطور جدی پذیرفته نشده بود. این سنگوارهٔ برگشاخهایشکل که در جنگل چارنوود در انگلستان قرار داشت، نخستین بار در سال ۱۹۵۶ توسط یک دختر ۱۵ ساله به نام تینا نگوس[وا ۵] کشف شد، اما ادعای او در آن زمان مورد پذیرش قرار نگرفت.[۶] سپس در سال بعد، همان سنگواره مجدداً توسط گروهی متشکل از سه پسرِ دانشآموز از جمله راجر میسون[وا ۶] ۱۵ ساله پیدا شد.[ب][۷][۸] براساسِ نقشهبرداری دقیقِ زمینشناختی که توسط سازمان زمینشناسی بریتانیا انجام شده بود، هیچ شکی باقی نماند که این فسیلها در میان صخرههای پرکامبرین قرار دارند. در نهایت در سال ۱۹۵۹، مارتین گلاسنر، دیرینشناس، توانست ارتباط میان این کشف و یافتههای پیشین در استرالیا را برقرار کند.[۹][۱۰] با بهبود روشهای سنسنجیِ نمونههای موجود، نمونههای بسیار بیشتری مربوط به این دوره شناسایی شدند.[۱۱]
تمامی فسیلهای مربوط به این دوره که تا سال ۱۹۶۷ کشف شده بودند، در میانِ ماسهسنگهای درشتدانهای قرار داشتند که مانع از حفظ جزئیاتِ فسیل میشدند و در نتیجه تفسیر آنها دشوار بود.[۱۲][۱۳] کشفِ بسترهای خاکستریِ فسیلدار در مجموعهٔ فسیلیِ میستیکن پوینت در نیوفاندلندِ کانادا توسط شیوا بالاک میسرا[وا ۷] در تابستان ۱۹۶۷ همه چیز را تغییر داد؛ زیرا جزئیات ظریفی که توسط خاکسترِ نرم حفظ شده بودند، امکانِ توصیفِ ویژگیهایی از فسیل را فراهم آورد که تا پیش از آن غیرقابل تشخیص بودند.[۱۲] [۱۳] همچنین این نخستین باری بود که جانداران ادیاکاران در رسوباتِ آبهای عمیق کشف شدند.[۱۴]
در سال ۱۹۹۵، سنگوارههای متعددی از جانداران دورهٔ ادیاکاران در سونورای مکزیک کشف شدند. قدمت این یافتهها حدود ۵۵۵ میلیون سال است و نشان میدهد که آنها با سنگوارههای یافتشده در تپههای ادیاکارا (در استرالیای جنوبی) و سواحل دریای سفید (در روسیه) تقریباً همدوره هستند.[۱۵][۱۶][۱۷] ضعف ارتباطهای علمی در آن زمان، همراه با دشواریِ تطبیقدادنِ سازندهای زمینشناختیِ متفاوت در سطح جهانی، منجر به پیدایش انبوهی از نامهای گوناگون برای این زیواگان شد. در سال ۱۹۶۰، نام فرانسوی «ادیاکارین»[وا ۸] — برگرفته از تپههای ادیاکارا — به نامهای رقیبِ دیگری نظیر «سینین»[وا ۹] و «وندین»[وا ۱۰] برای نامگذاریِ صخرههای اواخر دورهٔ پرکامبرین افزوده شد و این نامها به اَشکالِ حیاتِ آن دوران نیز اطلاق گردیدند.[۱۸] اصطلاحات «ادیاکاران» و «ادیاکارین» در ادامه برای اشاره به دور یا دورهٔ مربوط در مقیاس زمانی زمینشناسی و صخرههای متعلق به آن به کار رفتند. در مارس ۲۰۰۴، انجمن بینالمللی دانش زمینشناسی با نامگذاری رسمیِ آخرین دوره از دوران نئوپروتروزوئیک به نامِ این مکان در استرالیا (ادیاکاران)، به این ناهماهنگی پایان داد.[۱۹][۲۰]
اصطلاح «زیواگان[پ] ادیاکاران» و عبارات مشابه آن (نظیر «ادیاکارا» / «ادیاکاران» / «ادیاکارین» / «وندین» به همراه «زیاگان» / «زیواگان») در زمانهای مختلف در مفاهیم جغرافیایی، چینهشناختی، سنگوارهشناختی، یا زیستشناختی به کار رفتهاند؛ هرچند کاربردِ زیستشناختیِ آن در ادبیات علمیِ نوین از همه رایجتر است.[۲۲] با این حال، استفاده از اصطلاح زیواگان ادیاکاران به دلیل ابهام در تعریف دقیق، حذف خودسرانهٔ برخی فسیلها و عدم قطعیت در خویشاوندیِ این جانداران با یکدیگر، همواره از سوی برخی دانشمندان مورد انتقاد قرار گرفته است.[۲۲]
حفظ و ماندگاری
یکی از شگفتانگیزترین جنبههای زیواگان ادیاکاران، چگونگیِ حفظ و ماندگاریِ بقایای آنهاست. از آنجا که این جانداران فاقد هرگونه بخشِ سختِ بدنی (مانند استخوان، دندان، پوسته یا صدف) بودند، در شرایطِ عادیِ زمینشناختی نباید هیچ اثری از آنها در بستر فسیلی باقی میماند.[۲۳] با این حال، شرایطِ محیطیِ منحصربهفردِ اقیانوسها در دورهٔ ادیاکاران، یک پنجرهٔ استثنایی ایجاد کرد که امکانِ فسیلشدنِ بافتهای نرمِ این جانداران را در ماسهسنگها فراهم آورد. این شرایطِ بینظیر، عمدتاً نتیجهٔ تعاملِ این جانداران با بسترهای میکروبی و همچنین عدمِ حضورِ جاندارانِ لاشهخوار و نقبزن در بسترِ دریاهای آن دوران بود.[۲۴]
بسترهای میکروبی
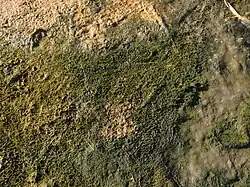
بسترهای میکروبی لایههایی رسوبی هستند که توسط تجمعِ (کلنیِ) میکروبها تثبیت و محکم شدهاند. این میکروبها با ترشح مواد چسبناک، ذرات خاک و ماسه را به یکدیگر پیوند میدهند.[۲۵] هنگامی که لایهٔ نازکی از رسوبات روی این بسترها مینشیند، میکروبها برای رسیدن به سطح، به سمت بالا رشد میکنند. این رشدِ رو به بالا باعث میشود تصور کنیم کلنی در حال حرکت است؛ در حالی که تکتکِ میکروبها بهخودیخود جابهجا نمیشوند. اما اگر پیش از آنکه میکروبها فرصتِ رشد و تکثیر پیدا کنند، لایهٔ ضخیم و سنگینی از رسوب روی آنها بریزد، بخشهایی از کلنی زیر این آوار میمیرند. این روند در طول زمان، فسیلهایی با بافتِ مشخصِ چروکیده (معروف به «پوستفیلی»[ت]) و برجستگیهای غدهمانند به جای میگذارد.[۲۶][۲۷]
فسیلهای جانداران دورهٔ ادیاکاران تقریباً همیشه در چینههایی یافت میشوند که آثاری از این بسترهای میکروبی در آنها پیداست. در واقع، این لایههای میکروبی نقشی حیاتی در حفظ و ماندگاریِ این سنگوارهها داشتهاند.[۲۸] تا پیش از رویدادی که به انقلاب بستر کامبرین معروف است، بسترهای میکروبی در سرتاسر اقیانوسها گسترده و فراوان بودند. اما پیدایشِ جاندارانِ کَفزی که مانند چَرَندگان از سطح این بسترها تغذیه میکردند، به سلطهٔ بسترهای ضخیم میکروبی برای همیشه پایان داد و تعداد این جوامع میکروبی رو به کاهش گذاشت.[۲۹] در نتیجهٔ این اتفاق، زیستگاهِ جاندارانِ دورهٔ ادیاکاران که برای اتکا یا تغذیه به این بسترها وابسته بودند از بین رفت و زمینه برای انقراض آنها فراهم شد.[۳۰]
امروزه، این جوامع میکروبی تنها در پناهگاههای خشن و نامساعدی زنده ماندهاند که جاندارانِ دیگر توانِ زندگی در آنها را نداشتهاند. یکی از نمونههای بارزِ آن، استروماتولیتهای موجود در ذخیرهگاه طبیعی دریایی حوضچهٔ هملین (در خلیج کوسه، استرالیای غربی) است؛ منطقهای که میزان نمکِ آبِ آن میتواند تا دو برابرِ دریاهای اطراف باشد و همین شوریِ شدید، جاندارانِ تغذیهکننده را از این بسترها دور نگه میدارد.[۳۱]
سنگوارهشدن
چگونگیِ حفظ و ماندگاریِ سنگوارههای زیواگان ادیاکاران موضوعی شایان توجه است، زیرا جانداران نرمبدن در شرایط عادی فسیل نمیشوند.[۲۴] علاوه بر این، برخلاف مجموعههای فسیلیِ معروفِ دیگری که بعدها بافتهای نرم جانداران را در خود حفظ کردند (مانند شیل برجس یا سنگ آهک زلنهوفن)، فسیلهای ادیاکاران محدود به یک محیط خاص با شرایط محیطیِ غیرعادی نیستند؛ بلکه در سرتاسر جهان یافت میشوند؛ بنابراین، فرایندی که منجر به فسیلشدنِ آنها شده، باید پدیدهای سیستماتیک و جهانی بوده باشد.[۳۲] ویژگیِ خاصی در دورهٔ ادیاکاران وجود داشته که اجازه داده بقایای این جاندارانِ ظریف حفظ شوند؛ احتمالاً بقایای این جانداران بهسرعت زیر لایههایی از خاکستر یا ماسه مدفون میشدند و بین این لایههای رویی (خاکستر و ماسه) و لایههای زیرین (گِلها یا بسترهای میکروبی) در طول زمان تبدیل به فسیل میشدهاند.[۳۲]
یکی دیگر از عواملی که احتمالاً به روند سنگوارهشدنِ آنها کمک کرده، غلظت بالای سیلیس در اقیانوسهای آن زمان است. در آن دوران هنوز جاندارانِ مصرفکنندهٔ سیلیس (مانند اسفنجها و دیاتومها) گسترش نیافته بودند و سیلیسِ فراوانِ آب به تثبیتِ بقایای این جانداران کمک میکرده است.[۳۳] بسترهای خاکستری (ناشی از خاکستر آتشفشانی) جزئیات بسیار دقیقی از این فسیلها را در خود حفظ کردهاند و با استفاده از روش تاریخگذاری پرتوسنجشی میتوان قدمت آنها را با دقتِ یک میلیون سال یا حتی دقیقتر محاسبه کرد. [۳۴] با این حال، فسیلهای ادیاکاران بیشتر در زیر لایههای ماسهای (که توسط طوفانها آورده شدهاند) یا در میان توربیدایتها (رسوبات ناشی از جریانهای اقیانوسیِ پرانرژی که بستر دریا را میخراشند) یافت میشوند.[۳۲] امروزه جانداران نرمبدن بهندرت میتوانند در جریانِ چنین رویدادهای پرانرژی و متلاطمی فسیل شوند و معمولاً بدنشان از بین میرود؛ اما در آن زمان، گستردگیِ بسترهای میکروبی احتمالاً مانند یک محافظ عمل میکرده و با تثبیتکردنِ بقایای بدنِ این موجودات، به حفظ آنها کمک میکرده است.[۲۸]
میزان حفظشدگی بقایا
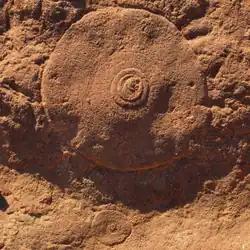
اینکه سطح روییِ بدن یک جاندار فسیل شود یا سطح زیرینِ آن، به یک رقابتِ زمانی بستگی دارد: سرعتِ سخت شدن (سیمانی شدنِ) رسوباتی که روی جاندار را میپوشانند، در برابرِ سرعتِ تجزیه و پوسیدنِ بدنِ آن جاندار. بقایای بدن بیشترِ جانداران دیسکمانند، پیش از آنکه رسوباتِ روییشان سخت شوند، تجزیه میشدند. در نتیجه، پس از متلاشی شدنِ بدن، خاکستر یا ماسه به درون فضای خالیِ باقیمانده فرو میریخت و قالبی از بخشِ «زیرینِ» بدن جاندار شکل میگرفت.[۳۲]
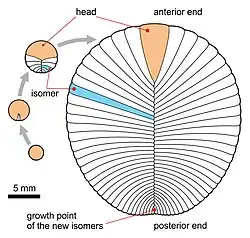
در مقابل، تجزیهٔ بقایای بدن جانداران لحافیشکل معمولاً پس از سخت شدنِ رسوباتِ روییشان اتفاق میافتاد؛ به همین دلیل، سطح «روییِ» آنها حفظ شده است.[۲۸] این جاندارانِ لحافیشکل مقاومت فیزیکیِ بیشتری داشتند؛ چنانکه در موارد نادری، فسیلِ آنها در درونِ رسوباتِ ناشی از طوفان (بسترهای طوفانی) نیز یافت میشود. جریانهای پرانرژیِ طوفانی گاهی نمیتوانستند بقایای این جانداران را متلاشی کنند، در حالی که بقایای جانداران دیسکمانند (که مقاومت کمتری داشتند) در چنین شرایطی کاملاً متلاشی میشدند.[۳۵]
افزون بر این، در برخی موارد، رسوبگذاریِ مواد معدنی توسط باکتریها باعث شکلگیریِ «ماسک مرگ» میشد؛ پدیدهای که در آن، باکتریهای تجزیهکنندهٔ جسد، باعث رسوبِ سریعِ مواد معدنی (بهویژه کانیِ پیریت) روی بقایای جاندار میشدند.[۳۶] این پوستهٔ معدنی، مانند یک قالب سخت (ماسک)، شکل ظریفِ بدن جاندارِ نرمبدن را پیش از لهشدن زیر لایههای سنگینِ رسوبات، برای میلیونها سال حفظ میکرده است. این پدیده در نهایت قالبی برجسته و بسیار دقیق از بدن جاندار به یادگار میگذاشت.[۲۸][۳۶]
ریختشناسی
| اشکال فسیلهای ادیاکاران | |
|---|---|
| یکی از نخستین رویانهای (جنینها) احتمالیِ کشفشده که درون یک آکریتارک خاردار حفظ شده است. اصطلاح «آکریتارک»[وا ۱۱] به گروهی از فسیلهای ریزِ سلولمانند و طبقهبندینشده اطلاق میشود.[۳۷] | 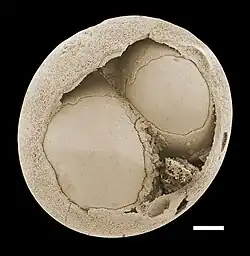 |
| در گذشته تصور میشد فسیلهای دایرهای شکل موسوم به سایکلامدوسا رادیاتا[وا ۱۲] متعلق به عروسهای دریایی باشند، اما پژوهشهای جدید نشان میدهد که آنها احتمالاً بخشِ نگهدارنده (گیرکِ) پتالونامیدها در بستر دریا بودهاند.[۳۸] | 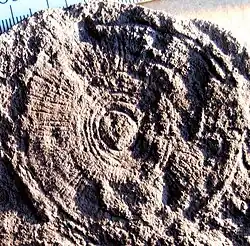 |
| فسیلی از چارنیا، که به عنوان نخستین ارگانیسم پیچیدهٔ تأیید شده از دوران پرکامبرین شناخته میشود.[۳۹] در گذشته تصور میشد چارنیا از خویشاوندانِ قلمهای دریایی باشد.[۴۰] اما امروزه این دیدگاه مورد قبول دانشمندان نیست.[۴۱][۴۲] | 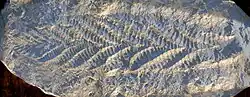 |
| فسیل دیکینسونیا که ظاهرِ لحافیشکلی را نشان میدهد. این ساختار به آن مقاومتِ فیزیکیِ بالایی میبخشید.[۴۳] | 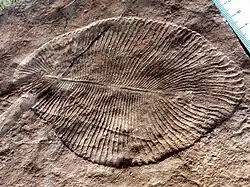 |
| در گذشته اسپریگینا به علت برخی شباهتهای ظاهری، به عنوان یک کرم حلقوی یا یک بندپا در نظر گرفته میشد. اما امروزه، این دیدگاه رد شده است زیرا اسپریگینا اندامهای حرکتیِ مشخص ندارد و همچنین به جای بندهای واقعی، ایزومرهایی با تقارن لغزشی[ث] دارد.[۴۴] | 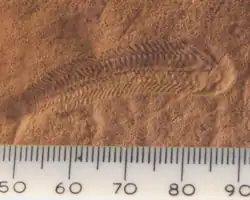 |
| ردفسیلهایِ نوع آرکائوناسا[وا ۱۳] از اواخر دورهٔ ادیاکاران؛ این ردها معمولاً به شکل مسیرهای افقی با حاشیههای برجسته هستند.[۴۵][۴۶] دیرینشناسان معتقدند این شیارها توسط جانورانِ نرمبدنی (مانند کرمها یا نیاکانِ حلزونها) ایجاد شدهاند که برای تغذیه، روی بسترهای میکروبیِ کف دریا میخزیدند و مواد مغذی را میتراشیدند.[۴۷] | 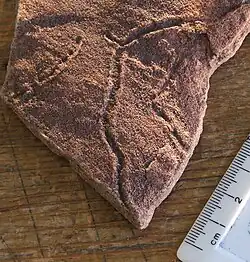 |
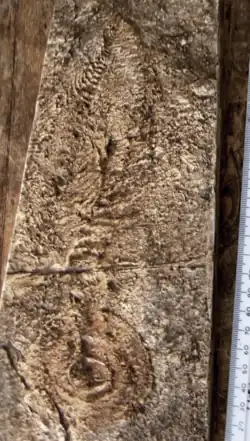
| اپیبایون واگونریس[وا ۱۴]، زنجیرهای از ردفسیلها به همراه قالبِ برجامانده از بدن یورگیا واگونری[وا ۱۵] است که این ردفسیلها را روی بستر میکروبی ایجاد کرده است.[۴۸] | 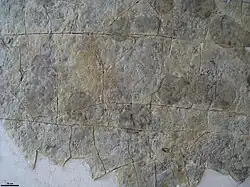 |
زیواگان ادیاکاران طیف بسیار گستردهای از ویژگیهای ریختشناختی را به نمایش میگذاشتند. اندازهٔ آنها از چند میلیمتر تا چند متر متغیر بود؛ میزان پیچیدگیِ آنها از شکلهای ساده و «تودهمانند» تا ساختارهای بسیار ظریف تفاوت داشت؛ و سختی بدنشان از محکم و مقاوم تا نرم و ژلهای در نوسان بود. تقریباً تمام انواعِ شناختهشدهٔ تقارن در این جانداران وجود داشت.[۴۴] این ارگانیسمها با داشتن ساختارِ پرسلولیِ سازمانیافته و تمایزیافته و همچنین اندازههایی فراتر از چند سانتیمتر، با جانداران قدیمیتر که عمدتاً میکروبی بودند، تفاوت اساسی داشتند.[۴۹][۳۲]
این ریختشناسیهایِ کاملاً متفاوت را میتوان بهطور کلی در دستهبندیهایی بر اساس شکل ظاهری (که به آرایههای زبالهدان[ج] معروفاند) گروهبندی کرد:
رویانها (جنینها)
اکتشافاتِ جدید پیرامونِ حیاتِ چندسلولی در دوران پرکامبرین، بیشتر تحت تأثیر گزارشهایی مبنی بر کشفِ رویانها، بهویژه در سازند دوشانتو در چین بوده است. برخی از این یافتهها بازتابِ گستردهای داشتند،[۵۲][۵۳] هرچند گروهی از محققان استدلال کردهاند که این نمونهها در واقع رویان نیستند، بلکه ساختارهای غیرآلی (معدنی) هستند که بر اثر تهنشینیِ مواد معدنی در داخلِ یک حفره شکل گرفتهاند.[۵۴] برخی دیگر از این «رویانها» بهعنوان بقایای باکتریهای غولپیکرِ کاهندهٔ گوگرد (شبیه به تیومارگاریتا) تفسیر شدهاند.[۵۵] این دیدگاه که تا سال ۲۰۰۷ طرفداران قابل توجهی پیدا کرده بود،[۵۶][۵۷] با انجام تحقیقات بعدی دچار چالش شد؛ پژوهشهای جدید، ریختشناسیِ رویانهای احتمالیِ دوشانتو را با نمونههای زنده و در حال تجزیهٔ تیومارگاریتا مقایسه کرده و تفاوتهای فاحشی را میان آنها نشان دادند.[۵۸] از سوی دیگر، کشفِ فسیلهایِ رویانیِ مشابه در سازندِ پورتفیلد[وا ۱۶] در گرینلند، گسترهٔ جغرافیاییِ رویانهایِ فسیلی را بهنحوِ چشمگیری گسترش داده است؛ بهطوریکه اکنون این فسیلها، از عرضهای جغرافیاییِ باستانیِ متفاوتی گزارش میشوند.[۵۹] ریزفسیلهای دوشانتو با قدمت حدود ۶۳۲ میلیون سال (یعنی تنها حدود ۳ میلیون سال پس از پایان یخبندانهای دورهٔ کریوژنین) ممکن است نشاندهندهٔ «مراحل استراحتِ»[چ] رویانی در چرخهٔ زندگی نخستین جاندارانِ چندسلولی باشند.[۳۷] البته یک فرضیهٔ جایگزین این است که این ساختارها در واقع بخشی از مراحل زندگی جانداران بالغ این دوره را نشان میدهند.[۶۰] با وجود اینکه ماهیتِ دقیقِ فسیلهای جنینمانندِ دوشانتو همچنان در دنیای علم محل بحث است، یین[وا ۱۷] و همکارانش در پژوهشی با بررسیهای پیشرفتهتر، شواهدِ محکمتری از نحوهٔ شکلگیریِ الگوهای رشدِ جنینی در این دوران ارائه دادند. یکی از مهمترینِ یافتههای این پژوهش، کاوئاسفائرا است؛ ارگانیسم احتمالیِ پرسلولی که بر اساس برآوردِ این پژوهش، قدمتِ فسیلهای آن به حدود ۶۰۹ میلیون سال پیش میرسد.[۶۱] اهمیت این ریزفسیل در آن است که نشان میدهد مراحلِ تقسیم سلولیِ آن با نظم و هندسهای کاملاً مشابه با الگوهای تکوین در رویانِ (تسهیمِ) جانورانِ امروزی انجام میگرفته است.[۶۱] بر همین اساس، نویسندگانِ این پژوهش، این سنگواره را پیشدرآمدی بر فرگشتِ الگوهای تکوین در رویانِ جانوران میدانند. با این حال، تاکنون هیچ شواهدی مبنی بر اینکه این ساختارها مراحلِ پیچیدهترِ تکوین (نظیر ایجاد بافت و اندام) را طی کرده و به یک جانورِ بالغ تبدیل میشدند، به دست نیامده است.[۶۱]
دیسکیشکلها
فسیلهای دیسکیشکل (مانند ادیاکاریا، سایکلامدوسا و روگوکونیتس) دورهٔ ادیاکاران در ابتدا به عنوان گزندهتباران (شاخهای شامل عروسهای دریایی و مرجانها) دستهبندی میشدند.[۵] با این حال، بررسیهای بیشتر، تفسیرهای جایگزینی را برای تمامِ این فسیلهای دیسکیشکل ارائه داده است؛ بهطوریکه امروزه هیچیک از آنها با اطمینان به عنوان عروس دریایی شناخته نمیشوند. تفسیرهای جایگزین، آنها را گیرکِ دیگر جانداران یا گروهی از آغازیان میدانند؛[۶۲] همچنین الگوهای بهجامانده در محلِ تلاقیِ دو فسیل دیسکیشکل، باعث شده که بسیاری از این نمونهها (که پیشتر یک موجود منفرد تصور میشدند)، در واقع به عنوان کلنیهای میکروبی شناخته شوند.[۶۳] در نهایت، برخی دیگر از این فسیلهای دیسکیشکل ممکن است صرفاً جای خراشهای دایرهایشکلی باشند که بر اثر چرخشِ ارگانیسمهای ساقهدار به دورِ گیرکِ خود (همراه با جریان آب) روی بستر ایجاد شدهاند.[۶۴]
کیسهشکلها
فسیلهایی مانند پتریدینیوم که در میان لایههای رسوبی حفظ شدهاند، ظاهری شبیه به «کیسههای پُر از گِل» دارند. دربارهٔ تفسیرِ ماهیتِ این فسیلها، هنوز اجماعِ علمی در میان پژوهشگران وجود ندارد.[۶۵]
رشتهشکلها
ساختارهای رشتهشکل[وا ۱۸] در فسیلهای دوران پرکامبرین در موارد متعددی مشاهده شدهاند. برای مثال، دیده شده است که فسیلهای برگسان در نیوفاندلند، شبکههایی از رشتهها را در بستر رسوبی ایجاد کردهاند که تصور میشود زائدههایی دستکمانند بودهاند. کشف این رشتهها نشان میدهد که برخی از ارگانیسمهای برگسانِ دورهٔ ادیاکاران مستقیماً به هم متصل بودهاند.[۶۶] در پژوهشی بر روی فسیلهای دورهٔ ادیاکاران در برزیل، ریزفسیلهایی رشتهای کشف شدند که گمان میرود متعلق به یوکاریوتها یا باکتریهای اکسیدکنندهٔ گوگرد[وا ۱۹] باشند.[۶۷] همچنین، فسیلهای رشتهشکلی که در سازند دوشانتو کشف شدند، امروزه بهعنوان یوکاریوت و احتمالاً قارچ در نظر گرفته میشوند. این یافتهٔ احتمالی، مدرک مهمی در مورد خشکیزی شدنِ[وا ۲۰] قارچها در حدود ۶۳۵ میلیون سال پیش است.[۶۸]
فسیلِ وندوگلوسا توبرکولاتا[وا ۲۱] که در نامیبیا کشف شده است، به عنوان یک جانورِ گروه ساقه[ح] تفسیر شده است که بدنی مسطح (فشرده در راستای پشتی-شکمی)، یک حفرهٔ گوارشیِ بزرگ و یک برونپوست (اکتودرم) با برآمدگیهای عرضی داشته است. این ارگانیسم به شکل یک چنبرهٔ (حلقه یا دوناتِ) مسطح است که محور طولیِ بدنش، تقریباً از مرکزِ حفرهٔ گوارشیِ فرضیاش میگذرد.[۷۱]
ارگانیسمهای لحافیشکل
ارگانیسمهای لحافیشکل[وا ۲۲]، ارگانیسمهایی با ظاهری «لحافی» (پفکرده و چندبخشی) که فاقد هرگونه اسکلت بودند، اما ساختارِ بدنشان از بخشهای لولهمانند و متورمی تشکیل میشد که مانند تشکهای بادی با مایعات پر میشدند و به این جانداران مقاومت فیزیکیِ بالایی در برابر فشار رسوباتِ بستر دریا میبخشیدند.[۴۳] طبق نظر آدولف زیلاخر[وا ۲۳] این جانداران نه گیاه بودند و نه جانور؛ بلکه فرمانرویِ مستقلی از حیات به نام «وندوبیونتا» را تشکیل میدادند که پیش از رخداد انفجار کامبرین کاملاً منقرض شدند.[۴۳] گاهی این جانداران لحافیشکل پیش از فسیل شدن پاره یا شکافته میشدند. چنین نمونههای آسیبدیدهای، سرنخهای ارزشمندی را برای بازسازیِ آناتومیِ این جانداران در اختیار دانشمندان قرار میدهند. برای مثال، سه (یا بیشتر) شاخهٔ گلبرگمانند در سوآرتپونتیا ژرمسی[وا ۲۴] تنها در فسیلِ نمونهٔ آسیبدیده این جاندار قابل تشخیص بود؛ چرا که معمولاً در فرایند دفن و فسیل شدن، فشارِ رسوبات این ارگانیسمها را کاملاً تخت میکرد و شاخههای زیرین پنهان میماندند.[۷۲] به نظر میرسد که این جانداران دو گروه اصلی را تشکیل میدادند: رنجئومورفهای دارای ساختار فراکتال و ارنیتومورفهای سادهتر.[۷۳] این جانداران لحافیشکل از جمله چارنیا و دیکینسونیا، هم نمادینترین جانداران دورهٔ ادیاکاران محسوب میشوند و هم جای دادنِ آنها در درخت حیاتِ کنونی از همه دشوارتر است. این جانداران فاقد دهان، روده، اندامهای تولیدمثلی یا هرگونه شواهدی از آناتومی داخلی بودند و شیوه زندگی آنها در مقایسه با جانوران امروزی بسیار متفاوت بود.[۴۳][۷۴] پژوهشی که در سال ۲۰۱۸ بر روی لایههای سنگیِ اواخر دورهٔ ادیاکاران در قارهٔ باستانی بالتیکا انجام شد، نشان میدهد که این جانداران در دورانی فراوان شدند که برخلاف امروز میزان تولید «منابع آلیِ جامد» در محیط بسیار پایین بود. در آن زمان، باکتریها بیشترِ مواد آلی موجود در محیط را به صورت محلول در آب تولید میکردند؛ فعالیت این باکتریها منجر به انباشتِ حجم زیادی از مواد آلیِ حلشده[وا ۲۵] در آب اقیانوسها گردید.[۷۵] پذیرفتهشدهترین فرضیه در مورد نحوهٔ تغذیهٔ اکثر جانداران دورهٔ ادیاکاران این است که آنها بهعلت کمبودِ منابع آلیِ جامد، دهان یا سیستم گوارشی نداشتند و مواد آلیِ محلول در آب را از طریق اسموتروفی[خ] از آبِ دریای پیرامون خود جذب میکردند.[۷۶][۷۴] با این حال، برخی دیگر از محققان با این فرضیه مخالفاند.[۷۷]
غیر وندوبیونتها
برخلاف گروههای پیشین، وجهمشترک اعضای این گروه پیشنهادی شباهت ظاهری نیست. بلکه برخی از پژوهشگران، جاندارانِ این گروه را فرمِ اولیه یا گروهِ ساقهٔ احتمالیِ بعضی از جانوران امروزی میدانند، که باعث میشود در برخی تعاریف، آنها را از دستهٔ اصلیِ زیواگان ادیاکاران کنار بگذارند.[۷۸] کهنترین فسیلِ ادعاشده از این دست، یک جاندار دوسوئیِ احتمالی[د] به نام ورنانیمالکولا است؛[۵۴] هرچند برخی استدلال کردهاند که این فسیل چیزی جز موادِ تهنشینشده در داخلِ یک کیسه یا یک آکریتارک نیست.[۸۰] در سال ۲۰۲۰، ادعا شد که ایکاریا واریوتیا[وا ۲۶] یکی از قدیمیترین ارگانیسمهایی است که دارای تمایزِ قسمتِ جلو (قدامی) و عقب (خلفی) بوده است.[۴۵] نمونههای متأخرتر این جانداران تقریباً توسط تمام دانشمندان به عنوان جانداران دوسوئی پذیرفته شدهاند؛ از جمله کیمبرلا (که شبیه به نرمتنان است)،[۸۱] اسپریگینا (که پیشتر تصویرش در جدول آمد)[۸۲] و فسیل سپریشکلِ پاروانکورینا[۸۳] که البته روابط خویشاوندیِ این مورد اخیر هنوز مورد بحث است.[۸۴] مجموعهای از فسیلها که به نام فسیلهای کوچک صدفی شناخته میشوند نیز در رسوبات دورهٔ ادیاکاران یافت شدهاند. معروفترین آنها کلاودینا است؛[۸۵] یک فسیل صدفی و لولهمانند که غالباً روی آن آثار سوراخشدگی توسط شکارچیان دیده میشود. این موضوع نشان میدهد که هرچند شکارگری در دورهٔ ادیاکاران ممکن است چندان رایج نبوده باشد، اما دستکم وجود داشته است.[۸۶][۸۷] ریزفسیلهای آلیِ معروف به فسیلهای کوچک کربنی نیز در این رسوبات حضور دارند؛ از جمله فسیل مارپیچیشکلِ کوکلئاتینا که گسترهٔ زیستِ آن تا مرز ادیاکاران و کامبرین امتداد یافته است.[۸۸] نمایندگانی از آرایههای زیستیِ جانداران امروزی نیز در دورهٔ ادیاکاران حضور داشتند که برخی از آنها امروزه بهراحتی قابل تشخیصاند. اسفنجها، جلبکهای سرخ و سبز، آغازیان و باکتریها همگی در دورهٔ ادیاکاران حضور داشتند و قدمتِ شکلگیریِ برخی از آنها حتی به حدود سه میلیارد سال پیش از ادیاکاران میرسید.[۸۹][۵۷][۹۰] همچنین فسیلهایی مربوط به این دوره وجود دارند که احتمالاً متعلق به نخستین بندپایان بودهاند.[۹۱] ردفسیلهایی با نام ترپتیچنوس، در واقع نقبها و مسیرهایی هستند که شباهت زیادی به شیارهای حفرشده توسط کرمهای نریشکل امروزی دارند.[۹۲] فسیلهایی از یک نوع جاندار روزندار به نام پلاتیسولنیتس نیز از اواخر دورهٔ ادیاکاران در غرب سیبری پیدا شده که در کنار کلاودینا و ناماکالاتوس همزیستی میکرده است.[۹۳]
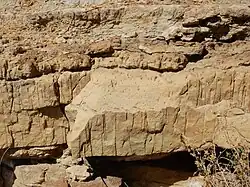
ردفسیل بهجای آنکه بقایای فیزیکیِ خودِ بدن جاندار (مانند استخوان یا صدف) باشد، سندی سنگوارهشده از «رفتار و فعالیت» آن است؛ مانند ردها، نقبها (حفرهها و لانههای زیرزمینی)، مسیرهای خزیدن و آثار تغذیه.[۹۴] به استثنای برخی نقبهای عمودیِ بسیار ساده (مانند اسکولیتوس)،[۹۵] تنها نقبهای موجود در دورهٔ ادیاکاران بهصورت افقی بوده و روی سطح یا درست در زیر بستر دریا قرار داشتند. وجود چنین نقبهایی نشاندهندهٔ حضور ارگانیسمهای متحرکی است که دارای سر بودهاند؛ ویژگیای که احتمالاً به معنای داشتنِ تقارن دوسوئی در آنهاست. این امر میتواند آنها را در کلاد جاندارانِ دوسوئی قرار دهد؛[۹۶] اما از سوی دیگر، این نقبها ممکن است توسط ارگانیسمهای سادهتری ایجاد شده باشند که هنگام تغذیه، بهآرامی روی بستر دریا میغلتیدند.[۹۷] نقبهای احتمالیِ دیگری با قدمتِ ۱۱۰۰ میلیون سال پیش یافت شدهاند که ممکن است توسط جاندارانی ایجاد شده باشند که از قسمتِ زیرینِ بسترهای میکروبی تغذیه میکردهاند (این بسترها مانند سپری آنها را از محیط شیمیاییِ نامساعدِ اقیانوس محافظت میکردند)؛[۹۸] با این حال، عرضِ نامنظم این نقبها و انتهای مخروطیشکلشان، دفاع از فرضیهٔ منشأ زیستی داشتنِ آنها را چنان دشوار کرده است[۹۹] که حتی طرفداران اولیهٔ این فرضیه نیز دیگر به درست بودنِ این فرضیه اعتقادی ندارند.[۱۰۰] نقبهای مشاهدهشده در دورهٔ ادیاکاران، حکایت از رفتارهای سادهٔ حرکتی و تغذیهای دارند و اثری از رفتارهای پیچیدهتر حرکتی و تغذیهای — که از آغاز دورهٔ کامبرین بین جانداران بسیار رایج شدند — در میان آنها دیده نمیشود.[۹۴] برخی از فسیلهای دورهٔ ادیاکاران (بهویژه برخی فسیلهای دیسکیشکل)، با احتیاط و بهطور موقت بهعنوان ردفسیل تفسیر شدهاند، اما این فرضیه مقبولیتِ گستردهای در میان دانشمندان نیافته است.[۱۰۱] علاوه بر نقبها، برخی از ردفسیلهایی که پیدا شدهاند، ارتباط مستقیمی با برخی از جانداران دورهٔ ادیاکاران دارند. برای مثال، فسیلهای یورگیا و دیکینسونیا اغلب در کنار یا نزدیک ردفسیلهایی پیدا میشوند که دقیقاً با شکلِ بدن خودِ آنها مطابقت دارند؛[۱۰۲] تصور میشود که این ردفسیلها با تغذیهٔ مژکی مرتبط باشند، اما روشِ دقیقِ شکلگیریِ این ردفسیلهای پراکنده و همپوشان، هنوز تا حد زیادی نامشخص است.[۴۸] فسیل ارگانیسم کیمبرلا یکی از شناختهشدهترین سنگوارههای دورهٔ ادیاکاران است که برخلاف بسیاری از جاندارانِ همعصر خود، دارای تقارن دوسوئی بود.[۸۱] وجودِ خراشهای فسیلی در کنار بقایای کیمبرلا، احتمالِ وجودِ سوهانک در این جاندار را تقویت میکند. به همین دلیل دانشمندان کیمبرلا را از اجدادِ اولیهٔ نرمتنان میدانند.[۱۰۳][۱۰۴] ردفسیلهای کشفشده از اواخر دورهٔ ادیاکاران، نشاندهندهٔ ظهور نخستین جاندارانِ متقارن و متحرکی هستند که میتوانستند روی بستر دریا بخزند یا رسوبات را جابهجا کنند؛ رویدادی که پیشدرآمدی بر انفجار کامبرین بود.[۹۴]
طبقهبندی و آرایهشناسی

طبقهبندی زیواگان ادیاکاران دشوار است[ذ]؛ از این رو، نظریههای متنوعی دربارهٔ جایگاه آنها در درخت حیات وجود دارد.[۲۲] مارتین گلاسنر در کتاب سپیدهدم حیات جانوری (۱۹۸۴) پیشنهاد کرد که زیواگان ادیاکاران در واقع به گروه تاجِ[ر] جانوران امروزی تعلق داشتند. با این حال، چون هنوز بسیاری از ویژگیهای شاخصی که امروزه برای طبقهبندی جانوران به کار میرود در آنها فرگشت نیافته بود، ظاهرشان برای ما ناآشنا به نظر میرسد.[۱۰۶]
در سال ۱۹۹۸، مارک مکمنامین ادعا کرد که جانداران دورهٔ ادیاکاران فاقد مرحلهٔ رویانی بودهاند و بنابراین نمیتوانستند جانور باشند. او همچنین معتقد بود که این جانداران بهطور مستقل و متفاوت از جانداران امروزی صاحب دستگاه عصبی و مغز شده بودند؛ به این معنا که مسیرِ حرکت به سمت فرگشتِ سیستم عصبی، بیش از یک بار در این سیاره طی شده است.[۶۲]
در سال ۲۰۱۸، تجزیه و تحلیلِ استرولهای باستانی شواهدی ارائه کرد که نشان میداد یکی از نمادینترین فسیلهای این دوره، یعنی دیکینسونیا، احتمالاً یک جانورِ اولیه بوده است.[۱۰۷][۱۰۸]
گزندهتباران
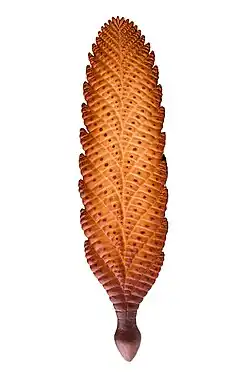
از آنجا که ابتداییترین هوپسزیان — یعنی جانوران پرسلولیِ دارای بافت — در شاخهٔ گزندهتباران جای میگیرند، و از طرفی نخستین فسیلِ تأییدشده از جانداران دورهٔ ادیاکاران یعنی چارنیا شباهت بسیار زیادی به قلمهای دریایی دارد، دانشمندان در نخستین تلاشهای خود برای طبقهبندیِ زیواگان ادیاکاران، آنها را بهعنوان عروس دریایی و قلم دریایی معرفی کردند.[۱۰۹] با این حال، کشفیاتِ جدیدتر نشان دادند که بسیاری از فرمهای دایرهایشکل که پیشتر بهعنوان عروس دریایی در نظر گرفته میشدند، در واقع گیرک بودهاند؛ کیسههایی پر از ماسه که در پایهٔ جانداران برگسان دورهٔ ادیاکاران قرار داشتند و آنها را محکم به بستر دریا متصل میکردند. یک نمونهٔ بارز از این مورد، فسیلی است که با نام چارنیودیسکوس شناخته میشود؛ یک فسیل دایرهایشکل که بعدها محققان دریافتند که در واقع به ساقهٔ بلندِ یک ارگانیسم برگسان متصل بوده است (امروزه کلِ آن ارگانیسمِ برگسان با همین نام شناخته میشود).[۳۹][۱۱۰]
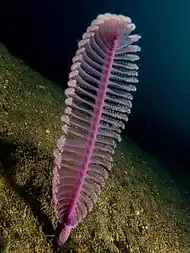
با وجود شباهتهای ظاهری، ارتباطِ میان جانداران برگسان دورهٔ ادیاکاران (مثل چارنیا) و قلمهای دریایی، با تکیه بر شواهد علمیِ مختلفی زیر سؤال رفته است. نخست آنکه قلمهای دریایی گروهی بسیار تخصصیافته و متأخر از هشتمرجانیان هستند؛ قدیمیترین فسیلِ بیچونوچرایِ آنها به اواخرِ دورانِ کرتاسه، یعنی صدها میلیون سال پس از دورهٔ ادیاکاران بازمیگردد[۱۱۱] و حضورِ ناگهانیِ آنها در سپیدهدمِ حیاتِ جانوری بدونِ هیچگونه اجدادِ سادهتری از نظرِ فرگشتی بسیار بعید است.[۱۱۲] ثانیاً قلمهای دریاییِ امروزی برخلافِ ظاهرشان، کلونیای از صدها پولیپِ ریزند، در حالی که جانداران برگسانِ دورهٔ ادیاکاران دارای یکپارچگیِ ساختاری و پیوستگی در میانِ شاخهها و بندهای خود بودند؛[۱۱۲] مطالعاتِ آناتومیک نیز ثابت کردهاند که ارگانیسمهای برگسانی مانندِ چارنیا ساختاری کاملاً یکپارچه و غیرکلونی داشتند.[۱۱۳] در نهایت، تحلیلِ «قطبهای رشد» این دو جاندار نشان میدهد که الگوی اضافهشدنِ شاخههای جدید در چارنیا، دقیقاً در جهتِ معکوسِ الگوی رشد در قلمهای دریایی است؛ این تفاوتِ بنیادین نتیجه میدهد که برگسانهای دورهٔ ادیاکاران نمیتوانند ماهیتی مشابه قلمهای دریایی داشته باشند و شباهتِ آنها صرفاً ظاهری و تصادفی است.[۴۲]
شاخهٔ منحصربهفرد
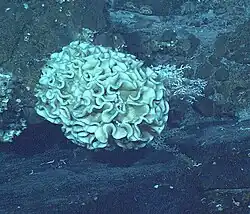
آدولف زیلاخر در دههٔ ۱۹۸۰ پیشنهاد داد که برخی از جانداران دورهٔ ادیاکاران، بهویژه آنهایی که دارای ساختارهای برگسان یا لحافیشکل بودند، گروهی مستقل و منقرضشده از جانداران را تشکیل میدادند. او بر همین اساس، یک گروه پیشنهادی در سطح فرمانرو با نام «وندوزوآ»[ز] را معرفی کرد[۱۱۴][۱۱۵]
زیلاخر بعدها این مفهوم را تغییر داد و گروه «وندوبیونتا» را برای طبقهبندی برخی از جانداران دورهٔ ادیاکاران پیشنهاد کرد. او وندوبیونتها را نه بهعنوان جانوران واقعی، بلکه بهعنوان یک گروه خواهر احتمالی برای هوپسزیان مطرح کرد. در چارچوب این فرضیه، وندوبیونتها دارای ساختاری موسوم به «ساختار لحافی»[وا ۲۷] بودند؛ یعنی بدنی متشکل از واحدهای بههمپیوسته داشتند که با ساختار بدن جانوران امروزی تفاوت اساسی داشت.[۱۱۵][۷۸] اگر این جانداران هیچ نسلی از خود به جا نگذاشته باشند، میتوان اَشکال عجیب آنها را به عنوان یک «تجربهٔ شکستخورده» در حیات چندسلولی در نظر گرفت؛ بهطوریکه حیات چندسلولیِ پس از آنها، بهطور مستقل فرگشت یافته است.[۱۱۶] زیلاخر همچنین پیشنهاد داد که این جانداران، فاقد ساختارهای تخصصیافتهٔ مشابهِ جانورانِ امروزی برای تغذیه و شکار بودند و احتمالاً از راهبردهایی مانند تغذیهٔ اسمزی[وا ۲۸] یا ارتباط با کلنیهای میکروبی برای تأمین انرژی استفاده میکردند.[۷۸]
مارک مکمنامین[وا ۲۹] نیز با الهام از این دیدگاه، زیستبوم ادیاکاران را «باغ ادیاکارا»[وا ۳۰] نامید؛ استعارهای برای توصیف محیطی که در آن بسترهای میکروبی گسترده وجود داشتند و شکارگری پیچیده هنوز در آن رایج نشده بود.[۶۲]
زیلاخر و همکارانش در سال ۲۰۰۳ این دیدگاه را گسترش دادند و پیشنهاد کردند که زیستبوم دورهٔ ادیاکاران تحت سلطهٔ بسترهای میکروبی و وندوبیونتها بوده است. آنها وندوبیونتها را جاندارانی مستقل از جانوران میدانستند که از برخی جنبهها با زنوفیوفورهای امروزی (تکسلولیهای غولپیکر) قابل مقایسه بودند.[۱۱۷] بر اساس این فرضیه، جانوران واقعی در آن زمان نسبتاً کوچک و کمشمار بودند و پس از پایان دورهٔ ادیاکاران، تغییرات اکولوژیک همراه با انفجار کامبرین، جانوران واقعی را به عناصر غالب زیستبومهای دریایی تبدیل کردند.[۱۱۷]
امروزه این فرضیه، دیدگاه غالب در دیرینشناسی نیست. برای مثال، انتکلیف[وا ۳۱] و همکاران در سال ۲۰۱۱ در بررسی فسیل پالئوپاسیکنوس شواهدی برای تفسیر آن بهعنوان یک جاندار تکسلولی، شبیه زنوفیوفورها پیدا نکردند.[۱۱۸] همچنین مطالعات مولکولی نشان دادهاند که زنوفیوفورهای امروزی در درون گروه روزنداران قرار میگیرند و بنابراین شباهت آنها با برخی فسیلهای دورهٔ ادیاکاران بیشتر بهعنوان یک شباهت ریختشناختی تفسیر میشود، نه شاهدی بر ارتباط نزدیک تبارشناختی بین آنها.[۱۱۹]
فرضیهٔ گلسنگ
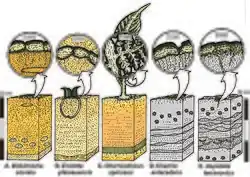
گرگ رتالاک[وا ۳۲] پیشنهاد کرده است که جانداران دورهٔ ادیاکاران در واقع گلسنگ بودهاند.[۱۲۴][۱۲۵] او استدلال میکند که مقاطع نازکِ (برشهای میکروسکوپی) تهیهشده از این فسیلها، دارای محفظههایی شبیه به ساختمان گلسنگها و رشتههایی شبیه به نخینه از جنس خاک رسِ آهندار[ژ] هستند.[۱۲۰] علاوه بر این، او ادعا میکند که فسیلهای دورهٔ ادیاکاران در لایههایی یافت شدهاند که به باور او نشاندهندهٔ خاکهای بیابانی هستند، نه بستر دریا.[۱۲۵][۱۲۷]
این پیشنهاد توسط سایر دانشمندان مورد مناقشه قرار گرفته و رد شده است. بسیاری از پژوهشگران شواهدِ رتالاک را مبهم و غیرمتقاعدکننده توصیف کردهاند؛ برای نمونه، آنها اشاره میکنند که فسیلهای دیکینسونیا روی سطوح موجدار (که مشخصاً نشاندهندهٔ یک محیط دریایی است) یافت شدهاند.[۱۲۱] همچنین، گرگ رتالاک ادعا کرده بود که برخی از ردفسیلهای شیارمانند، همچون رادولیچنوس که عموماً بهعنوان رد ناشی از تغذیهٔ جانورانِ اولیه شناخته میشود، در واقع شیارهای فیزیکیِ ناشی از تشکیل یخهای سوزنی در خاکهای یخزدهٔ بیابانی بودهاند؛ اما بررسیهای رسوبشناختیِ سایر دانشمندان نشان دادند که این ردفسیلها نمیتوانند منشأ یخزدگی داشته باشند و کاملاً بیولوژیک هستند.[۱۲۱][۱۲۲][۱۲۳]
علاوه بر این، متیو نلسن[وا ۳۳] در سال ۲۰۱۹ با بررسی و سنسنجیِ تبارزایشِ قارچهای کیسهای و جلبکهای سبزتبار (که اجزای اصلی سازندهٔ گلسنگها هستند)، دریافت که هیچگونه شاهدی مبنی بر پیدایش گلسنگها پیش از ظهور گیاهان آوندی (در حدود ۴۳۰ میلیون سال پیش) وجود ندارد. در نتیجه احتمالِ حضور گلسنگها در دورهٔ ادیاکاران بسیار ضعیف ارزیابی میشود.[۱۲۸]
دیدگاه غالب کنونی

در طول زمان، طبقهبندیهای مختلفی برای جایدادنِ زیواگان ادیاکاران در درخت حیات پیشنهاد شده است.[۲] این آرایههای پیشنهادی طیف وسیعی را در بر میگیرند؛ از جلبکها،[۳۹] آغازیانِ جانورمانند[۱۲۹] و قارچها[۱۳۰] گرفته تا کلنیهای باکتریایی یا میکروبی،[۶۳] و حتی جاندارانِ فرضیِ واسط میان گیاهان و جانوران.[۱۳۱][۱۳۲] امروزه بیشتر پژوهشگران بر این باورند که زیواگان ادیاکاران یک گروهِ تکتبار نبودهاند، بلکه مجموعهای ناهمگن از جانداران با خاستگاههای فرگشتی متفاوت را تشکیل میدادهاند.[۲۴][۱۳۳] این مجموعه احتمالاً شامل جانورانِ گروه ساقه، شماری از جانورانِ گروهِ تاج، چندین دودمان منقرضشده و بدونِ بازماندهٔ امروزی، همچنین کلنیهای باکتریایی و میکروبی و نیز برخی دیگر از یوکاریوتها، مانند جلبکها و آغازیان بوده است.[۵۱][۷۴]
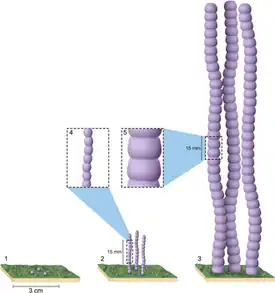
پژوهشها نشان میدهند که جاندارانی لولهایشکل با نامِ فونیسیا دوروتیا[وا ۳۴] در دورهٔ ادیاکاران، مانند اسفنجهای دریاییِ امروزی، بهصورت دستههای بسیار متراکم و نزدیکبههم رشد میکردند و الگوی تولیدمثل و رشد مشابهی با آنها داشتند؛ موضوعی که ارتباط احتمالی آنها را با اسفنجها تقویت میکند.[۱۳۴] برخی از جاندارانِ این دوره، مانند کیمبرلا، دیکینسونیا و احتمالاً ایکاریا، بهعنوان جانوران اولیه یا خویشاوندان نزدیک به جانوران امروزی تفسیر میشوند، در حالی که جایگاه بسیاری دیگر از فسیلهای این دوره همچنان نامشخص است.[۱۳۵][۱۳۶][۴۵] در سال ۲۰۱۴، یک سردهٔ جدید و زنده به نام دندروگراما در اعماق اقیانوس کشف شد. این جاندار در زمان کشف بهنظر میرسید که یک جانور بسیار ابتدایی با جایگاه آرایهشناختیِ نامشخص باشد و شباهتهای ظاهریِ آن با زیواگان باستانیِ ادیاکاران بهشدت مورد توجه قرار گرفت.[۱۳۷] با این حال، پژوهشهای ژنتیکی و ساختاریِ بعدی نشان دادند که این نمونهها در واقع متعلق به یک جانور لولهدار بودهاند و احتمالاً تنها قطعاتی جداشده از یک گونهٔ پیچیدهترِ امروزی محسوب میشوند.[۱۳۸]
یکی از مهمترین پیشرفتهای اخیر در این زمینه، حل مناقشهٔ طولانیمدت بر سر ماهیت چارنیا و سایر رانجئومورفها بود. مطالعهٔ دان[وا ۳۵] و همکاران در سال ۲۰۲۱ با بررسی دقیق الگوهای رشد و ساختارهای کالبدشناختی (آناتومیکِ) این جانداران، نشان داد که آنها را میتوان با تکیه بر همین شواهد بهعنوان هوپسزیِ گروه ساقه طبقهبندی کرد.[۱۳۹] در زمینهٔ یافتنِ اجدادِ مستقیمِ جانوران امروزی، کشف فسیل اورورالومینا در سال ۲۰۲۲ اهمیتِ ویژهای دارد. این فسیل با قدمتِ ۵۵۷ تا ۵۶۲ میلیون سال (مربوط به دورهٔ ادیاکاران) که در منطقهٔ چارنوود فارست انگلستان کشف شد، ساختاری جاممانند همراه با شاخکهایی در اطراف خود دارد. ریختشناسیِ این جاندار شباهت بسیار زیادی به شقایقهای دریایی و مرجانهای امروزی دارد و به همین دلیل، دیرینشناسان آن را قدیمیترین نمونهٔ تأییدشده از یک گزندهتبارِ گروهِ تاج محسوب میکنند و به عنوان نخستین مدرک حضور یک شاخهٔ زندهٔ جانوران امروزی در دورهٔ ادیاکاران در نظر میگیرند.[۱۰۵]
پیدایش و شکوفایی
نزدیک به چهار میلیارد سال پس از شکلگیری زمین، با آغاز دورهٔ ادیاکاران در حدود ۶۳۵ میلیون سال پیش، نخستین فسیلهای شناختهشدهٔ این دوره ظاهر شدند. [۲۰] اگرچه گزارشهایی از فسیلهای احتمالی با قدمت ۳٬۴۶۰ میلیون سال پیش وجود دارد،[۸۹][۱۴۰] نخستین شواهد پذیرفتهشدهٔ حیات به ۲٬۷۰۰ میلیون سال پیش بازمیگردد[۱۴۱] و یوکاریوتها (جانداران دارای سلولهای هستهدار) بهطور قطع از ۱٬۲۰۰ میلیون سال پیش روی زمین حضور داشتهاند.[۱۴۲] به نظر میرسد در طول این دوران، سطح پیچیدگی زیستی بهآرامی افزایش یافته و با گذشت زمان، فرمهای پیچیدهتری از حیات فرگشت یافتهاند. برای نمونه، شواهدی از اشکال نسبتاً پیچیدهتر حیات مانند فسیلهای نیمبیا[وا ۳۶] در سازندِ تویتیا[وا ۳۷] با قدمت ۶۱۰ میلیون سال به دست آمده[۱۴۳][۱] و همچنین از سنگهای با قدمت حدود ۷۷۰ میلیون سال در قزاقستان، ساختارهایی گزارش شدهاند که برخی پژوهشگران آنها را احتمالاً مشابه جانداران زیستبوم ادیاکاران دانستهاند،[۱۴۴] هرچند که ماهیتِ فسیلهای دیسکمانندِ بسیار قدیمی مانند نیمبیا در جامعهٔ علمی محل بحث است. برخی دیرینشناسان معتقدند این ساختارها ممکن است نه بقایای جانداران پرسلولی اولیه، بلکه کلنیهای میکروبی یا حتی ساختارهای رسوبیِ غیرزیستی باشند که در اثر فرایندهای زمینشناختی شکل گرفتهاند.[۱۰۱]
سطح اکسیژن
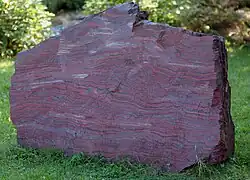
در دوران اولیهٔ پیدایش زمین، برخی عناصر واکنشپذیر، مانند آهن و اورانیوم، به حالت احیاشده در آب اقیانوسها وجود داشتند.[۱۴۵] مقادیر عظیمِ آهنِ محلول (⁺Fe²) در اقیانوسهای اولیهٔ زمین، با هرگونه اکسیژنِ آزادی که توسط ارگانیسمهای فتوسنتزکننده تولید میشد، فوراً واکنش میدادند و بهصورت اکسید آهنِ نامحلول رسوب میکردند.[۱۴۶] در نتیجه تا زمانی که بیشتر آهنِ محلول در آب اقیانوسها با اکسیژن آزاد ترکیب نمیشد و بهصورت اکسیدهای آهن رسوب نکرده بود، اکسیژن نمیتوانست در اتمسفر و اقیانوسها انباشته شود؛ فرایندی که طی میلیاردها سال (عمدتاً بین ۳٫۵ تا ۱٫۸ میلیارد سال پیش) به تشکیل سازندهای آهن نواری انجامید. در همین فرایند، سایر عناصر واکنشپذیر نیز به مرور زمان کاملاً اکسید شدند.[۱۴۶] با این حال، انباشته شدنِ اتمسفر و اقیانوسها از اکسیژن بلافاصله رخ نداد؛ بلکه زمین وارد دورهای طولانی و باثبات (معروف به میلیارد سال خستهکننده) شد که در آن سطح اکسیژن همچنان بسیار پایین بود.[۱۴۷] مطالعهٔ کنفیلد[وا ۳۸] و همکاران نشان داد که با پایان یافتنِ این دورانِ طولانی و درست پیش از ظهور جانداران دورهٔ ادیاکاران، سطح اکسیژن جو زمین برای نخستین بار بهطور چشمگیری افزایش یافته بود.[۱۴۸] به همین دلیل، عاملِ «وجود اکسیژن»، خیلی زود به عنوان یکی از اصلیترین عوامل احتمالی برای واگرایش سازشی جانداران دورهٔ ادیاکاران پیشنهاد شد.[۱۴۹]
به نظر میرسد که اکسیژن در آن دوران در دو مرحلهٔ مجزا در محیط انباشته شده است؛ ظهور ارگانیسمهای کوچک و ثابت (بیحرکت) با مرحلهٔ اول افزایش سطح اکسیژن همبستگی دارد، در حالی که ظهور ارگانیسمهای بزرگتر و متحرک در حوالیِ مرحلهٔ دوم افزایش سطح اکسیژن رخ داده است.[۱۵۰] همین موضوع باعث شده بود تا در بازسازیِ ترکیبِ جوّی دورهٔ ادیاکاران تأکید ویژهای بر نقش و حضور اکسیژن شود، اما این فرضیه امروزه با انتقاداتی نیز روبهرو شده است؛ زیرا در برخی دورهها، مانند کامبرین آغازین و کرتاسه، وجود نواحی گستردهٔ بیاکسیژن در اقیانوسها ظاهراً مانع از تداوم حیات چندسلولی نشده است؛ از این رو، نقش اکسیژن بهعنوان اصلیترین عامل ظهور جانداران چندسلولی همچنان محل بحث است.[۱۵۱]
دورههای سرمای شدید
دورههای سرمای شدید نیز به عنوان یکی از موانعِ احتمالیِ پیدایش حیات چندسلولی پیشنهاد شدهاند. کهنترین جنینهای احتمالی شناختهشده، که از سازند دوشانتو در چین به دست آمدهاند، مربوط به تنها حدود سه میلیون سال پس از پایان یک یخبندان بزرگ جهانی هستند. این موضوع این احتمال را مطرح میکند که تا پیش از آن پوشش گستردهٔ یخ و اقیانوسهای سرد مانع پیدایش حیات چندسلولی بوده باشند.[۱۵۲] آغاز دورهٔ ادیاکاران با پایان یکی از سختترین یخبندانهای تاریخ زمین که به «زمینگوی برفی» یا «یخبندان مارینو» معروف است، همزمان بوده است. بهطور مشخص، پایانِ این یخبندان (حدود ۶۳۵ میلیون سال پیش) باعث آزادشدنِ حجم عظیمی از مواد آلی و معدنی مختلف و تغییر در شیمی اقیانوسها شد که راه را برای پیدایش نخستین جانداران پیچیده هموار کرد.[۱۵۳]
انفجار آوالون
در اوایل سال ۲۰۰۸، گروهی از پژوهشگران، میزان «ناهمانندی الگوهای بدن»[س] را در جانداران ادیاکاران بررسی کردند.[۱۵۵] این بررسی بر روی سه مجموعهٔ فسیلیِ مختلف انجام شد: مجموعهٔ فسیلی آوالون در کانادا (۵۷۵ تا ۵۶۵ میلیون سال پیش)؛ مجموعهٔ فسیلی دریای سفید در روسیه (۵۶۰ تا ۵۵۰ میلیون سال پیش)؛ و مجموعهٔ فسیلی ناما در نامیبیا (۵۵۰ تا ۵۴۲ میلیون سال پیش، یعنی در حدود زمانی آغاز دورهٔ کامبرین). آنها دریافتند که اگرچه مجموعهٔ فسیلی دریای سفید بیشترین تنوع گونهای را داشته است، اما تفاوت معناداری در میزانِ «ناهمانندی الگوهای بدنی» میان این سه گروه وجود نداشت.[۱۵۵] بر همین اساس، پژوهشگران نتیجه گرفتند که این جانداران باید پیش از آغازِ بازهٔ زمانیِ قدیمیترین مجموعهٔ مورد بررسی، مجموعهٔ آوالون (۵۷۵ تا ۵۶۵ میلیون سال پیش)، «انفجار فرگشتیِ» ویژهٔ خود را از سر گذرانده باشند؛ رخدادی موسوم به انفجار آوالون که احتمالاً مشابه با انفجار کامبرین بوده است. «انفجار آوالون» در حال حاضر نخستین شکوفاییِ بزرگِ ناهمانندیِ ریختی[وا ۳۹] در حیاتِ چندسلولی شناخته میشود.[۱۵۶][۱۵۵] شواهد علمی نشان میدهند که این رخدادِ احتمالی، با فاصلهٔ کمی پس از پایانِ «یخبندان گاسکیرز» (حدود ۵۸۰ میلیون سال پیش) اتفاق افتاده است و باعث شده تا جاندارانِ دورهٔ ادیاکاران از فرمهای ساده به ساختارهای پیچیدهتر و متنوعتر فرگشت یابند.[۱۵۷] با این حال، این نتیجهگیری قطعیت کامل ندارد. از آنجا که سنگوارههای فراوانی از زیواگان ادیاکاران از پیش از تاریخِ احتمالیِ انفجار آوالون (۵۷۵ میلیون سال پیش) در دست نیست، پژوهشگران نمیتوانند مشخص کنند که این «انفجار فرگشتی» دقیقاً چه زمانی رخ داده است؛ تنها میتوان گفت که این رخداد پیش از این تاریخ به وقوع پیوسته است.[۱۵۸][۱۵۹]
| مجموعه | ناهمانندی (Disparity) | تنوع گونهای (Diversity) |
|---|---|---|
| آوالون (۵۷۵ تا ۵۶۵ میلیون سال پیش) | بسیار بالا — تمام الگوهای اصلی بدن از همان ابتدا پدیدار شدند. | پایین — تعدادِ گونهها کم بود. |
| دریای سفید (۵۶۰ تا ۵۵۰ میلیون سال پیش) | مشابهِ آوالون (بدونِ گسترشِ بیشتر). | افزایشیافته |
| ناما (۵۵۰ تا ۵۴۲ میلیون سال پیش) | مشابهِ آوالون، اما با توزیعی متفاوت. | کاهشیافته |
رخداد شورام
در میانهٔ دورهٔ ادیاکاران (در بازهٔ حدود ۵۷۳ تا ۵۶۲ میلیون سال پیش)، زمین یکی از بزرگترین ناهنجاریهای ایزوتوپی کربن در تاریخ خود موسوم به «رخداد شورام» را تجربه کرد که احتمالاً بازتابِ دگرگونیهای بنیادین در چرخهٔ جهانیِ کربن بوده است.[۱۶۰] بیشتر پژوهشگران بر این باورند که این رویداد با تغییرات گستردهای در شیمی آب اقیانوسها همراه بود؛ از جمله نوسان در چرخههای کربن و گوگرد، تغییر در شرایط اکسایش-کاهشِ آبها و در نهایت، افزایشِ اکسید شدنِ مواد آلیِ مدفون در رسوباتِ بسترِ اقیانوسها.[۱۶۱] یکی از فرضیههای مطرح این است که اکسید شدنِ گستردهٔ این مواد آلی باعث شد تا اکسیژنِ بیشتری در اقیانوسها و احتمالاً جوِ زمین انباشته شود. بر اساس این فرضیه، چنین رویدادی محیط را برای فرگشتِ جانورانِ پرتحرکتر و گسترشِ متابولیسم هوازی مناسبتر کرد.[۱۵۰] با این حال، این سناریو همچنان در حد یک فرضیه است و اجماعِ کاملی دربارهٔ منشأ و پیامدهای آن در میان دانشمندان وجود ندارد.[۱۶۲]
انقراض
ناپدید شدنِ ردفسیلها و بقایایِ زیواگان ادیاکاران در لایههایِ رسوبیِ پس از این دوره، رخدادی احتمالی است که به «انقراض پایان ادیاکاران» معروف است و احتمال داده میشود که حدود ۵۳۹ میلیون سال پیش (در مرز دورهٔ ادیاکاران و کامبرین) رخ داده باشد.[۱۶۳] با این حال، برخی پژوهشها پیشنهاد کردهاند که انقراض زیواگان ادیاکاران احتمالاً در دو مرحله روی داده است؛ مرحلهٔ نخست در حدود ۵۵۰ میلیون سال پیش و مرحلهٔ دوم در نزدیکی ۵۳۹ میلیون سال پیش.[۱۶۴] این رخداد احتمالی با دگرگونیِ بنیادینی در اکوسیستمِ زمین همراه بود. برخلاف جانداران نرمبدن و عمدتاً بیحرکتِ دورهٔ ادیاکاران، جاندارانِ عصرِ «انفجار کامبرین»، جانورانی با تواناییِ ایجادِ اسکلتهای معدنی و صدف و همچنین سبک زندگیِ فعالتر (مانند شکارگری و نقبزدن در بستر دریا) بودند و توانستند بهسرعت بر اقیانوسها مسلط شوند.[۱۳۳]
سوگیری حفظشدگی
«سوگیری در حفظ سنگوارهها»[وا ۴۰] به این واقعیت علمی اشاره دارد که مجموعهٔ کل سنگوارههایی که تا به امروز کشف و ثبت شدهاند، تصویر کامل و همهجانبهای از وضعیت حیات گذشته به ما نمیدهند. از آنجا که جاندارانِ دارای بخشهای سخت (مانند استخوان یا صدف) بسیار راحتتر از جاندارانِ دارای بافت نرم فسیل میشوند، و همچنین به دلیل اینکه شرایط محیطیِ خاصی برای فسیلشدن لازم است، بقایای بسیاری از جانداران (از جمله اکثر جاندارانِ نرمبدنِ دورهٔ ادیاکاران) هرگز حفظ نشده و پیش از تبدیلشدن به سنگواره از بین رفتهاند.[۱۶۵] کمبود فسیلهای جانداران دورهٔ ادیاکاران پس از آغاز دورهٔ کامبرین میتواند صرفاً به این دلیل باشد که شرایط محیطی، دیگر برای فسیل شدن این جانداران مناسب نبوده است.[۱۶۵] در نتیجه، این جانداران ممکن است تا مدتها پس از دورهٔ ادیاکاران نیز، بدون بر جا گذاشتنِ هیچگونه فسیلی، به حیات خود ادامه داده باشند.[۲۶] با این حال، اگر آنها در دورهٔ کامبرین همچنان فراوان و رایج بودند، انتظار میرفت که از آنها در مجموعههای فسیلی با شرایط حفظشدگیِ استثنایی[ش] مانند شیل برجس و شیل مائوتیانشان که متعلق به دورهٔ کامبرین هستند، فسیلهای بسیار بیشتری نسبت به چند نمونهٔ پراکنده و تصادفی فعلی یافت شود.[۱۶۷][۱۶۸][۱۶۹]
مشاهداتی تأییدنشده از وجود فسیلهایی شبیه به جاندارانِ دورهٔ ادیاکاران در کانسارهای نوع اورستن[وا ۴۱] در چین با قدمت ۵۳۵ میلیون سال (اوایل دورهٔ کامبرین) گزارش شده است.[۱۷۰] با وجود اینکه سنگوارههای نادری متعلق به اواخر دورهٔ کامبرین میانه (۵۰۰ تا ۵۱۰ میلیون سال پیش) کشف شدهاند که احتمالاً بازماندگانِ جانداران دورهٔ ادیاکاران هستند،[۱۷۱] اما بخش عمدهٔ این موجوداتِ قدیمی در پایان دورهٔ ادیاکاران منقرض شدند و دیگر اثری از آنها در میان سنگوارهها یافت نشد.[۱۷۲] با وقوع این انقراض، از اکوسیستمهای پررونقِ دورهٔ ادیاکاران، تنها بقایای کوچک و پراکندهای بر جای ماند.[۱۷۱]
شکارگری و چراگری
برخی از دانشمندان پیشنهاد دادهاند که در اوایل دورهٔ کامبرین، جاندارانی که در سطوح بالاترِ زنجیرهٔ غذایی قرار داشتند، باعث شدند تا بسترهای میکروبی اقیانوسها تا حد زیادی از بین بروند.[۳۰] اگر این چراگران دقیقاً همزمان با آغاز افول زیواگان ادیاکاران پدیدار شده باشند، میتوان نتیجه گرفت که آنها طی رویدادی موسوم به «انقلاب بستر کامبرین»، ثباتِ بسترهای میکروبی را برهم زده و باعث جدا شدنِ جانداران دورهٔ ادیاکاران از این بسترها شدهاند؛ یا اینکه با نابودیِ بسترهای میکروبی، کل اکوسیستم بیثبات شده و به انقراض این زیواگان انجامیده است.[۳۰][۱۷۳]
از سوی دیگر، این احتمال نیز وجود دارد که جانورانِ ابتدای دورهٔ کامبرین که متحرک و دارای اسکلت و صدف سخت بودند، مستقیماً از جاندارانِ نسبتاً بیدفاع و ثابتِ دورهٔ ادیاکاران تغذیه کرده باشند.[۶۲] با این حال، اگر تفسیرِ رفتارشناسانه در مورد جاندارِ دورهٔ ادیاکاران، کیمبرلا، بهعنوان یک چراگر درست باشد، نشاندهندهٔ آن است که زیواگانِ ادیاکاران از قبل، هرچند بهطور محدود، با شکارگری یا چراگری مواجه شده بودهاند.[۸۱]
رقابت
شکلگیری ویژگیهای جدید در جانوران دورهٔ کامبرین (که احتمالاً برای مقابله با شکارچیان اتفاق افتاده بود)، رقابت را در طبیعت افزایش داد. این رقابت ممکن است جانداران دورهٔ ادیاکاران را از محیط زندگی خود حذف کرده باشد.[۱۷۴] با این حال، باید در پذیرش قطعیِ چنین فرضیهای محتاط بود؛ برای نمونه، در گذشته تصور میشد که نرمتنان دوکفهای در رقابت با بازوپایان پیروز شده و جای آنها را در طبیعت گرفتهاند. اما مقالهٔ استفن جی گولد[وا ۴۲] (۱۹۸۰) نشان داد که جایگزینی بازوپایان با نرمتنان دوکفهای حاصل رقابت مستقیم نبود، بلکه ناشی از واکنشِ متفاوتِ این دو گروه به انقراضهای دستهجمعی بود.[۱۷۵]
تغییر در شرایط زیستمحیطی
در پایان دورهٔ پرکامبرین و آغاز دورهٔ کامبرین، محیط زیست زمین دستخوش تغییرات گستردهای شد. پژوهشگران بر این باورند که افولِ زیواگان ادیاکاران احتمالاً نتیجهٔ یک عامل واحد نبود، بلکه مجموعهای از تغییرات زمینشناختی، اقیانوسی و جوی بهطور همزمان شرایط زندگی را برای این جانداران دگرگون کرد.[۱۷۶][۱۷۷] از جملهٔ این تغییرات، تجزیهٔ ابرقارهها بود که آرایش قارهها و حوضههای اقیانوسی را تغییر داد و بر جریانهای اقیانوسی و شرایط زیستمحیطی تأثیر گذاشت.[۱۷۶] همزمان، بالا آمدن سطح آب دریاها موجب گسترش دریاهای کمعمق در حاشیهٔ قارهها شد. این محیطهای تازه، زیستگاههای جدید و مناسبی برای بسیاری از جانوران دورهٔ کامبرین، بهویژه شکارچیان و جانوران نقبزن، فراهم کردند؛ گروههایی که میتوانستند بستر دریا را دگرگون کنند و فشار بیشتری بر زیواگان ادیاکاران وارد آورند.[۱۷۸] در همین زمان، احتمال بروز بحران در دسترسی به مواد مغذی در اقیانوسها نیز مطرح شده است. چنین تغییری میتوانست بر رشد و بقای جاندارانی که به شرایط نسبتاً پایدار محیط وابسته بودند، اثر منفی بگذارد.[۱۷۷] همچنین، شواهد زمینشیمیایی از وقوع تغییراتی در جو زمین، از جمله نوسان در مقدار اکسیژن و کربن دیاکسید، حکایت دارند. این تغییرات احتمالاً بر ویژگیهای شیمیایی آب دریاها و در نتیجه بر زیستبومهای دریایی اثر گذاشتند.[۱۷۹] برخی مطالعات یک دوره یخچالی در اواخر ادیاکاران، موسوم به یخبندان بایکونوری، را گزارش کردهاند. این رخداد میتوانسته بخشی از تغییرات اقلیمی و زمینشیمیایی باشد، اما گسترهٔ جهانی آن و ارتباط آن با تغییرات زیستبومهای ادیاکاران یا انقراض پایان ادیاکاران همچنان روشن نیست.[۱۸۰][۱۸۱]
از سوی دیگر، تغییر در ترکیبات شیمیایی اقیانوسها شرایط را برای زیستکانیسازی، یعنی تشکیل ساختارهای سختی مانند اسکلت و صدف، مناسبتر کرد. این ویژگی به بسیاری از جانوران نوظهور دورهٔ کامبرین امکان داد تا از اندامهای سختِ خود برای محافظت یا تغذیه استفاده کنند؛ در حالی که بیشتر جانداران دورهٔ ادیاکاران بدن نرم داشتند و فاقد چنین ساختارهایی بودند.[۱۸۲][۱۸۳] هیچیک از این عوامل بهتنهایی برای توضیح ناپدید شدن زیواگان ادیاکاران کافی دانسته نمیشود؛ اما به نظر میرسد که همزمانی این دگرگونیهای زمینشناختی، اقیانوسی و زیستمحیطی نقش مهمی در افول آنها ایفا کرده است.[۱۷۷][۱۶۴]
مجموعههای فسیلی
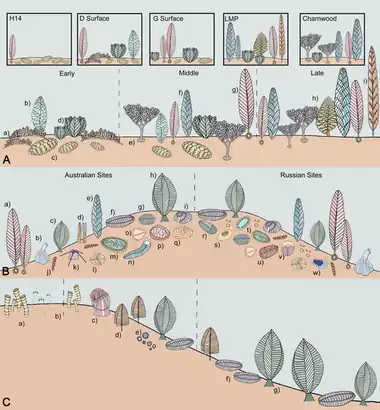
(A) مجموعهٔ آوالون: مراحل مختلف شکلگیری و دگرگونی تدریجی جوامع زیستی را نشان میدهد.
(B) مجموعهٔ دریای سفید: نشان میدهد که برخی گونهها پراکندگی گسترده داشتند، در حالی که برخی دیگر تنها در مناطق خاصی یافت میشدند.
(C) مجموعهٔ ناما: نشان میدهد که جانداران صدفدار (کامبرین) و جانداران نرمبدن (ادیاکاران)، بسته به عمق آب، در محیطهای متفاوتی زندگی میکردند.
مجموعههای ادیاکاران پسین | ||||||||||||
−۵۷۵ — – −۵۷۰ — – −۵۶۵ — – −۵۶۰ — – −۵۵۵ — – −۵۵۰ — – −۵۴۵ — – −۵۴۰ — – |
| |||||||||||
| ||||||||||||
مقیاس چینهشناسی بر اساس زیربخشهای ICS و مجموعههای زیستی ادیاکاران محور عمودی: میلیون سال پیش | ||||||||||||
درشتفسیلهای[ص] اواخر دورهٔ ادیاکاران در سطح جهانی در دستکم ۵۲ سازند و در محیطهای رسوبی گوناگونی شناسایی شدهاند.[۱۸۵] هر سازند معمولاً در یکی از سه مجموعهٔ اصلی قرار میگیرد که تحت عنوان مجموعههای فسیلی شناخته میشوند و نام خود را از نواحی شناختهشدهای گرفتهاند که بهترین فسیلهای مربوط به آن دوره در آنجا یافت شدهاند.[۲۴] هر مجموعهٔ فسیلی با یک بازهٔ زمانی مشخص و با یک مجموعهٔ معینی از الگوهای بدنی شناخته میشود. در هر مجموعه، الگوهای بدنی تا پایانِ بازهٔ زمانیِ آن تغییر چندانی نمیکنند؛ مگر در طولِ یک دورهٔ آغازینِ تنوعیابی، یا در برخی موارد، پس از یک رویداد انقراضی.[۱۸۶]
مجموعهٔ آوالون
مجموعهٔ آوالون بر پایهٔ محوطهٔ فسیلیِ میستیکن پوینت در شبهجزیرهٔ آوالونِ کانادا تعریف شده است؛ این مکان قدیمیترین محوطهای است که بسیاری از فسیلهای دورهٔ ادیاکاران در آن یافت شدهاند.[۱۸۷] سنسنجیِ این مجموعه دقیقتر و امکانپذیرتر است، زیرا حاوی لایههای متعدد خاکسترِ ریزدانه است که منبع خوبی از زیرکونها برای استفاده در روش اورانیوم-سرب در تاریخگذاری پرتوسنجشی به شمار میروند. این لایههای خاکسترِ ریزدانه، همچنین جزئیات بسیار ظریفی را در خود حفظ کردهاند.[۱۸۸] اگرچه فازِ بومشناختیِ مجموعهٔ آوالون در حدود ۵۶۵ میلیون سال پیش به پایان رسید، اما بسیاری از گونههای تشکیلدهندهٔ آن (مانند چارنیا) منقرض نشدند و تا زمان انقراضشان در ابتدای دورهٔ کامبرین (حدود ۵۳۹ میلیون سال پیش)، در مکان های جغرافیایی دیگر به حیات خود ادامه دادند.[۱۸۶]
برپایهٔ یکی از تفسیرهای موجود، جانداران این مجموعه، رانجئومورفهای ساکنِ اعماق دریا مانند چارنیا با الگوی رشد فراکتالی بودهاند.[۱۸۹] آنها احتمالاً بهصورت درجا (بدون جابهجایی پس از مرگ) حفظ شدهاند، هرچند بین پژوهشگران دربارهٔ این موضوع اتفاق نظر وجود ندارد.[۱۸۹] همچنین این مجموعه تنوع فسیلیِ کمتری نسبت به مجموعههای دریای سفید و ناما دارد.[۱۵۵] یکی از ویژگیهای بارزِ مجموعهٔ آوالون این است که از نظر ساختارِ بومشناختی به جوامعِ جانوران معلقخوارِ[ض] دورهٔ کربنیفر شباهت دارد؛ از این رو برخی از پژوهشگران احتمال دادهاند که دستکم بخشی از جانداران این مجموعه، پالیدهخوار بوده باشند.[۱۸۹] علاوه بر این، فسیلهای این مجموعه عمدتاً در رسوباتی یافت شدهاند که در آبهایی عمیقتر از ناحیهٔ نورگیر نهشته شدهاند؛ بنابراین، این جانداران احتمالاً وابسته به فتوسنتز نبودهاند.[۱۹۱]
مجموعهٔ دریای سفید
مجموعهٔ دریای سفید یا مجموعهٔ ادیاکارا بر اساس دریای سفید در روسیه یا تپههای ادیاکارا در استرالیا نامگذاری شده است و نسبت به مجموعههای آوالون و ناما تنوع فسیلی بسیار بیشتری دارد.[۱۸۵] بیشتر فسیلهای این مجموعه بهصورت «قالب بدن جاندار» (مثل جای مهر) روی بسترهای میکروبی حفظ شدهاند،[۱۹۲] اما تعداد کمی از آنها درون واحدهای ماسهای محفوظ ماندهاند.[۱۹۳][۱۸۶]
در استرالیا، این سنگوارهها معمولاً در خاکهای فسیلیِ قرمزِ گچدار و آهکی یافت میشوند که بر روی نهشتههای بادرفتی و نهشتههای سیلابی، در یک دیرینهاقلیمِ (آبوهوای باستانی) خشک و معتدلِ خنک تشکیل شدهاند.[ط][۱۲۵] از اوایل دههٔ ۲۰۰۰، حدود ۴۰ سطح فسیلی که جاندارانِ مجموعهٔ دریای سفید را در خود حفظ کردهاند، از بخشِ ادیاکارا در کوارتزیت راونسلی[وا ۴۳] واقع در تپههای ادیاکارا کاوش شدهاند.[۱۹۴] این منطقه در درون پارک ملی نیلپنا ادیاکارا، در غرب رشتهکوه فلیندرز در استرالیای جنوبی قرار دارد. بستر فسیلیِ 1T-F در این مجموعه، دارای بالاترین میزان تنوع فسیلی از انواع مختلف جانداران دورهٔ ادیاکاران است که تاکنون یافت شده است. این بستر همچنین نشاندهندهٔ پیچیدگی چشمگیر بومشناختی است و شامل بیش از ۴۰۰ فسیل از ۱۶ سردهٔ مختلف است.[۱۹۵]
مجموعهٔ ناما
بهترین نمونههای مجموعهٔ ناما در نامیبیا یافت میشوند.[۲۴] ویژگی بارز این مجموعه، دگرگونی زیستیِ[ظ] قابل توجه آن است؛ بهطوریکه در طول این دوره، نرخ انقراض از نرخ پیدایشِ جاندارانِ جدید پیشی گرفته است.[۱۸۵] حفظشدگیِ سهبعدیِ فسیلها در این مجموعه بسیار رایج است و جانداران در بسترهای ماسهایِ دارای لایهبندی درونی[وا ۴۴] محفوظ ماندهاند.[۶۵] دیما گراژدانکین[وا ۴۵] معتقد است که این فسیلها متعلق به جانداران نقبزن[ع] بودهاند،[۶۵] در حالی که گای ناربون[وا ۴۶] بر این باور است که آنها جاندارانِ سطحزی[غ] بودهاند.[۲۴] این بسترها در میان واحدهایی متشکل از لایههای متناوبِ ماسهسنگ، لایسنگ و شیل قرار گرفتهاند و فسیلها معمولاً در جاهایی که بسترهای میکروبی حضور دارند، یافت میشوند. این محیط بهعنوان آبتلی تشکیلشده در دهانهٔ شاخابههای یک دلتای رودخانهای تفسیر میشود.[ف][۱۹۳]
در ماسهسنگهای این مجموعه، وندوبیونتهای لحافیشکل، مانند ارنیتا، پتریدینیوم و رانجئا یافت میشوند؛ در حالی که در سنگهای دولومیتِ دریاییِ آن، فسیلهای کرمیشکلی مانند کلودینا و ناماکالاتوس پیدا میشوند که به مجموعهای موسوم به «دنیای کرمهای ادیاکاران»[ق] تعلق دارند. این دو مجموعهٔ فسیلی کاملاً با هم تفاوت دارند.[۱۹۹]
اهمیت این مجموعهها
از آنجا که این فسیلها بهطورِ جهانی پراکندهاند و در همهٔ قارهها بهجز جنوبگان توصیف شدهاند، بهنظر نمیرسد که مرزهایِ جغرافیایی عاملِ تعیینکنندهای بوده باشند؛[۲۰۰] همان فسیلها در حوضههای رسوبیِ جدا از هم و در تمام دیرینهعرضهای جغرافیایی[ک] هم یافت میشوند.[۱۹۳] بررسی یکی از بسترهای فسیلی دریای سفید، که در آن لایههای رسوبی به صورت یک چرخه چندین بار از بستر فلاتقارهٔ دریا به ناحیهٔ جزر و مدیِ آن و سپس به محیط پایرودیِ آن و بالعکس حرکت میکردهاند، نشان داد که هر یک از این محیطها با مجموعهٔ خاصی از جانداران دورهٔ ادیاکاران در ارتباط بودهاند.[۱۹۳] با این حال، هرچند تا حدی میتوان بین جاندارانِ سازگارشده با محیطهای مختلف تمایز قائل شد، اما تفاوتِ اصلیِ این سه مجموعه بیشتر به بازهٔ زمانیِ آنها مربوط میشود تا به نوع محیط زیست باستانیِ[وا ۴۷] جاندارانی که در آن زندگی میکردهاند. به همین دلیل، این سه مجموعه اغلب بر پایهٔ مرزهای زمانی از یکدیگر تفکیک میشوند، نه بر پایهٔ تفاوتهای محیطی.[۲۰۲]
از آنجا که زیواگان ادیاکاران نمایانگر مرحلهای آغازین از تاریخِ حیاتِ چندسلولی هستند، طبیعی است که همهٔ شیوههای ممکن زندگی هنوز پدید نیامده بودند. برآورد شده است که از میان ۹۲ شیوهٔ زندگیِ بالقوه، که از ترکیب شیوهٔ تغذیه، لایهبندی بومشناختی[گ] و توانایی جابهجایی به دست میآیند، تا پایان دورهٔ ادیاکاران تنها حدود دوازده شیوهٔ زندگی وجود داشته است. از این میان، تنها چهار شیوهٔ زندگی در مجموعهٔ آوالون دیده میشود.[۲۰۴]
جستارهای وابسته
یادداشتها
- ↑ این مورد به کشف نخستین سنگوارههای «ماکروسکوپی» (بزرگ و قابل رؤیت با چشم غیرمسلح) در کوههای مکنزی در شمال غربی کانادا اشاره دارد که عمدتاً ساختارهای ساده و دیسکمانندی دارند. قدمت این فسیلها به حدود ۶۱۰ میلیون سال پیش میرسد؛ یعنی دهها میلیون سال پیش از شکوفاییِ بزرگِ حیات در «انفجار آوالون» و «انفجار کامبرین». این سنگوارهها نمایانگر یکی از نخستین گامهای فرگشتی برای تشکیل جاندارانِ بزرگتر و پیچیدهتر در تاریخ زمین هستند.[۱]
- ↑ «در آوریل ۱۹۵۷، من به همراه دو دوستم، ریچارد آلن و ریچارد بلچفورد ("بلچ") که همکلاسیهایم در مدرسهٔ گرامر ویگستون در لستر بودند، برای صخرهنوردی به جنگل چارنوود رفتیم. من از قبل به زمینشناسی علاقه داشتم و میدانستم که صخرههای چارنوود مربوط به دوران پرکامبرین هستند، اگرچه چیزی دربارهٔ فسیلهای استرالیایی نشنیده بودم. ریچارد آلن و من همعقیدهایم که این بلچ بود که توجه مرا به این فسیلِ برگمانند که اکنون در موزهٔ شهر لستر به نمایش گذاشته شده، جلب کرد. من با مالش مداد روی کاغذ از آن یک کپی برداشتم و به پدرم نشان دادم؛ پدرم کشیش کلیسای یونیتارین در ایستبوند استریت بود و بهصورت پارهوقت در کالج دانشگاهی (که بعدها دانشگاه لستر شد) تدریس میکرد و به همین واسطه ترِوُر فورد را میشناخت. ما ترور را برای بازدید از محل فسیل بردیم و او را متقاعد کردیم که این یک فسیلِ واقعی است. انتشار مقالهٔ این کشف توسط او در مجلهٔ انجمن زمینشناسی یورکشایر، سردهٔ چارنیا را در علم ثبت کرد و توجه جهانیان را برانگیخت. … من توانستم این کشف را به لطف تشویقهای پدرم و روحیهٔ پرسشگریای که معلمان علومم در من پرورش داده بودند، گزارش کنم. تینا نگوس پیش از من این برگشاخه را دیده بود، اما هیچکس حرف او را جدی نگرفت.»[۶]
- ↑ همهٔ زیاگان (جانوران)، گیاگان (گیاهان) و دیگر گونههای حیات از جمله قارچها و ریزاندامگان (میکروارگانیسمها) در یک منطقه یا دورهٔ زمانیِ مشخص، تحت عنوان «زیواگانِ» (Biota) آن دورهٔ زمانی یا آن منطقهٔ خاص شناخته میشوند.[۲۱]
- ↑ بافتهای «پوستفیلی» (Elephant skin texture) در واقع بقایای بدنِ خودِ میکروبها نیستند، بلکه چینخوردگیهایی هستند که از ترکیبشدنِ مواد چسبناکِ میکروبی با رسوباتِ بستر دریا به وجود آمدهاند و درون سنگها حفظ شدهاند. به این پدیدهها در زمینشناسی، «ساختارهای رسوبیِ القاشده توسط میکروب» (MISS) گفته میشود.[۲۵]
- ↑ تقارن لغزشی (Glide reflection) پدیدهای است که در آن، بخشهای آناتومیکِ سمت چپ و راستِ بدن جاندار، دقیقاً مانند آینه روبهروی یکدیگر قرار ندارند (برخلاف تقارن دوجانبه در حشرات یا انسان)، بلکه بهصورت متناوب و با کمی جابهجایی — شبیه به الگوی جای پای انسان هنگام راه رفتن یا دندانههای یک زیپ — در کنار محور مرکزی قرار میگیرند. میخائیل فدونکین (Mikhail Aleksandrovich Fedonkin)، دیرینشناس روس، نشان داد که این بخشهای متناوب (که ایزومر نامیده میشوند) با بندهای واقعی (Somites) در کرمهای حلقوی و بندپایانِ امروزی کاملاً متفاوتاند.[۴۴]
- ↑ آرایهٔ زبالهدان (Wastebasket taxon) یا آرایهٔ فرمی (Form taxon)، در آرایهشناسی به گروهی گفته میشود که با هدفِ ردهبندی جاندارانی ایجاد شده که در جای دیگری از درخت حیات جا نمیگیرند. اعضای این گروه صرفاً بر اساس شباهتهای ظاهریِ سطحی یا فقدان صفات متمایز در کنار هم قرار میگیرند. در مورد فسیلهای ادیاکاران (مانند رنجئومورفها)، چون دیرینشناسان نتوانستهاند دربارهٔ روابط خویشاوندی و قطعیِ آنها توافق کنند، معمولاً این جانداران را بر اساس شکل کلیشان در چنین «آرایههای فرمی» طبقهبندی میکنند.[۵۰][۵۱]
- ↑ «مرحلهٔ استراحت» (یا میانآسایی/Diapause) به دورهٔ توقفی در رشد و نموِ رویان گفته میشود که در آن، جاندار برای محافظت از خود در یک پوستهٔ محافظ و ضخیم (کیست) فرومیرود. با توجه به دیوارهٔ ضخیم و خاردارِ کشفشده در اطرافِ این ریزفسیلها، برخی از دانشمندان معتقدند که این سازوکارِ دفاعی در نخستین جانداران برای بقا در محیطِ خشن و متغیرِ اقیانوسها — بهویژه بلافاصله پس از یخبندانهای سراسریِ زمینگوی برفی (Snowball Earth) — فرگشت یافته بود تا هر زمان که شرایط محیطی مساعد شد، این جانداران روندِ رشد خود را از سر بگیرند.[۳۷]
- ↑ «گروه ساقه» یا آرایهٔ ساقهای (Stem-group) در زیستشناسیِ فرگشتی، به خویشاوندانِ اولیه و منقرضشدهٔ یک شاخه از جانداران گفته میشود که در مسیرِ فرگشتی به سمت گونههای امروزی قرار داشتند، اما پیش از پیدایشِ آخرین نیای مشترکِ اعضای زندهٔ آن گروه، از شاخهٔ اصلی منشعب شدهاند (بنابراین خارج از «گروه تاجی» قرار میگیرند).[۶۹][۷۰]
- ↑ اسموتروفی (Osmotrophy) یا تغذیهٔ تراوشی، روشی است که در آن جاندار بهجای داشتن دهان و بلعیدن غذا، مواد مغذیِ درون آب را مستقیماً از طریق سطح بدن خود جذب میکند. از آنجا که بدن جانداران ادیاکاران (مانند رنجئومورفها) شاخهشاخههای فراوانی (ساختار فراکتالی) داشت، سطح تماسِ بدنِ آنها با آب بسیار وسیع بود. این گستردگیِ سطح باعث میشد که تغذیهٔ تراوشی برایشان بهترین و ایدهآلترین روش باشد.[۷۴]
- ↑ دوسوئیان (Bilaterians) جاندارانی هستند که بدنشان دارای تقارن دوسویه است یعنی دو سمت چپ و راستِ بدنشان قرینه است اما دارای سر و ته غیرقرینه هستند یعنی یک سر و یک دم مشخص دارند. پیدایش این ویژگیِ آناتومیک (دوسویگی)، یک گذار فرگشتیِ بزرگ بوده که امکان فرگشتِ بدنهای پیچیدهتر را فراهم کرده است.[۷۹]
- ↑ منظور از «طبقهبندی دورهای آرایهشناختی» (taxonomic period classification) این است که جاندارانِ این گروه، برخلاف بیشترِ دستهبندیهای زیستشناسی، بر اساس «خویشاوندی فرگشتی و تبار مشترک» در کنار هم قرار نگرفتهاند. در اصل، نامِ زیواگان ادیاکاران را مارتین گلاسنر (زمینشناس، ۱۹۵۸) برای مجموعهای از سنگوارههای نرمبدن کشفشده انتخاب کرد که در یک بازهٔ زمانیِ مشترک (دورهٔ ادیاکاران) میزیستند و به شکلی مشابه فسیل شده بودند؛ بنابراین، قرار گرفتن آنها در گروهِ «زیواگان ادیاکاران»، لزوماً به این معنا نیست که از نظر بیولوژیکی با یکدیگر خویشاوند بودهاند.[۲۲]
- ↑ «گروه تاج» (Crown group) اصطلاحی در تبارشناسی (فیلوژنی) است که به مجموعهای از جانداران شامل «آخرین نیای مشترکِ تمام اعضای زندهٔ یک گروه» و «تمامی نوادگانِ آن نیا» (چه زنده و چه منقرضشده) اطلاق میشود. دیرینشناسان از این مفهوم برای تشخیصِ جایگاه دقیقِ فسیلهای اولیه نسبت به شاخههای جانوریِ امروزی استفاده میکنند.[۹۹][۷۰][۱۰۵]
- ↑ نام وندوزوآ (Vendozoa) از اصطلاح زمینشناسیِ قدیمی «وندین» (Vendian) گرفته شده است.[۱۴]
- ↑ خاک رس آهندار (Ferruginous clay) نوعی خاک رس است که درصد بالایی از ترکیبات اکسید آهن دارد.[۱۲۶]
- ↑ در زیستشناسی فرگشتی، «ناهمانندی» (Disparity) با «تنوع گونهای» (Diversity) تفاوت دارد. ناهمانندی به میزان تفاوت در الگوی کلی بدن جانداران اشاره میکند؛ برای مثال، تفاوت میان طرح بدن یک بندپا و یک نرمتن نشاندهندهٔ ناهمانندی زیاد است. در مقابل، تنوع گونهای فقط تعداد گونهها را نشان میدهد، حتی اگر همهٔ آنها از یک طرح بدنی مشابه (مانند چندین گونهٔ متفاوت عنکبوت) پیروی کنند. بنابراین، ممکن است یک زیستبوم گونههای فراوانی داشته باشد، اما همهٔ آنها بر پایهٔ چند طرح بدنی محدود شکل گرفته باشند.[۱۵۴]
- ↑ «کانسروات-لاگرشتاتن» (Konservat-Lagerstätten) اصطلاحی در دیرینشناسی برای توصیف رسوبات و بسترهای فسیلیِ بینظیری است که در آنها، بقایای جانداران (حتی بافتهای نرمِ بدن که معمولاً بهسرعت میپوسند و از بین میروند) با جزئیاتِ بسیار بالا حفظ شدهاند.[۱۶۶]
- ↑ درشتاندامگان (ماکروارگانیسمها) جاندارانی هستند که به اندازهٔ کافی بزرگاند و با چشم غیرمسلح (بدون نیاز به میکروسکوپ) قابل مشاهده هستند؛ در برابر ریزاندامگان (میکروارگانیسمها) که دیدن آنها نیازمند میکروسکوپ است.[۱۸۴]
- ↑ جانوران معلقخوار (Suspension feeders) به دستهای از آبزیان (عمدتاً کفزی و بیحرکت) گفته میشود که ذرات آلی، پلانکتونها و ریزاندامگانِ (میکروارگانیسمهای) شناور در جریان آب را از طریق فیلترکردنِ آب به دام انداخته و از آنها تغذیه میکنند. از نمونههای امروزیِ این جانوران میتوان به اسفنجهای دریایی، مرجانها، بازوپایان و شقایقهای دریایی اشاره کرد. در اعماق اقیانوسها —جایی که نور خورشید برای فتوسنتز نفوذ نمیکند— تشکیل «جوامع معلقخوار»، راهکارِ اصلی و اساسِ بقای بومسازگانهای (اکوسیستمهای) دریایی است.[۱۹۰]
- ↑ به بیان ساده، این فسیلها در محیطی شبیه به بیابانهای سرد و خشکِ امروزی حفظ شدهاند؛ جایی که بادها تپههای شنی میساختند، سیلابهای ناگهانی گلولای با خود میآوردند و تبخیرِ بالای آب باعث رسوبِ گچ و آهک در خاکِ قرمزرنگِ منطقه میشد.[۱۲۵]
- ↑ دگرگونی زیستی (Biotic turnover) در بومشناسی و دیرینشناسی به میزانِ جایگزینیِ گونههای قدیمی با گونههای جدید در یک اکوسیستم گفته میشود. این پدیده معمولاً در اثر انقراض گونههای پیشین و پیدایش یا مهاجرتِ گونههای جدید رخ میدهد.[۱۹۶]
- ↑ جانداران نقبزن (Burrowing organisms) یا درونرسوبزیان (Infauna) به جاندارانی گفته میشود که درون رسوبات بستر دریا زندگی میکنند و معمولاً با کندن نقب یا دفنشدن در رسوب، خود را در برابر شکارگران و شرایط نامساعد محیطی محافظت میکنند. از نمونههای آنها میتوان به بسیاری از پرتاران (Polychaeta) و دوکفهایهای دفنشونده اشاره کرد.[۱۹۷][۱۹۰]
- ↑ جانداران سطحزی (Surface dwellers) یا برونرسوبزیان (Epifauna) بر سطح بستر دریا یا بر روی سطح اجسام سخت آن (مانند سنگها و صدفهای خالی) زندگی میکنند، خواه به آن سطح چسبیده باشند و خواه آزادانه بر رویش حرکت کنند. صدفهای چسبنده، ستارههای دریایی و بسیاری از مرجانها در زمره این جانداران قرار میگیرند.[۱۹۷][۱۹۰]
- ↑ به زبان سادهتر منظور این است که این منطقه در گذشته یک قسمتِ کمعمق یا تپهٔ ماسهایِ زیر آب بوده است؛ تپهای که دقیقاً در محلِ ورودِ شاخههای مختلفِ یک رودخانه به دریا (منطقهٔ دلتا) شکل گرفته بود.[۱۹۳]
- ↑ اصطلاحِ «دنیای کِرمها» (Wormworld) نخستینبار توسط شیفباوئر (James D. Schiffbauer) و همکاران در سال ۲۰۱۶ برای توصیفِ مرحلهای از گذارِ بومشناختی در اواخرِ دورهٔ ادیاکاران پیشنهاد شد؛ مرحلهای که در آن جانورانِ کِرممانندِ حفار (بیمهرگانِ لولهایشکل) بهتدریج جایگزینِ زیواگان ادیاکاران شدند و با نقب زدن و دگرگونکردن بسترهای دریایی، زمینه را برای انفجار کامبرین فراهم کردند.[۱۹۸]
- ↑ دیرینهعرض جغرافیایی (Palaeolatitude) به موقعیت و عرض جغرافیاییِ یک منطقه در دورانهای گذشتهٔ زمینشناسی گفته میشود؛ یعنی مکانی که یک خشکی، پیش از جابهجایی بر اثر رانش قارهای در آن قرار داشته است. دانشمندان این موقعیتِ باستانی را با کمک دادههای دیرینهمغناطیسشناسی محاسبه میکنند: از آنجا که کانیهای مغناطیسی در زمانِ تشکیلِ سنگ، زاویهٔ میدان مغناطیسیِ زمین را در خود ثبت میکنند، با اندازهگیریِ این زاویه میتوان فهمید که آن سنگ در ابتدا در چه عرض جغرافیاییای شکل گرفته است.[۲۰۱]
- ↑ لایهبندی بومشناختی (Tiering) به جایگاه عمودی جاندار نسبت به بستر دریا اشاره دارد؛ برای مثال، جاندار ممکن است روی بستر زندگی کند، درون رسوبات مدفون باشد یا بهوسیلهٔ ساقه در بالای بستر قرار گیرد.[۲۰۳]
واژگان
- ↑ Aspidella terranovica
- ↑ Alexander Murray
- ↑ Elkanah Billings
- ↑ Georg Gürich
- ↑ Tina Negus
- ↑ Roger Mason
- ↑ Shiva Balak Misra
- ↑ Édiacarien
- ↑ Sinian
- ↑ Vendian
- ↑ Acritarch
- ↑ Cyclomedusa radiata
- ↑ Archaeonassa
- ↑ Epibaion waggoneris
- ↑ Yorgia waggoneri
- ↑ Portfjeld Formation
- ↑ Zongjun Yin
- ↑ Filaments
- ↑ Sulfur-Oxidizing Bacteria
- ↑ Terrestrialization
- ↑ Vendoglossa tuberculata
- ↑ Quilted organisms
- ↑ Adolf Seilacher
- ↑ Swartpuntia germsi
- ↑ Dissolved organic carbon
- ↑ Ikaria wariootia
- ↑ quilted construction
- ↑ osmotrophy
- ↑ Mark McMenamin
- ↑ Garden of Ediacara
- ↑ Jonathan B Antcliffe
- ↑ Greg Retallack
- ↑ Matthew Nelsen
- ↑ Funisia dorothea
- ↑ Frances S. Dunn
- ↑ Nimbia
- ↑ Twitya formation
- ↑ Donald Eugene Canfield
- ↑ Disparity
- ↑ Taphonomic Bias
- ↑ Orsten-type deposits
- ↑ Stephen Jay Gould
- ↑ Rawnsley Quartzite
- ↑ Internal bedding
- ↑ Dima Grazhdankin
- ↑ Guy Narbonne
- ↑ paleoenvironment
پانویس
- 1 2 3 Hofmann, H. J.; Narbonne, G. M.; Aitken, J. D. (1990). "Ediacaran remains from intertillite beds in northwestern Canada". Geology (in English). 18 (12): 1199–1202. Bibcode:1990Geo....18.1199H. doi:10.1130/0091-7613(1990)018<1199:ERFIBI>2.3.CO;2.
- 1 2 Waggoner, Ben (1998). "Interpreting the earliest Metazoan fossils: What can we learn?". Integrative and Comparative Biology. 38 (6): 975–982. doi:10.1093/icb/38.6.975. ISSN 1540-7063.
- 1 2 3 4 Gehling, James G.; Narbonne, Guy M.; Anderson, Michael M. (2000). "The First Named Ediacaran Body Fossil, Aspidella terranovica". Palaeontology. 43 (3): 427–432. Bibcode:2000Palgy..43..427G. doi:10.1111/j.0031-0239.2000.00134.x.
- ↑ Gürich, G. (1933). "Die Kuibis-Fossilien der Nama-Formation von Südwestafrika". Paläontologische Zeitschrift (in German). 15 (2–3): 137–155. Bibcode:1933PalZ...15..137G. doi:10.1007/bf03041648. S2CID 130968715.
- 1 2 Sprigg, R. C. (1949). "Early Cambrian "jellyfishes" of Ediacara, South Australia and Mount John, Kimberly District, Western Australia". Transactions of the Royal Society of South Australia. 73: 72–99. doi:10.5281/zenodo.15930859.
- 1 2 Mason, Roger (2007). "The discovery of Charnia masoni" (PDF). University of Leicester. Archived from the original (PDF) on 8 March 2021. Retrieved 5 April 2016.
- ↑ "Leicester's fossil celebrity: Charnia and the evolution of early life" (PDF). Archived from the original (PDF) on 6 October 2022. Retrieved 2007-06-22.
- ↑ Ford, Trevor. "The discovery of Charnia". Archived from the original on 2011-07-23.
- ↑ Sprigg, R. C. (1991). "Martin F Glaessner: Palaeontologist extraordinaire". Memoirs of the Geological Society of India. 20: 13–20. ISSN 0435-4001.
- ↑ Glaessner, M. F. (1959). "The oldest fossil faunas of South Australia". International Journal of Earth Sciences. 47 (2): 522–531. Bibcode:1959GeoRu..47..522G. doi:10.1007/BF01800671. S2CID 140615593.
- ↑ Glaessner, Martin F. (1961). "Precambrian animals". Scientific American. Vol. 204, no. 3. pp. 72–78. Bibcode:1961SciAm.204c..72G. doi:10.1038/scientificamerican0361-72.
- 1 2 Misra, S.B. (1969). "Late Precambrian(?) fossils from southeastern Newfoundland". Geological Society of America Bulletin (in English). 80 (11): 2133–2140. doi:10.1130/0016-7606(1969)80[2133:LPFFSN]2.0.CO;2.
- 1 2 "Mistaken Point fossil assemblage". The Miller Museum of Geology. Queen's University.
{{cite web}}: نگهداری یادکرد:خدمت بایگانی منسوخ (رده) - 1 2 Fedonkin, Mikhail A.; Gehling, James G.; Grey, Kathleen; Narbonne, Guy M.; Vickers-Rich, Patricia (2007). The Rise of Animals: Evolution and Diversification of the Kingdom Animalia (in English). Johns Hopkins University Press. ISBN 978-0-8018-8679-9.(P. 15 for the first and p. 55 for the second.)
- ↑ McMenamin, M.A.S. (14 May 1996). "Ediacaran biota from Sonora, Mexico". Proceedings of the National Academy of Sciences of the United States of America. 93 (10): 4990–4993. Bibcode:1996PNAS...93.4990M. doi:10.1073/pnas.93.10.4990. PMC 39393. PMID 11607679.
- ↑ McMenamin, M.A.S. (2018). Deep Time Analysis: A Coherent View of the History of Life. Cham, Switzerland: Springer Geology. ISBN 978-3-319-74255-7.
- ↑ Narbonne, Guy (2008). The Gaskiers glaciation as a significant divide in Ediacaran history and stratigraphy. 33rd International Geological Congress. Abstracts. Oslo. Archived from the original on 13 October 2013.
- ↑ Termier, H.; Termier, G. (1960). "L'Édiacarien, premier étage paléontologique". Revue générale des sciences pures et appliquées (in French). 67 (3–4): 175–192. ISSN 0370-5196.
- ↑ Stratigraphic chart 2022 (PDF) (Report). International Stratigraphic Commission. February 2022. Archived (PDF) from the original on 2 April 2022. Retrieved 22 April 2022.
- 1 2 Knoll, Andy H.; Walter, M.; Narbonne, G.; Christie-Blick, N. (2006). "The Ediacaran period: A new addition to the geologic time scale" (PDF). Lethaia. 39 (1): 13–30. Bibcode:2006Letha..39...13K. doi:10.1080/00241160500409223. Archived from the original (PDF) on 2007-02-21.
- ↑ «زیواگان» [زیستشناسی] همارزِ «biota»؛ منبع: گروه واژهگزینی. دفتر چهارم. فرهنگ واژههای مصوب فرهنگستان. تهران: انتشارات فرهنگستان زبان و ادب فارسی. شابک ۹۶۴-۷۵۳۱-۵۹-۱ (ذیل سرواژهٔ زیواگان)
{{cite book}}: نگهداری یادکرد:پینوشت (رده) - 1 2 3 4 MacGabhann, Breandán Anraoi (January 2014). "There is no such thing as the 'Ediacara Biota'". Geoscience Frontiers. 5 (1): 53–62. Bibcode:2014GeoFr...5...53M. doi:10.1016/j.gsf.2013.08.001. hdl:20.500.11820/23ba9403-9b3f-484e-8a0f-21587c6baf67. S2CID 56111824. Archived from the original on 13 March 2023. Retrieved 12 March 2023.
- ↑ Slagter, Silvina; Hao, Weiduo; Planavsky, Noah J.; Konhauser, Kurt O.; Tarhan, Lidya G. (2022). "Biofilms as agents of Ediacara-style fossilization". Scientific Reports (in English). 12. doi:10.1038/s41598-022-12473-1. PMC 9127100. PMID 35606399.
- 1 2 3 4 5 6 Narbonne, Guy M. (2005). "The Ediacara biota: Neoproterozoic origin of animals and their ecosystems" (PDF). Annual Review of Earth and Planetary Sciences. 33: 421–442. Bibcode:2005AREPS..33..421N. doi:10.1146/annurev.earth.33.092203.122519. Archived from the original (PDF) on 2007-02-21. Retrieved 2009-01-03 – via Queen's University, Canada.
- 1 2 Noffke, Nora (2010). Geobiology: Microbial Mats in Sandy Deposits from the Archean Era to Today. Berlin: Springer. p. 77. ISBN 978-3-642-12771-7.
- 1 2 Runnegar, B.N.; Fedonkin, M.A. (1992). "Proterozoic metazoan body fossils". In Schopf, W.J.; Klein; C. (eds.). The Proterozoic Biosphere. Cambridge University Press. pp. 369–388. ISBN 978-0-521-36615-1. OCLC 23583672.
- ↑ Seilacher, Adolf (1999). "Biomat-related lifestyles in the Precambrian". Palaios. 14 (1): 86–93. doi:10.2307/3515363. JSTOR 3515363.
- 1 2 3 4 Gehling, J. G. (1999-02-01). "Microbial mats in terminal Proterozoic siliciclastics; Ediacaran death masks". PALAIOS. 14 (1): 40–57. Bibcode:1999Palai..14...40G. doi:10.2307/3515360. JSTOR 3515360. Archived from the original on 28 December 2023. Retrieved 8 June 2019.
- ↑ Burzin, M.B.; Debrenne, F.; Zhuravlev, A.Y. (2001). "Evolution of shallow-water level-bottom communities". In Zhuravlev, A. Y.; Riding, R. (eds.). The Ecology of the Cambrian Radiation. New York, NY: Columbia University Press. pp. 216–237. ISBN 978-0-231-50516-1. OCLC 51852000. Archived from the original on 18 November 2007. Retrieved 26 August 2017.
- 1 2 3 Bottjer, D. J.; Hagadorn, J. W.; Dornbos, S. Q. (2000). "The Cambrian substrate revolution". GSA Today (in English). 10 (9): 1–7.
- ↑ Burns, B.P.; Goh, F.; Allen, M.; Neilan, B.A. (2004). "Microbial diversity of extant stromatolites in the hypersaline marine environment of Shark Bay, Australia". Environmental Microbiology. 6 (10): 1096–1101. Bibcode:2004EnvMi...6.1096B. doi:10.1111/j.1462-2920.2004.00651.x. PMID 15344935.
- 1 2 3 4 5 Narbonne, Guy M. (1998). "The Ediacara biota: A terminal Neoproterozoic experiment in the evolution of life" (PDF). GSA Today. Vol. 8, no. 2. pp. 1–6. ISSN 1052-5173.
- ↑ Tarhan, Lidya G.; Hood, Ashleigh v.S.; Droser, Mary L.; Gehling, James G.; Briggs, Derek E.G. (2016). "Exceptional preservation of soft-bodied Ediacara Biota promoted by silica-rich oceans". Geology. 44 (11): 951–954. Bibcode:2016Geo....44..951T. doi:10.1130/G38542.1.
- ↑ Bowring, S. A.; Martin, M. W. (2001). "Calibration of the Fossil Record". In Briggs, D. E. G.; Crowther, P. R. (eds.). Palæobiology II: A synthesis. Blackwell Publishing. pp. 21–25. ISBN 978-0-632-05149-6. OCLC 51481754. Archived from the original on 2007-09-29. Retrieved 2007-06-21.
- ↑ Bobrovskiy, Ilya; Krasnova, Anna; Ivantsov, Andrey; Luzhnaya (Serezhnikova), Ekaterina; Brocks, Jochen J. (2019). "Simple sediment rheology explains the Ediacara biota preservation". Nature Ecology & Evolution. 3 (4): 582–589. doi:10.1038/s41559-019-0820-7. PMID 30911145.
- 1 2 Liu, Alexander G. (2016). "Framboidal pyrite shroud confirms the 'death mask' model for moldic preservation of Ediacaran soft-bodied organisms" (PDF). PALAIOS. 31 (5): 259–274. Bibcode:2016Palai..31..259L. doi:10.2110/palo.2015.095. hdl:1983/535d288a-68ee-4481-8553-6b7d2e45dacb. S2CID 132601490. Archived (PDF) from the original on 30 April 2019. Retrieved 8 August 2018.
- 1 2 3 Leiming, Y.; Zhu, M.; Knoll, A.; et al. (2007-04-05). "Doushantuo embryos preserved inside diapause egg cysts". Nature. 446 (7136): 661–663. Bibcode:2007Natur.446..661Y. doi:10.1038/nature05682. PMID 17410174. S2CID 4423006.
- ↑ Antcliffe, J. B.; Hancy, A. D.; Brasier, M. D. (2022). "Following the logic behind biological interpretations of the Ediacaran biotas". Geological Magazine. 159 (7): 1093–1117. doi:10.1017/S0016756821000443.
- 1 2 3 Ford, T.D. (1958). "The Pre-cambrian fossils of Charnwood Forest". Proceedings of the Yorkshire Geological Society. 31 (3): 211–217. doi:10.1144/pygs.31.3.211.
- ↑ Glaessner, M. F.; Wade, M. (1966). "The late Precambrian fossils from Ediacara, South Australia" (PDF). Palaeontology (in English). 9 (4): 599–628. ISSN 0031-0239.
- ↑ Antcliffe, J. B.; Brasier, M. D. (2007). "Charnia and sea pens are poles apart". Journal of the Geological Society. 164 (1): 49–51. doi:10.1144/0016-76492006-080.
- 1 2 Antcliffe, J. B.; Brasier, M. D. (2008). "Charnia at 50: developmental models for Ediacaran fronds". Palaeontology (in English). 51 (1): 11–26. doi:10.1111/j.1475-4983.2007.00738.x.
- 1 2 3 4 Seilacher, Adolf (1992). "Vendobionta and Psammocorallia: lost constructions of Precambrian evolution". Journal of the Geological Society, London. 149 (4): 607–613. Bibcode:1992JGSoc.149..607S. doi:10.1144/gsjgs.149.4.0607. S2CID 128681462.
- 1 2 3 Fedonkin, Mikhail A. (2003). "The origin of the Metazoa in the light of the Proterozoic fossil record". Paleontological Research. 7 (1): 9–41. doi:10.2517/prpsj.7.9.
- 1 2 3 Evans, Scott D.; Hughes, Ian V.; Gehling, James G.; Droser, Mary L. (2020-04-07). "Discovery of the oldest bilaterian from the Ediacaran of South Australia". Proceedings of the National Academy of Sciences. 117 (14): 7845–7850. Bibcode:2020PNAS..117.7845E. doi:10.1073/pnas.2001045117. ISSN 0027-8424. PMC 7149385. PMID 32205432.
- ↑ Darroch, S. A. F.; et al. (2021). "The trace fossil record of the Nama Group, Namibia: Exploring the terminal Ediacaran roots of the Cambrian explosion". Earth-Science Reviews. 212: 103435. doi:10.1016/j.earscirev.2020.103435.
{{cite journal}}: نگهداری یادکرد:شماره مقاله بهجای شماره صفحه (رده) - ↑ Droser, Mary L.; Jensen, Sören; Gehling, James G. (2002). "Trace fossils and substrates of the terminal Proterozoic–Cambrian transition: Implications for the record of early bilaterians and sediment mixing". Proceedings of the National Academy of Sciences. 99 (20): 12572–12576. doi:10.1073/pnas.202322499.
- 1 2 Ivantsov, Andrey Yu. (2011). "Feeding traces of Proarticulata—the Vendian Epibaion". Paleontological Journal (in English). 45 (3): 252–259. doi:10.1134/S0031030111030063. ISSN 0031-0301.
- ↑ Watson, Traci (28 October 2020). "These bizarre ancient species are rewriting animal evolution". Nature (news). 586 (7831): 662–665. Bibcode:2020Natur.586..662W. doi:10.1038/d41586-020-02985-z. PMID 33116283.
- ↑ Pérez-Pinedo, D.; McKean, C.; Taylor, R.; Nicholls, R.; McIlroy, D. (2021). "Charniodiscus and Arborea Are Separate Genera Within the Arboreomorpha: Using the Holotype of C. concentricus to Resolve a Taphonomic/Taxonomic Tangle". Frontiers in Earth Science. 9. doi:10.3389/feart.2021.785929.
{{cite journal}}: نگهداری یادکرد:doi رایگان بینشان (رده) - 1 2 Brasier, M. D.; Antcliffe, J. B.; Liu, A. G. (2012). "The architecture of Ediacaran fronds". Palaeontology. 55 (5): 1105–1124. doi:10.1111/j.1475-4983.2012.01164.x.
- ↑ Chen, J-Y; Bottjer, DJ; Oliveri, P; Dornbos, SQ; Gao, F; Ruffins, S; Chi, H; Li, CW; Davidson, EH (Jul 2004). "Small Bilaterian Fossils from 40 to 55 Million Years Before the Cambrian". Science. 305 (5681): 218–222. Bibcode:2004Sci...305..218C. doi:10.1126/science.1099213. PMID 15178752. S2CID 115443209.
- ↑ For example, "Fossil may be ancestor of most animals". NBC News. 2004-06-03. Archived from the original on 23 November 2019. Retrieved 2007-06-22., Leslie Mullen (2004-06-05). "Earliest Bilateral Fossil Discovered". Astrobiology Magazine. Archived from the original on 2011-06-28. Retrieved 2007-06-22.
- 1 2 Bengtson, S.; Budd, G. (2004). "Comment on "Small Bilaterian Fossils from 40 to 55 Million Years Before the Cambrian"". Science. 306 (5700): 1291a. doi:10.1126/science.1101338. PMID 15550654.
- ↑ Bailey, J. V.; Joye, S. B.; Kalanetra, K. M.; Flood, B. E.; Corsetti, F. A. (Jan 2007). "Evidence of giant sulphur bacteria in Neoproterozoic phosphorites". Nature. 445 (7124): 198–201. Bibcode:2007Natur.445..198B. doi:10.1038/nature05457. PMID 17183268. S2CID 4346066., summarised by Donoghue, P.C.J. (Jan 2007). "Embryonic identity crisis". Nature. 445 (7124): 155–156. Bibcode:2007Natur.445..155D. doi:10.1038/nature05520. PMID 17183264. S2CID 28908035.
- ↑ Xiao et al..'s response to Bailey et al..'s original paper:
Xiao, S.; Zhou, C.; Yuan, X. (Apr 2007). "Palaeontology: undressing and redressing Ediacaran embryos". Nature. 446 (7136): E9–E10. Bibcode:2007Natur.446....9X. doi:10.1038/nature05753. PMID 17410133. S2CID 4406666. And Bailey et al..'s reply: Bailey, J. V.; Joye, S. B.; Kalanetra, K. M.; Flood, B. E.; Corsetti, F. A. (2007). "Palaeontology: Undressing and redressing Ediacaran embryos (Reply)". Nature. 446 (7136): E10–E11. Bibcode:2007Natur.446...10B. doi:10.1038/nature05754. S2CID 25500052. - 1 2 Knoll, A. H.; Javaux, E. J.; Hewitt, D.; Cohen, P. (Jun 2006). "Eukaryotic organisms in Proterozoic oceans". Philosophical Transactions of the Royal Society B. 361 (1470): 1023–1038. doi:10.1098/rstb.2006.1843. PMC 1578724. PMID 16754612.
- ↑ Cunningham, J.A.; Thomas, C. -W.; Bengtson, S.; Marone, F.; Stampanoni, M.; Turner, F.R.; et al. (2012-05-07). "Experimental taphonomy of giant sulphur bacteria: implications for the interpretation of the embryo-like Ediacaran Doushantuo fossils". Proceedings of the Royal Society of London B: Biological Sciences. 279 (1734): 1857–1864. doi:10.1098/rspb.2011.2064. ISSN 0962-8452. PMC 3297454. PMID 22158954.
- ↑ Willman, Sebastian; Peel, John S.; Ineson, Jon R.; et al. (2020-11-06). "Ediacaran Doushantuo-type biota discovered in Laurentia". Communications Biology. 3 (1): 647. doi:10.1038/s42003-020-01381-7. ISSN 2399-3642. PMC 7648037. PMID 33159138.
- ↑ Newman, S.A.; Forgacs, G.; Müller, G.B. (2006). "Before programs: The physical origination of multicellular forms". Int. J. Dev. Biol. 50 (2–3): 289–299. doi:10.1387/ijdb.052049sn. PMID 16479496.
- 1 2 3 Yin, Zongjun; Vargas, Kelly; Cunningham, John; et al. (16 Dec 2019). "The Early Ediacaran Caveasphaera Foreshadows the Evolutionary Origin of Animal-like Embryology". Current Biology (in English). 29 (24): 4307–4314.e2. Bibcode:2019CBio...29E4307Y. doi:10.1016/j.cub.2019.10.057. hdl:1983/13fb76e4-5d57-4e39-b222-14f8a8fae303. PMID 31786065. S2CID 208332041.
- 1 2 3 4 McMenamin, Mark A. S. (1998). The Garden of Ediacara: Discovering the First Complex Life. Columbia University Press. ISBN 978-0-231-10559-0.
- 1 2 Grazhdankin, D. (2001). "Microbial origin of some of the Ediacaran fossils". GSA Annual Meeting Abstracts with Programs (in English). ISSN 0016-7592. (نسخهٔ نهایی و داوریشدهٔ این پژوهش در سال ۲۰۰۷ منتشر شد: Grazhdankin, D.; Gerdes, G. (2007). "Ediacaran microbial colonies". Lethaia (in English). 40 (3): 201–210. Bibcode:2007Letha..40..201G. doi:10.1111/j.1502-3931.2007.00025.x.)
- ↑ Jensen, S.; Gehling, J. G.; Droser, M. L.; Grant, S. W. F. (2002). "A scratch circle origin for the medusoid fossil Kullingia" (PDF). Lethaia. 35 (4): 291–299. Bibcode:2002Letha..35..291J. CiteSeerX 10.1.1.535.2625. doi:10.1111/j.1502-3931.2002.tb00089.x. Archived (PDF) from the original on 3 October 2011. Retrieved 8 December 2008.
- 1 2 3 (a) The only current description, far from universal acceptance, appears as: Grazhdankin, D.; Seilacher, A. (2002). "Underground Vendobionta from Namibia". Palaeontology. 45 (1): 57–78. Bibcode:2002Palgy..45...57G. doi:10.1111/1475-4983.00227.
- ↑ Liu, Alexander G.; Dunn, Frances S. (2020-04-06). "Filamentous Connections between Ediacaran Fronds". Current Biology (in English). 30 (7): 1322–1328.e3. Bibcode:2020CBio...30E1322L. doi:10.1016/j.cub.2020.01.052. ISSN 0960-9822. PMID 32142705.
- ↑ Becker-Kerber, Bruno; de Barros, Gabriel Eduardo Baréa; Paim, Paulo Sergio Gomes; Prado, Gustavo M. E. M.; da Rosa, Ana Lucia Zucatti; El Albani, Abderrazak; Laflamme, Marc (2021-01-13). "In situ filamentous communities from the Ediacaran (approx. 563 Ma) of Brazil". Proceedings of the Royal Society B: Biological Sciences. 288 (1942) 20202618. doi:10.1098/rspb.2020.2618. PMC 7892400. PMID 33402067.
- ↑ Gan, Tian; Luo, Taiyi; Pang, Ke; Zhou, Chuanming; Zhou, Guanghong; Wan, Bin; et al. (2021-01-28). "Cryptic terrestrial fungus-like fossils of the early Ediacaran Period". Nature Communications (in English). 12 (1): 641. Bibcode:2021NatCo..12..641G. doi:10.1038/s41467-021-20975-1. ISSN 2041-1723. PMC 7843733. PMID 33510166.
- ↑ "Crown Group - an overview". ScienceDirect Topics (in English). Retrieved 2026-07-21.
- 1 2 Budd, G. E. (2003). "The Cambrian Fossil Record and the Origin of the Phyla". Integrative and Comparative Biology (in English). 43 (1): 157–165. doi:10.1093/icb/43.1.157.
- ↑ McMenamin, M.A.S. (2009). Paleotorus: The Laws of Morphogenetic Evolution. Meanma Press. ISBN 978-1-893882-18-8.
- ↑ Narbonne, Guy M.; Saylor, Beverly Z.; Grotzinger, John P. (1997). "The Youngest Ediacaran Fossils from Southern Africa". Journal of Paleontology. 71 (6): 953–967. Bibcode:1997JPal...71..953N. doi:10.1017/s0022336000035940. JSTOR 1306595. PMID 11541433. S2CID 28211337.
- ↑ Xiao, S.; Laflamme, M. (January 2009). "On the eve of animal radiation: phylogeny, ecology and evolution of the Ediacara biota". Trends in Ecology and Evolution. 24 (1): 31–40. Bibcode:2009TEcoE..24...31X. doi:10.1016/j.tree.2008.07.015. PMID 18952316.
- 1 2 3 4 Laflamme, Marc; Xiao, Shuhai; Kowalewski, Michal (2009). "Osmotrophy in modular Ediacara organisms". Proceedings of the National Academy of Sciences. 106 (34): 14438–14443. doi:10.1073/pnas.0904836106. PMC 2732876.
- ↑ Bekker, Andrey; Sokur, Tetyana; Shumlyanskyy, Leonid; Christopher K. Junium; Podkovyrov, Victor; Kuznetsov, Anton; et al. (4 May 2018). "Ediacara biota flourished in oligotrophic and bacterially dominated marine environments across Baltica". Nature Communications (in English). 9 (1): 1807. Bibcode:2018NatCo...9.1807P. doi:10.1038/s41467-018-04195-8. ISSN 2041-1723. PMC 5935690. PMID 29728614.
- ↑ McMenamin, M. (1993). "Osmotrophy in fossil protoctists and early animals". Invertebrate Reproduction and Development. 23 (2–3): 165–166. doi:10.1080/07924259.1993.9672308.
- ↑ Liu, Alexander G.; Kenchington, Charlotte G.; Mitchell, Emily G. (2015). "Remarkable insights into the paleoecology of the Avalonian Ediacaran macrobiota". Gondwana Research. 27 (4): 1355–1380. Bibcode:2015GondR..27.1355L. doi:10.1016/j.gr.2014.11.002. hdl:1983/ef181134-4023-4747-8137-ed9da7a97771.
- 1 2 3 Buss, L.W.; Seilacher, Adolf (1994). "The phylum Vendobionta: A sister group of the Eumetazoa?". Paleobiology. 20 (1): 1–4. doi:10.1017/S0094837300011088.
- ↑ Brusca, Richard C. (2016). "Introduction to the Bilateria and the Phylum Xenacoelomorpha: Triploblasty and Bilateral Symmetry Provide New Avenues for Animal Radiation" (PDF). Invertebrates (in English). Sinauer Associates. pp. 345–372. ISBN 978-1-60535-375-3. Archived from the original (PDF) on 5 June 2020.
- ↑ Chen, J. -Y. (19 November 2004). "Response to Comment on "Small Bilaterian Fossils from 40 to 55 Million Years Before the Cambrian"". Science. 306 (5700): 1291. doi:10.1126/science.1102328. PMID 15550644.
- 1 2 3 Fedonkin, M.A.; Waggoner, B.M. (Nov 1997). "The Late Precambrian fossil Kimberella is a mollusc-like bilaterian organism". Nature. 388 (6645): 868–871. Bibcode:1997Natur.388..868F. doi:10.1038/42242. S2CID 4395089.
- ↑ McMenamin, M.A.S. (2003). Spriggina is a Trilobitoid Ecdysozoan. Seattle Annual Meeting of the GSA. Archived from the original on 30 August 2008. Retrieved 2007-06-21.
- ↑ Glaessner, M. F. (1980). "Parvancorina – an arthropod from the late Precambrian of South Australia" (PDF). Annalen des Naturhistorischen Museums in Wien (in English). 83: 83–90. ISSN 0083-6133.
- ↑ For a reinterpretation, see Ivantsov, A.Y.; Malakhovskaya, Y.E.; Serezhnikova, E.A. (2004). "Some problematic fossils from the Vendian of the southeastern White Sea region" (PDF). Paleontological Journal. 38 (1): 1–9. Archived from the original (PDF) on 2007-07-04. Retrieved 2007-06-21.
- ↑ Germs, G.J.B. (October 1972). "New shelly fossils from Nama Group, South West Africa". American Journal of Science. 272 (8): 752–761. Bibcode:1972AmJS..272..752G. doi:10.2475/ajs.272.8.752. Archived from the original on 27 September 2007. Retrieved 21 June 2007.
- ↑ Hua, H.; Pratt, B.R.; Zhang, L.U.Y.I. (2003). "Borings in Cloudina Shells: Complex Predator-Prey Dynamics in the Terminal Neoproterozoic". PALAIOS. 18 (4–5): 454. Bibcode:2003Palai..18..454H. doi:10.1669/0883-1351(2003)018<0454:BICSCP>2.0.CO;2. ISSN 0883-1351. S2CID 131590949.
- ↑ Bengtson, S.; Zhao, Y. (1992-07-17). "Predatorial Borings in Late Precambrian Mineralized Exoskeletons". Science. 257 (5068): 367–9. Bibcode:1992Sci...257..367B. doi:10.1126/science.257.5068.367. PMID 17832833. S2CID 6710335.
- ↑ Slater, Ben J.; Harvey, Thomas H. P.; Bekker, Andrey; Butterfield, Nicholas J. (2020). "Cochleatina: An enigmatic Ediacaran–Cambrian survivor among small carbonaceous fossils (SCFs)". Palaeontology. 63 (5): 733–752. Bibcode:2020Palgy..63..733S. doi:10.1111/pala.12484. ISSN 1475-4983.
- 1 2 Schopf, J. W.; Packer, B. M. (1987-07-03). "Early Archean (3.3-billion to 3.5-billion-year-old) microfossils from Warrawoona Group, Australia". Science. 237 (4810): 70–73. doi:10.1126/science.11539686. PMID 11539686.
- ↑ Love, G. D.; et al. (2009). "Fossil steroids record the appearance of Demospongiae during the Cryogenian period". Nature (in English). 457 (7230): 718–721. doi:10.1038/nature07673.
- ↑ Ivantsov A.Yu. (17–21 July 2006). New find of Cambrian type arthropoda from the Vendian of the White Sea, Russia (PDF). The Second International Palaeontological Congress (abstract). Beijing, China. Archived from the original (PDF) on 2009-02-25.
- ↑ Vannier, J.; Calandra, I.; Gaillard, C.; Zylińska, A. (2010). "Priapulid worms: pioneer horizontal burrowers at the Precambrian-Cambrian boundary". Geology (in English). 38 (8): 711–714. doi:10.1130/G30829.1.
- ↑ Kontorovich, A.E.; Varlamov, A.I.; Grazhdankin, D.V.; Karlova, G.A.; Klets, A.G.; Kontorovich, V.A.; Saraev, S.V.; Terleev, A.A.; Belyaev, S.Yu.; Varaksina, I.V.; Efimov, A.S. (2008-12-01). "A section of Vendian in the east of West Siberian Plate (based on data from the Borehole Vostok 3)". Russian Geology and Geophysics (in English). 49 (12): 932–939. Bibcode:2008RuGG...49..932K. doi:10.1016/j.rgg.2008.06.012. ISSN 1068-7971.
- 1 2 3 Jensen, Sören (2003). "The Proterozoic and Earliest Cambrian Trace Fossil Record; Patterns, Problems and Perspectives". Integrative and Comparative Biology. 43 (1): 219–228. doi:10.1093/icb/43.1.219.
- ↑ Fedonkin, M. A. (1990). "Paleoichnology of Vendian Metazoa". In Sokolov, B. S.; Iwanowski, A. B. (eds.). The Vendian System: Volume 1 Paleontology (in English). Berlin, Heidelberg: Springer. pp. 112–116. ISBN 978-3-642-73974-3.
- ↑ Fedonkin, M.A. (1992). "Vendian faunas and the early evolution of Metazoa". In Lipps, J.H.; Signor, P.W. (eds.). Origin and early evolution of the Metazoa. Plenum. pp. 87–129. ISBN 978-0-306-44067-0.
- ↑ Matz, V.; Frank, M.; Marshall, J.; Widder, A.; Johnsen, S. (Dec 2008). "Giant deep-sea protist produces bilaterian-like traces". Current Biology. 18 (23): 1849–1854. Bibcode:2008CBio...18.1849M. doi:10.1016/j.cub.2008.10.028. ISSN 0960-9822. PMID 19026540. S2CID 8819675.
- ↑ Seilacher, A.; Bose, P.K.; Pflüger, F. (1998-10-02). "Triploblastic animals more than 1 billion years ago: Trace fossil evidence from India". Science. 282 (5386): 80–83. Bibcode:1998Sci...282...80S. doi:10.1126/science.282.5386.80. PMID 9756480.
- 1 2 Budd, G. E.; Jensen, S. (2000). "A critical reappraisal of the fossil record of the bilaterian phyla". Biological Reviews. 75 (2): 253–295. doi:10.1111/j.1469-185X.1999.tb00046.x. PMID 10881389. S2CID 39772232.
- ↑ Jensen, S. (2008). "Paleontology: Reading Behavior from the Rocks". Science. 322 (5904): 1051–1052. doi:10.1126/science.1166220. S2CID 129734373.
- 1 2 MacGabhann, B. A. (2007). "Discoidal fossils of the Ediacaran biota: a review of current understanding". Geological Society, London, Special Publications. 286 (1): 297–313. doi:10.1144/SP286.21.
- ↑ Ivantsov, A. Y.; Malakhovskaya, Y. E. (2002). "Giant Traces of Vendian Animals". Doklady Earth Sciences (in English). 385 (6): 618–622. ISSN 1028-334X.
- ↑ Seilacher, A.; Hagadorn, J. W. (2010). "Early Molluscan evolution: evidence from the trace fossil record". Palaios (in English). 25 (9): 565–575. doi:10.2110/palo.2009.p09-079r.
- ↑ Fedonkin, M. A.; Simonetta, A.; Ivantsov, A. Y. (2007). "New data on Kimberella, the Vendian mollusc-like organism (White sea region, Russia): palaeoecological and evolutionary implications". In Vickers-Rich, P.; Komarower, P. (eds.). The Rise and Fall of the Ediacaran Biota (in English). Vol. 286. Geological Society, London, Special Publications. pp. 157–179. doi:10.1144/SP286.12. (همچنین منتشرشده در قالب مقاله: Fedonkin, M. A.; et al. (2010). "New data on Kimberella, the Vendian mollusc-like organism (White Sea region, Russia): paleoecological and evolutionary implications" (PDF). Paleontological Journal (in English). 44 (12): 1460–1473.)؛ و برای دیدگاهی منتقدانهتر ببینید: Butterfield, N. J. (2006). "Hooking some stem-group "worms": Fossil lophotrochozoans in the Burgess Shale". BioEssays (in English). 28 (12): 1161–1166. doi:10.1002/bies.20507. PMID 17120226.
- 1 2 Dunn, F.S.; Kenchington, C.G.; Parry, L.A.; Clark, J.W.; Kendall, R.S.; Wilby, P.R. (25 July 2022). "A crown-group cnidarian from the Ediacaran of Charnwood Forest, UK". Nature Ecology & Evolution. 6 (8): 1095–1104. Bibcode:2022NatEE...6.1095D. doi:10.1038/s41559-022-01807-x. PMC 9349040. PMID 35879540.
- ↑ Glaessner, M. F. (1984). The Dawn of Animal Life: A Biohistorical Study. Cambridge University Press. ISBN 978-0-521-31216-5. OCLC 9394425.
- ↑ Bobrovskiy, Ilya; Hope, Janet M.; Ivantsov, Andrey; Nettersheim, Benjamin J.; Hallmann, Christian; Brocks, Jochen J. (21 September 2018). "Ancient steroids establish the Ediacaran fossil Dickinsonia as one of the earliest animals". Science (in English). 361 (6408): 1246–1249. Bibcode:2018Sci...361.1246B. doi:10.1126/science.aat7228. hdl:1885/230014. ISSN 0036-8075. PMID 30237355.
- ↑ Gold, D.A. (2018). "The slow rise of complex life as revealed through biomarker genetics". Emerging Topics in Life Sciences. 2 (2): 191–199. doi:10.1042/etls20170150. PMID 32412622. S2CID 90887224.
- ↑ Donovan, Stephen K.; Lewis, David N. (2001). "Fossils explained 35. The Ediacaran biota". Geology Today. 17 (3): 115–120. doi:10.1046/j.0266-6979.2001.00285.x.
- ↑ Laflamme, M.; Narbonne, G. M.; Anderson, M. M. (2004). "Morphometric analysis of the Ediacaran frond Charniodiscus from the Mistaken Point Formation, Newfoundland". Journal of Paleontology. 78 (5): 827–837. doi:10.1666/0022-3360(2004)078<0827:MAOTEF>2.0.CO;2.
- ↑ Reich, M.; Kutscher, M. (2011). "Sea Pens (Octocorallia: Pennatulacea) from the Late Cretaceous of Northern Germany". Journal of Paleontology. 85 (6): 1042–1051. doi:10.1666/10-109.1.
- 1 2 Williams, G. C. (1997). "Preliminary assessment of the phylogenetics of pennatulacean octocorals, with a reevaluation of Ediacaran frond-like fossils, and a synthesis of the history of evolutionary thought regarding the sea pens". Proceedings of the 6th International Conference of Coelenterate Biology (in English). Leiden: Nationaal Natuurhistorisch Museum. pp. 497–509. ISBN 90-73239-55-9.
- ↑ Dunn, F. S.; Wilby, P. R.; Kenchington, C. G.; Grazhdankin, D. V.; Donoghue, P. C. J.; Liu, A. G. (2019). "Anatomy of the Ediacaran rangeomorph Charnia masoni". Papers in Palaeontology (in English). 5 (1): 157–176. doi:10.1002/spp2.1234.
- ↑ Seilacher, Adolf (1984). "Late Precambrian and early Cambrian metazoa: Preservational or real extinctions?". In Holland, H.D.; Trendall, A.F. (eds.). Patterns of Change in Earth Evolution. Heidelberg: Springer-Verlag. pp. 159–168. ISBN 978-0-387-12749-1.
- 1 2 Seilacher, Adolf (1989). "Vendozoa: Organismic construction in the Proterozoic biosphere". Lethaia. 22 (3): 229–239. doi:10.1111/j.1502-3931.1989.tb01332.x.
- ↑ Narbonne, Guy (June 2006). The Origin and Early Evolution of Animals. Department of Geological Sciences and Geological Engineering. Queen's University. Archived from the original on 2015-07-24. Retrieved 2016-09-08.
- 1 2 Seilacher, Adolf; Grazhdankin, Dima; Legouta, Anna (2003). "Ediacaran biota: The dawn of animal life in the shadow of giant protists". Paleontological Research (in English). 7 (1): 43–54. doi:10.2517/prpsj.7.43.
- ↑ Antcliffe, Jonathan B.; Gooday, Andrew J.; Brasier, Martin D. (2011). "Testing the protozoan hypothesis for Ediacaran fossils: a developmental analysis of Palaeopascichnus". Palaeontology. 54 (5): 1157–1175. doi:10.1111/j.1475-4983.2011.01058.x.
- ↑ Pawlowski, J.; Holzmann, M.; Fahrni, J.; Richardson, S.L. (2003). "Small subunit ribosomal DNA suggests that the xenophyophorean Syringammina corbicula is a foraminiferan". Journal of Eukaryotic Microbiology. 50 (6): 483–487. doi:10.1111/j.1550-7408.2003.tb00275.x.
- 1 2 Retallack, G. J. (2016). "Ediacaran fossils in thin section". Alcheringa. 40 (4): 583–600. doi:10.1080/03115518.2016.1159412.
- 1 2 3 Jones, Nicola (2013). "Soil or sea for ancient fossils". Nature Geoscience (in English). 6 (2): 84. doi:10.1038/ngeo1713.
- 1 2 Xiao, Shuhai; Knauth, L. Paul (2013). "Fossils come in to land". Nature (in English). 493 (7430): 28–29. doi:10.1038/nature11765.
- 1 2 Switek, Brian (12 December 2012). "Controversial claim puts life on land 65 million years early". Nature (in English). doi:10.1038/nature.2012.12017.
- ↑ Retallack, G. J. (1994). "Were the Ediacaran fossils lichens?". Paleobiology. 20 (4): 523–544. doi:10.1017/S0094837300012975.
- 1 2 3 4 Retallack, G. J. (2013). "Ediacaran life on land". Nature. 493 (7430): 89–92. doi:10.1038/nature11777.
- ↑ Neuendorf, Klaus K.E.; Mehl, James P.; Jackson, Julia A., eds. (2005). Glossary of Geology (5th ed.). Alexandria, Virginia: American Geological Institute. p. 238. ISBN 978-0922152766.
- ↑ Retallack, G. J. (2012). "Were Ediacaran siliciclastics of South Australia coastal or deep marine?". Sedimentology. 59 (4): 1208–1236. doi:10.1111/j.1365-3091.2011.01302.x.
- ↑ Nelsen, Matthew P. (2019). "No support for the emergence of lichens prior to the evolution of vascular plants". Geobiology. 18 (1): 3–13. doi:10.1111/gbi.12369.
- ↑ Zhuravlev, Andrey Yu. (1993). "Were Ediacaran Vendobionta multicellulars?" (PDF). Neues Jahrbuch für Geologie und Paläontologie - Abhandlungen (in English). 190 (2–3): 299–314. doi:10.1127/njgpa/190/1993/299.
- ↑ Peterson, K.J.; Waggoner, B.; Hagadorn, J.W. (2003). "A fungal analog for Newfoundland Ediacaran fossils?". Integrative and Comparative Biology. 43 (1): 127–136. doi:10.1093/icb/43.1.127. PMID 21680417.
- ↑ Pflug, H. D. (1972). "Systematik der jung-präkambrischen Petalonamae Pflug 1970". Paläontologische Zeitschrift. 46 (1–2): 56–67. doi:10.1007/BF02989552.
- ↑ Pflug, H. D. (1973). "Zur Fauna der Nama-Schichten in Südwest-Afrika. IV. Mikroskopische Anatomie der Petalo-Organismen". Palaeontographica Abteilung A (in German). 144: 166–202. ISSN 0375-0442.
- 1 2 Erwin, Douglas H.; Laflamme, Marc; Tweedt, Sarah M.; Sperling, Erik A.; Pisani, Davide; Peterson, Kevin J. (2011). "The Cambrian Conundrum: Early Divergence and Later Ecological Success in the Early History of Animals". Science (in English). 334 (6059): 1091–1097. doi:10.1126/science.1206375. PMID 22116879.
- ↑ Droser, M.L.; Gehling, J.G. (21 March 2008). "Synchronous aggregate growth in an abundant new Ediacaran tubular organism". Science. 319 (5870): 1660–1662. Bibcode:2008Sci...319.1660D. doi:10.1126/science.1152595. PMID 18356525. S2CID 23002564.
- ↑ Droser, Mary L.; Gehling, James G. (2015). "The advent of animals: The view from the Ediacaran". Proceedings of the National Academy of Sciences. 112 (16): 4865–4870. doi:10.1073/pnas.1403669112.
- ↑ Cunningham, John A.; Liu, Alexander G.; Bengtson, Stefan; Donoghue, Philip C. J. (2017). "The origin of animals: Can molecular clocks and the fossil record be reconciled?". BioEssays. 39 (1). doi:10.1002/bies.201600120.
- ↑ Just, J.; Kristensen, R. M.; Olesen, J. (2014). "Dendrogramma, new genus, with two new non-bilaterian species from the marine bathyal of southeastern Australia (Animalia, Metazoa incertae sedis) – with similarities to some medusoids from the Precambrian Ediacara". PLOS ONE. 9 (9) e102976. doi:10.1371/journal.pone.0102976. PMC 4153628. PMID 25184248.
{{cite journal}}: نگهداری یادکرد:doi رایگان بینشان (رده) - ↑ O'Hara, Timothy D.; Hugall, Andrew F.; MacIntosh, Hugh; Naughton, Kate M.; Williams, Alan; Moussalli, Adnan (2016). "Dendrogramma is a siphonophore". Current Biology. 26 (11): R457–R458. doi:10.1016/j.cub.2016.04.051. PMID 27269719.
- ↑ Dunn, Frances S.; Liu, Alexander G.; Grazhdankin, Dmitriy V.; Vixseboxse, Philip; Flannery-Sutherland, Joseph; Green, Emily; Harris, Simon; Wilby, Philip R.; Donoghue, Philip C. J. (2021). "The developmental biology of Charnia and the eumetazoan affinity of the Ediacaran rangeomorphs". Science Advances. 7 (30): eabe0291. doi:10.1126/sciadv.abe0291.
{{cite journal}}: نگهداری یادکرد:شماره مقاله بهجای شماره صفحه (رده) - ↑ Hofmann, H. J.; Grey, K.; Hickman, A. H.; Thorpe, R. I. (1999-08-01). "Origin of 3.45 Ga coniform stromatolites in Warrawoona Group, Western Australia". Bulletin of the Geological Society of America. 111 (8): 1256–1262. doi:10.1130/0016-7606(1999)111<1256:OOGCSI>2.3.CO;2.
- ↑ Archer, C.; Vance, D. (2006-03-01). "Coupled Fe and S isotope evidence for Archean microbial Fe (III) and sulfate reduction". Geology. 34 (3): 153–156. doi:10.1130/G22067.1.
- ↑ Butterfield, Nicholas J. (2000). "Bangiomorpha pubescens n. gen., n. sp.: implications for the evolution of sex, multicellularity, and the Mesoproterozoic/Neoproterozoic radiation of eukaryotes". Paleobiology. 26 (3): 386–404. doi:10.1666/0094-8373(2000)026<0386:BPNGNS>2.0.CO;2.
- ↑ Fedonkin, M. A. (1980). "New representatives of the Precambrian coelenterates in the northern Russian platform". Paleontologicheskii Zhurnal (in Russian): 7–15. ISSN 0031-031X.
- ↑ Meert, J.G.; Gibsher, A.S.; Levashova, N.M.; Grice, W.C.; Kamenov, G.D.; Rybanin, A. (2010). "Glaciation and ~770 Ma Ediacara (?) Fossils from the Lesser Karatau Microcontinent, Kazakhstan". Gondwana Research. 19 (4): 867–880. doi:10.1016/j.gr.2010.11.008.
- ↑ Holland, H. D. (1984). The Chemical Evolution of the Atmosphere and Oceans (in English). Princeton University Press. ISBN 978-0691023816.
- 1 2 Lyons, T. W.; Reinhard, C. T.; Planavsky, N. J. (2014). "The rise of oxygen in Earth's early ocean and atmosphere". Nature. 506 (7488): 307–315. doi:10.1038/nature13068.
- ↑ Planavsky, Noah J.; Cole, Devon B.; Isson, Terry T.; Reinhard, Christopher T.; Crockford, Peter W.; Sheldon, Nathan D.; Lyons, Timothy W. (9 August 2018). "A case for low atmospheric oxygen levels during Earth's middle history". Emerging Topics in Life Sciences. 2 (2): 149–159. doi:10.1042/etls20170161. ISSN 2397-8554. PMID 32412619. S2CID 210099422.
- ↑ Canfield, D. E.; Teske, A. (1996). "Late Proterozoic rise in atmospheric oxygen concentration inferred from phylogenetic and sulphur-isotope studies". Nature. 382 (6587): 127–132. doi:10.1038/382127a0.
- ↑ Canfield, D. E.; Poulton, S. W.; Narbonne, G. M. (2007). "Late-Neoproterozoic Deep-Ocean Oxygenation and the Rise of Animal Life". Science. 315 (5808): 92–95. doi:10.1126/science.1135013.
- 1 2 Fike, D. A.; Grotzinger, J. P.; Pratt, L. M.; Summons, R. E. (2006). "Oxidation of the Ediacaran ocean". Nature. 444 (7120): 744–747. doi:10.1038/nature05345.
- ↑ Butterfield, N. J. (2009). "Oxygen, animals and oceanic ventilation: An alternative view". Geobiology. 7 (1): 1–7. doi:10.1111/j.1472-4669.2009.00188.x.
- ↑ Narbonne, Guy M. (September 2003). "Life after Snowball: The Mistaken Point biota and the origin of animal ecosystems". Geological Society of America Abstracts with Programs. Seattle Annual Meeting of the GSA. Vol. 35. p. 516. ISSN 0016-7592.
- ↑ Hoffman, P. F.; Kaufman, A. J.; Halverson, G. P.; Schrag, D. P. (1998). "A Neoproterozoic Snowball Earth". Science. 281 (5381): 1342–1346. doi:10.1126/science.281.5381.1342. PMID 9721097.
- ↑ Gould, S. J. (1991). "The disparity of the Burgess Shale arthropod fauna and the limits of cladistic analysis: why we must strive to quantify morphospace". Paleobiology. 17 (4): 411–423. doi:10.1017/S0094837300010745.
- 1 2 3 4 5 Shen, Bing; Dong, Lin; Xiao, Shuhai; Kowalewski, Michał (2008). "The Avalon explosion: Evolution of Ediacara morphospace". Science. 319 (5859): 81–84. Bibcode:2008Sci...319...81S. doi:10.1126/science.1150279. PMID 18174439. S2CID 206509488.
- ↑ "Two explosive evolutionary events shaped early history Of multicellular life". Science Daily (Press release). January 2008. Archived from the original on 7 July 2017. Retrieved 28 February 2018.
- ↑ Pu, J. P.; Bowring, S. A.; Ramezani, J.; Myrow, P.; Raub, T. D.; Landing, E.; Mills, A.; Hodgin, E. B.; Macdonald, F. A. (2016). "Dodging snowballs: Geochronology of the Gaskiers glaciation and the first appearance of the Ediacaran biota". Geology. 44 (11): 955–958. doi:10.1130/G38284.1.
- ↑ dos Reis, M.; Thawornwattana, Y.; Angelis, K.; Telford, M. J.; Donoghue, P. C. J.; Yang, Z. (2015). "Uncertainty in the Timing of Origin of Animals and the Limits of Precision in Molecular Timescales". Current Biology (in English). 25 (22): 2939–2950. doi:10.1016/j.cub.2015.09.066.
- ↑ Griffiths, H. J.; Whittle, R. J.; Mitchell, E. G. (2022). "Animal survival strategies in Neoproterozoic ice worlds". Global Change Biology (in English). doi:10.1111/gcb.16393.
- 1 2 Canfield, Donald Eugene; Knoll, Andrew H.; Poulton, Simon W.; Narbonne, Guy M.; Dunning, Gregory R. (February 2020). "Carbon isotopes in clastic rocks and the Neoproterozoic carbon cycle". American Journal of Science. 320 (2): 97–124. Bibcode:2020AmJS..320...97C. doi:10.2475/02.2020.01. S2CID 214806821. Retrieved 12 March 2023.
- ↑ Shi, Wei; Li, Chao; Luo, Genming; Huang, Junhua; Algeo, Thomas J.; Jin, Chengsheng; Zhang, Zihu; Cheng, Meng (24 January 2018). "Sulfur isotope evidence for transient marine-shelf oxidation during the Ediacaran Shuram Excursion". Geology (in English). 46 (3): 267–270. Bibcode:2018Geo....46..267S. doi:10.1130/G39663.1.
- ↑ Knauth, L. Paul; Kennedy, Martin J. (2009). "The late Precambrian greening of the Earth". Nature (in English). 460 (7256): 728–732. Bibcode:2009Natur.460..728K. doi:10.1038/nature08213. PMID 19587681.
- ↑ Mussini, G.; Dunn, F. S. (February 2024). "Decline and fall of the Ediacarans: late-Neoproterozoic extinctions and the rise of the modern biosphere". Biological Reviews (in English). 99 (1): 110–130. doi:10.1111/brv.13014.
- 1 2 Darroch, Simon A. F.; Sperling, Erik A.; Boag, Thomas H.; Racicot, Rachel A.; Mason, Sara J.; Morgan, Alex S.; Tweedt, Sarah; Myrow, Paul; Johnston, David T.; Erwin, Douglas H.; Laflamme, Marc (7 September 2015). "Biotic replacement and mass extinction of the Ediacara biota". Proceedings of the Royal Society B. 282 (1814): 1–10. Bibcode:2015RSPSB.28251003D. doi:10.1098/rspb.2015.1003. PMC 4571692. PMID 26336166.
- 1 2 Kidwell, Susan M.; Brenchley, Patrick J (1996). "Evolution of the fossil record: thickness trends in marine skeletal accumulations and their implication". Evolutionary Paleobiology: In Honor of James W. Valentine. University of Chicago Press. pp. 290–336. ISBN 978-0-226-38911-0.
- ↑ Allison, P. A.; Briggs, D. E. G. (1991). Taphonomy: Releasing the Data Locked in the Fossil Record. New York: Plenum Press. p. 120. ISBN 978-0-306-43876-9.
- ↑ Conway Morris, Simon (1993). "Ediacaran-like fossils in Cambrian Burgess Shale–type faunas of North America". Palaeontology. 36 (3): 593–635. ISSN 0031-0239.
- ↑ Jensen, S. R.; Gehling, J. G.; Droser, M. L. (1998). "Ediacara-type fossils in Cambrian sediments". Nature. 393 (6685): 567–569. doi:10.1038/31215.
- ↑ Shu, D.-G; Conway Morris, S.; Han, J.; et al. (2006-05-05). "Lower Cambrian Vendobionts from China and Early Diploblast Evolution". Science. 312 (5774): 731–734. doi:10.1126/science.1124565. PMID 16675697.
- ↑ Han, J.; Li, G.; Wang, X. (2016). Dwarfed vendobionts from the Cambrian Kuanchuanpu Formation in South China. Palaeo Down Under 2. Adelaide, Australia. ISSN 0729-011X.
- 1 2 Conway Morris, S. (1993). "The fossil record and the early evolution of the Metazoa". Nature. 361 (6409): 219–225. Bibcode:1993Natur.361..219C. doi:10.1038/361219a0. S2CID 86265007.
- ↑ Brown, Taylor Mitchell (13 March 2026). "Earth's first major extinction was worse than we thought". Science. doi:10.1126/science.zzuatce. Retrieved 23 March 2026.
- ↑ Seilacher, Adolf; Pflüger, F. (1994). "From biomats to benthic agriculture: A biohistoric revolution". In Krumbein, W. E.; Peterson, D. M.; Stal, L. J. (eds.). Biostabilization of Sediments. Bibliotheks-und Informationssystem der Carl von Ossietzky Universität Oldenburg. pp. 97–105. ISBN 3-8142-0483-2.
- ↑ Stanley, S. M. (1973). "An ecological theory for the sudden origin of multicellular life in the Late Precambrian". Proceedings of the National Academy of Sciences. 70 (5): 1486–1489. doi:10.1073/pnas.70.5.1486. PMID 16592084.
- ↑ Gould, Stephen J.; Calloway, C. B. (1980). "Clams and brachiopods – ships that pass in the night". Paleobiology. 6 (4): 383–396. doi:10.1017/s0094837300003572.
- 1 2 McKerrow, W. S.; Scotese, C. R.; Brasier, M. D. (1992). "Early Cambrian continental reconstructions". Journal of the Geological Society, London. 149 (4): 599–606. doi:10.1144/gsjgs.149.4.0599.
- 1 2 3 Brasier, M. D. (1992). "Background to the Cambrian explosion". Journal of the Geological Society, London. 149 (4): 585–587. doi:10.1144/gsjgs.149.4.0585.
- ↑ Hallam, A. (1984). "Pre-Quaternary sea-level changes". Annual Review of Earth and Planetary Sciences. 12: 205–243. doi:10.1146/annurev.ea.12.050184.001225.
- ↑ Brasier, M. D. (1992). "Global ocean-atmosphere change across the Precambrian-Cambrian transition". Geological Magazine. 129 (2): 161–168. doi:10.1017/S0016756800008256.
- ↑ Chumakov, N. M. (2009). "The Baykonurian glaciohorizon of the Late Vendian". Stratigraphy and Geological Correlation (in English). 17 (5): 451–458. doi:10.1134/S0869593809040029.
- ↑ Xiao, Shuhai; Narbonne, Guy M. (2020). "The Ediacaran Period". In Gradstein, Felix M.; Ogg, James G.; Schmitz, Mark D.; Ogg, Gabi M. (eds.). Geologic Time Scale 2020 (in English). Elsevier. pp. 521–561. doi:10.1016/B978-0-12-824360-2.00018-8. ISBN 978-0-12-824360-2.
- ↑ Lowenstein, T. K.; Timofeeff, M. N.; Brennan, S. T.; Hardie, L. A.; Demicco, R. V. (2001). "Oscillations in Phanerozoic Seawater Chemistry: Evidence from Fluid Inclusions". Science. 294 (5544): 1086–1089. doi:10.1126/science.1064280. PMID 11691988.
- ↑ Bartley, J. K.; Pope, M.; Knoll, A. H.; Semikhatov, M. A.; Petrov, P. Y. U. (1998). "A Vendian-Cambrian boundary succession from the northwestern margin of the Siberian Platform: stratigraphy, palaeontology, chemostratigraphy and correlation". Geological Magazine. 135 (4): 473–494. doi:10.1017/s0016756898008772.
- ↑ "Definition of MACROORGANISM". Merriam-Webster (in English).
- 1 2 3 Evans, Scott D.; Tu, Chenyi; Rizzo, Adriana; Surprenant, Rachel L.; Boan, Phillip C.; McCandless, Heather; Marshall, Nathan; Xiao, Shuhai; Droser, Mary L. (15 November 2022). "Environmental drivers of the first major animal extinction across the Ediacaran White Sea-Nama transition". Proceedings of the National Academy of Sciences (in English). 119 (46) e2207475119. Bibcode:2022PNAS..11907475E. doi:10.1073/pnas.2207475119. ISSN 0027-8424. PMC 9674242. PMID 36343248.
- 1 2 3 Erwin, Douglas H. (May 2008). "Wonderful Ediacarans, Wonderful Cnidarians?". Evolution & Development. 10 (3): 263–264. doi:10.1111/j.1525-142X.2008.00234.x. PMID 18460087. S2CID 205674433.
- ↑ Benus (May 1988). Trace fossils, small shelly fossils and the Precambrian-Cambrian boundary. Vol. 463. University of the State of New York. p. 81. ISBN 978-1-55557-178-8.
- ↑ Bowring, S. A.; Myrow, P.; Landing, E.; Ramezani, J.; Grotzinger, J. P. (2003). "Geochronological constraints on terminal Neoproterozoic events and the rise of metazoans" (PDF). Astrobiology (in English). 3 (3): 463–477.
- 1 2 3 Clapham, Matthew E.; Narbonne, Guy M.; Gehling, James G. (2003). "Paleoecology of the oldest known animal communities: Ediacaran assemblages at Mistaken Point, Newfoundland". Paleobiology. 29 (4): 527–544. Bibcode:2003Pbio...29..527C. doi:10.1666/0094-8373(2003)029<0527:POTOKA>2.0.CO;2. S2CID 45514650. Archived from the original on 23 November 2007. Retrieved 22 June 2007.
- 1 2 3 Levinton, Jeffrey S. (2013). Marine Biology: Function, Biodiversity, Ecology (4th ed.). Oxford University Press. pp. 315–318. ISBN 978-0199857128.
- ↑ Clapham, M.E.; Narbonne, G.M. (2002). "Ediacaran epifaunal tiering". Geology. 30 (7): 627–630. Bibcode:2002Geo....30..627C. doi:10.1130/0091-7613(2002)030<0627:EET>2.0.CO;2.
- ↑ Retallack, G. J. (2012). Criteria for distinguishing microbial mats and earths. SEPM Special Publication 101. Tulsa: Society of Economic Paleontologists and Mineralogists. pp. 136–152. doi:10.2110/sepmsp.101.139. ISBN 978-1-56576-283-1.
- 1 2 3 4 5 Grazhdankin, Dima (2004). "Patterns of distribution in the Ediacaran biotas: facies versus biogeography and evolution" (PDF). Paleobiology. 30 (2): 203–221. Bibcode:2004Pbio...30..203G. doi:10.1666/0094-8373(2004)030<0203:PODITE>2.0.CO;2. S2CID 129376371. Archived (PDF) from the original on 26 July 2011. Retrieved 10 April 2007. (منبع دادهها برای تلفیق گاهشمار، صفحه ۲۱۸. استنادات بیشتر در توضیحات شکل ۸ موجود است.)
- ↑ Droser, Mary L.; Gehling, James G.; Jensen, Sören R. (2006). "Assemblage palaeoecology of the Ediacara biota: The unabridged edition?". Palaeogeography, Palaeoclimatology, Palaeoecology. 232 (2–4): 131–147. doi:10.1016/j.palaeo.2005.12.015.
- ↑ Weyland, W. C.; Droser, M. L. (17 February 2025). "The Ediacaran Aquarium: insights from the Nilpena Ediacara National Park 1T-F Marine Ecosystem (Ediacara Member, Rawnsley Quartzite)". Australian Journal of Earth Sciences. 72 (2): 151–168. doi:10.1080/08120099.2025.2462660. ISSN 0812-0099.
- ↑ Foote, Mike (2000). "Origination and extinction components of taxonomic diversity: general problems". Paleobiology (in English). 26 (sp4): 74–102. doi:10.1666/0094-8373(2000)26[74:OAECOT]2.0.CO;2.
- 1 2 "Benthos". Encyclopedia Britannica (in English). Retrieved 2023-10-26.
- ↑ Schiffbauer, James D.; Huntley, John Warren; O'Neil, Gretchen R.; Darroch, Simon A. F.; Laflamme, Marc; Cai, Yaoping (2016). "The latest Ediacaran Wormworld fauna: Setting the ecological stage for the Cambrian explosion". GSA Today (in English). 26 (11): 4–11. doi:10.1130/GSATG265A.1.
- ↑ Schiffbauer, J.F. (2016). "The Latest Ediacaran Wormworld Fauna: Setting the Ecological Stage for the Cambrian Explosion". GSA Today. Vol. 26, no. 11. pp. 4–11. doi:10.1130/GSATG265A.1. hdl:1807/77824. S2CID 52204161.
- ↑ Waggoner, Ben (1999). "Biogeographic analyses of the Ediacara biota: A conflict with paleotectonic reconstructions". Paleobiology. 25 (4): 440–458. Bibcode:1999Pbio...25..440W. doi:10.1017/S0094837300020315. JSTOR 2666048. S2CID 130817983.
- ↑ van Hinsbergen, Douwe J. J.; de Groot, Lennart V.; van Schaik, Sebastiaan J.; et al. (2015). "A Paleolatitude Calculator for Paleoclimate Studies". PLOS ONE (in English). 10 (6): e0126946. doi:10.1371/journal.pone.0126946. PMC 4462584. PMID 26076461.
{{cite journal}}: نگهداری یادکرد:doi رایگان بینشان (رده) نگهداری یادکرد:شماره مقاله بهجای شماره صفحه (رده) - ↑ Boag, Thomas H.; Darroch, Simon A.F.; Laflamme, Marc (2016). "Ediacaran distributions in space and time: testing assemblage concepts of earliest macroscopic body fossils". Paleobiology. 42 (4): 574–594. Bibcode:2016Pbio...42..574B. doi:10.1017/pab.2016.20.
- ↑ Bambach, R. K. (1983). "Ecospace utilization and guilds in marine communities through the Phanerozoic". Biotic interactions in recent and fossil benthic communities. Springer. pp. 719–746. doi:10.1007/978-1-4757-0740-3_15. ISBN 978-1-4757-0742-7.
- ↑ Bambach, R.K.; Bush, A.M.; Erwin, D.H. (2007). "Autecology and the filling of Ecospace: Key metazoan radiations". Palæontology. 50 (1): 1–22. Bibcode:2007Palgy..50....1B. doi:10.1111/j.1475-4983.2006.00611.x.
برای مطالعهٔ بیشتر
- Conway Morris, Simon (1999). The Crucible of Creation: The Burgess Shale and the Rise of Animals. ISBN 978-0-19-286202-0.
- Derek Briggs; Peter Crowther, eds. (2001). Palæobiology II: A synthesis. Malden, MA: Blackwell Science. pp. Chapter 1. ISBN 978-0-632-05147-2. OCLC 43945263.
- McMenamin, M.A.S. (1998). The Garden of Ediacara: Discovering the first complex life. New York: Columbia University Press. ISBN 978-0-231-10558-3. OCLC 3758852.
- Shen, B.; Dong, L.; Xiao, S.; Kowalewski, M. (2008). "The Avalon Explosion: Evolution of Ediacara Morphospace". Science. 319 (5859): 81–84. doi:10.1126/science.1150279.
- Wood, R.A. (June 2019). "The rise of animals: New fossils and analyses of ancient ocean chemistry reveal the surprisingly deep roots of the Cambrian explosion". Scientific American. Vol. 320, no. 6. pp. 24–31.
پیوند به بیرون
- Watson, Traci (28 October 2020). "These bizarre ancient species are rewriting animal evolution". Nature (in English). Retrieved 2022-12-18. — مقالهٔ مروری دربارهٔ زیواگان ادیاکاران همراه با تصاویر فراوان.
- "The Ediacaran assemblage" (in English). 2010. Archived from the original on 10 اكتبر 2010. Retrieved 23 ژوئیه 2026.
{{cite web}}: تاریخ وارد شده در|archive-date= - "Database of Ediacaran biota" (in English). July 2010. Archived from the original on 25 ژوئیه 2011. Retrieved 23 ژوئیه 2026. — پایگاه داده و گردآوری اطلاعاتِ این زیواگان (تا ژوئیه ۲۰۱۰).
- Bragg, M.; Corfield, R.; Brasier, M.; Wood, R. (9 July 2009). "In Our Time: The Ediacara Biota" (in English). BBC Radio 4. — برنامهٔ رادیویی بیبیسی دربارهٔ زیواگان ادیاکاران.
- تصویر رویان دوشانتوئو — منتشرشده در ژورنال PNAS (نوامبر ۲۰۰۹) که پیشنهاد میکند این رویان در مرحلهای بسیار شبیه به بندپایان امروزی بوده است.
- صفحهٔ زیواگان ادیاکاران در وبگاه Palaeos (به انگلیسی)

زیواگان ادیاکاران در پروژههای خواهر
 واژهٔ «زیواگان» در ویکیواژه
 نگارخانهٔ مرتبط در ویکیانبار پروندههای مرتبط در ویکیانبار
 گونهٔ Dickinsonia در ویکیگونه
- مقالههای خوب
- ادیاکاران
- پیشینزیستی نو
- دورههای زمینشناسی
- زمینگاهشناسی پیشینزیستی
- زندگی در ادیاکاران
- زندگی در پیشینزیستی
- زیستگاه
- مقیاس زمانی زمینشناسی
- واژگان بومشناسی
- واژگان زیستشناسی