رتینال
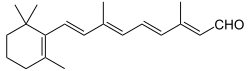
| تمامترانس-رتینال | |
|---|---|
 | |
 | |
Retinal | |
(2E4E6E8E)-37-Dimethyl-9-(266-trimethylcyclohex-1-en-1-yl)nona-2468-tetraenal | |
دیگر نامها
| |
| شناساگرها | |
| شماره ثبت سیایاس | 116-31-4  |
| پابکم | 638015 |
| کماسپایدر | 553582 |
| UNII | RR725D715M |
| ChEBI | CHEBI:17898 |
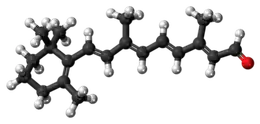
| جیمول-تصاویر سه بعدی | Image 1 |
| |
| |
| خصوصیات | |
| فرمول مولکولی | C20H28O |
| جرم مولی | ۲۸۴٫۴۴ g mol−1 |
| شکل ظاهری | بلورهای نارنجی حاصل از اتر نفت |
| دمای ذوب | ۶۱ تا ۶۴ درجه سلسیوس (۱۴۲ تا ۱۴۷ درجه فارنهایت؛ ۳۳۴ تا ۳۳۷ کلوین)[۱] |
| انحلالپذیری در آب | تقریباً نامحلول |
| انحلالپذیری در چربی | محلول |
| به استثنای جایی که اشاره شدهاست در غیر این صورت، دادهها برای مواد به وضعیت استانداردشان داده شدهاند (در 25 °C (۷۷ °F)، ۱۰۰ kPa) | |
(بررسی) (چیست: / ؟) | |
| Infobox references | |
|
| |
رِتینال یا رتینالدئید، یکی از رتینوئیدها و یک پلیاِن رنگبر با فرمول شیمیایی C20H28O است. رتینال با اتصال به پروتئینهایی به نام اپسین، جزء نورگیرِ رنگدانههای بینایی را تشکیل میدهد و از این رو اساس شیمیایی ترارسانی نوری بینایی، یعنی مرحلهٔ تشخیص نور در فرایند بینایی، بهشمار میرود.[۲]
رتینال یکی از صورتهای زیستشناختی ویتامین آ است. در جانوران، پیشسازهای گوناگون ویتامین آ در نهایت میتوانند به رتینال تبدیل شوند و خود رتینال نیز میتواند به رتینول یا رتینوئیک اسید تبدیل شود. شمار ترکیباتی که یک جانور قادر است آنها را به رتینال تبدیل کند، در گونههای مختلف یکسان نیست.
برخی ریزاندامگان نیز از رتینال برای تبدیل انرژی نور به انرژی مورد نیاز سوختوساز استفاده میکنند. بر پایهٔ «فرضیه زمین بنفش»، پیشنهاد شده است که در مراحل آغازین تاریخ حیات، سامانههای نورگیر مبتنی بر رتینال ممکن است پیش از گسترش فتوسنتز مبتنی بر سبزینه اهمیت زیادی داشته باشند؛ زیرا رنگدانههای رتینالی عمدتاً نور سبز را جذب میکنند و بخشهایی از نور سرخ و آبی را بازمیتابانند یا عبور میدهند.[۳]
این ترکیب در آغاز رتینن نامیده میشد.[۴] پس از روشن شدن اینکه این ماده آلدئید ویتامین آ است، نام «رتینال» برای آن رواج یافت.[۵][۶]
مهرهداران میتوانند رتینال را مستقیماً از مواد غذایی جانوری دریافت کنند یا آن را از برخی کاروتنوئیدها، بهویژه آلفا-کاروتن، بتا-کاروتن و بتا-کریپتوکسانتین بسازند. این کاروتنوئیدها در نهایت از گیاهان و دیگر جانداران فتوسنتزکننده منشأ میگیرند. توانایی تبدیل کاروتنوئیدها به رتینال در جانوران متفاوت است و برخی گوشتخواران توانایی بسیار محدودی برای این تبدیل دارند.
بیمهرگانی مانند بسیاری از حشرات و ماهیهای مرکب علاوه بر رتینال از مشتقات هیدروکسیلهٔ آن نیز بهعنوان رنگبر بینایی استفاده میکنند.
سوختوساز ویتامین آ
جانداران میتوانند رتینال را از راه شکافت اکسایشی برگشتناپذیر برخی کاروتنوئیدها تولید کنند.[۷] نمونهٔ مهم آن شکافت بتا-کاروتن است:
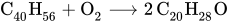
یا بهصورت ساده:
- بتا-کاروتن + O2 → ۲ رتینال
این واکنش بهوسیلهٔ آنزیمهایی مانند بتا-کاروتن ۱۵٬۱۵'-مونوکسیژناز کاتالیز میشود.[۸]
همانگونه که کاروتنوئیدها پیشساز رتینال هستند، رتینال نیز واسطهای مرکزی در سوختوساز دیگر شکلهای ویتامین آ است. رتینال و رتینول، که یکی از صورتهای اصلی ذخیره و انتقال ویتامین آ است، میتوانند به یکدیگر تبدیل شوند:
- رتینال + NADPH + H+ ⇌ رتینول + NADP+
- رتینول + NAD+ ⇌ رتینال + NADH + H+
این واکنشها بهوسیلهٔ رتینول دهیدروژنازها و شماری از الکل دهیدروژنازها انجام میشوند.[۹]
رتینال همچنین میتواند بهصورت برگشتناپذیر به رتینوئیک اسید اکسید شود:
- رتینال + NAD+ + H2O → رتینوئیک اسید + NADH + H+
این واکنش عمدتاً بهوسیلهٔ رتینال دهیدروژنازها، که به نام رتینالدئید دهیدروژناز نیز شناخته میشوند، انجام میشود.[۱۰] رتینوئیک اسید برخلاف رتینول عمدتاً یک مولکول پیامرسان است و در مهرهداران در تنظیم بیان ژن، رشد و تکوین نقش مهمی دارد.
نقش در بینایی
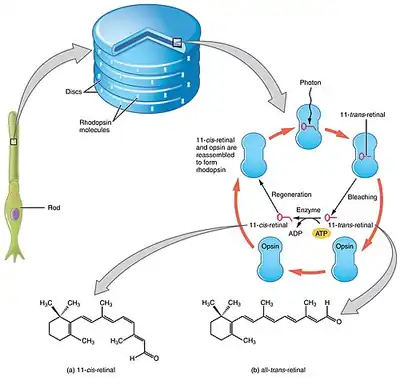
رتینال دارای یک سامانه مزدوج از پیوندهای دوگانه است و از این رو میتواند نور مرئی را جذب کند. در چشم مهرهداران، رنگبر بینایی در حالت تاریکی عمدتاً بهشکل ۱۱-سیس-رتینال به اپسین متصل است. جذب یک فوتون باعث ایزومریزاسیون آن به تمامترانس-رتینال میشود. این تغییر آرایش، ساختار فضایی اپسین را تغییر میدهد و آبشاری از واکنشهای پیامرسانی سلولی را آغاز میکند که سرانجام به ایجاد پیام عصبی بینایی میانجامد.[۱۱]
طیف جذبی رتینال به محیط پروتئینی پیرامون آن بستگی دارد؛ بنابراین انواع مختلف کمپلکس رتینال–اپسین طول موجهای متفاوتی از نور را جذب میکنند. همین ویژگی یکی از مبانی مولکولی تمایز رنگها در سلولهای مخروطی است.
اپسینها
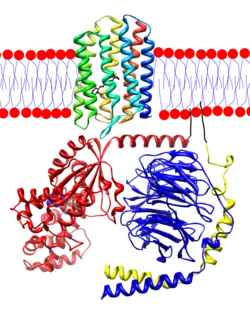
رتینال به اپسینها متصل میشود. اپسینهای جانوری از خانوادهٔ گیرندههای جفتشونده با پروتئین جی هستند و هفت مارپیچ آلفای تراگذری دارند. این پروتئینها در سلولهای گیرندهٔ نور شبکیه یافت میشوند.
اپسین اصلی سلولهای استوانهای مهرهداران رودوپسین است. در سلولهای مخروطی انسان سه اپسین اصلی حساس به طول موجهای کوتاه، متوسط و بلند وجود دارد که بهترتیب توسط ژنهای OPN1SW، OPN1MW و OPN1LW رمزگذاری میشوند.
رتینال در اپسین از طریق تشکیل یک باز شیف بهطور کووالانسی به یک باقیماندهٔ لیزین در هفتمین مارپیچ تراگذری متصل میشود.[۱۲] در رودوپسین گاو، این جایگاه لیزین ۲۹۶ است.[۲] این لیزین در تقریباً همهٔ اپسینهای نورحساس حفظ شده است.
رودوپسین گاوی از نخستین گیرندههای جفتشونده با پروتئین جی بود که توالی اسید آمینهای و سپس ساختار سهبعدی آن تعیین شد. ساختار بلوری آن در سال ۲۰۰۰ منتشر شد و نقش مهمی در شناخت ساختمان این خانوادهٔ بزرگ از گیرندههای سلولی داشت.[۲]
پستانداران عمدتاً از رتینال بهعنوان رنگبر اپسینها استفاده میکنند، اما در گروههای دیگر جانوری رنگبرهای نزدیک دیگری نیز دیده میشود. از جمله میتوان به ۳٬۴-دیدهیدرورتینال یا ویتامین آ۲، دو انانتیومر ۳-هیدروکسیرتینال و ۴-هیدروکسیرتینال اشاره کرد. بسیاری از ماهیها و دوزیستان از دهیدرورتینال نیز استفاده میکنند.
بیشتر حشرات بررسیشده، بهجز گروهی از مگسهای عالی، از انانتیومر R-۳-هیدروکسیرتینال بهره میبرند؛ در حالی که مگسهای گروه مگسهای دایرهای از جمله مگس سرکه از (۳S)-۳-هیدروکسیرتینال استفاده میکنند.[۱۳]
چرخهٔ بینایی
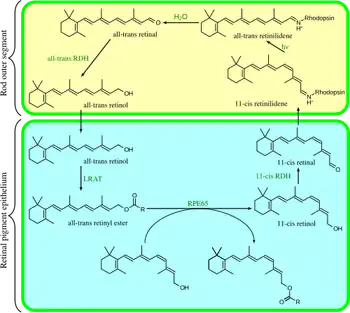
چرخه بینایی یا چرخهٔ رتینوئید مجموعهای از واکنشهای آنزیمی است که ۱۱-سیس-رتینال مصرفشده در فرایند دریافت نور را بازسازی میکند. بدون این بازیافت، اپسینها پس از نورگیری نمیتوانند دوباره به حالت حساس به نور بازگردند.[۱۱]
در چرخهٔ کلاسیک سلولهای استوانهای پستانداران، مراحل اصلی چنین است:
تمامترانس-رتینول در اپیتلیوم رنگدانهای شبکیه به استرهای رتینیل تبدیل میشود.
آنزیم RPE65 این ترکیبات را در فرایندی شامل ایزومریزاسیون به ۱۱-سیس-رتینول تبدیل میکند.[۱۴]
۱۱-سیس-رتینول اکسید و به ۱۱-سیس-رتینال تبدیل میشود.
۱۱-سیس-رتینال به اپسین متصل میشود و رنگدانهٔ بینایی، برای نمونه رودوپسین، را بازسازی میکند.
جذب فوتون سبب تبدیل ۱۱-سیس-رتینال به تمامترانس-رتینال و فعال شدن رودوپسین میشود.
تمامترانس-رتینال آزادشده دوباره به تمامترانس-رتینول کاهش مییابد و برای ادامهٔ چرخه به اپیتلیوم رنگدانهای منتقل میشود.
این چرخه میان بخش خارجی سلولهای گیرندهٔ نور و سلولهای اپیتلیوم رنگدانهای شبکیه تقسیم شده است. اختلال ژنتیکی در آنزیمها و پروتئینهای این چرخه میتواند باعث شماری از دیستروفیهای ارثی شبکیه شود.[۱۵]
رودوپسینهای میکروبی
تمامترانس-رتینال جزء ضروری گروهی از پروتئینهای نورگیر میکروبی، از جمله باکتریورودوپسین، کانالرودوپسین و هالورودوپسین است. این پروتئینها در برخی باکتریها و آرکیها امکان استفاده از انرژی نور را فراهم میکنند.
در این سامانهها جذب نور میتواند تمامترانس-رتینال را به ۱۳-سیس-رتینال تبدیل کند و سپس مولکول در ادامهٔ چرخه دوباره به حالت تمامترانس بازگردد.
اپسینهای میکروبی از نظر فرگشتی با اپسینهای جانوری خویشاوند نیستند و برخلاف اپسینهای جانوری از گیرندههای جفتشونده با پروتئین جی بهشمار نمیروند. استفادهٔ هر دو گروه از رتینال نمونهای از فرگشت همگرا دانسته میشود.
تاریخچه
جورج والد، زیستشیمیدان آمریکایی، از پژوهشگران اصلی در کشف نقش رتینال و چرخهٔ ویتامین آ در بینایی بود. او و همکارانش تا دههٔ ۱۹۵۰ میلادی مراحل عمدهٔ چرخهٔ مولکولی رنگدانههای بینایی را روشن کرده بودند. والد بهسبب پژوهشهایش دربارهٔ فرایندهای شیمیایی و فیزیولوژیک بینایی، همراه با هالدن کفر هارتلاین و راگنار گرانیت، برندهٔ جایزه نوبل فیزیولوژی یا پزشکی سال ۱۹۶۷ شد.[۱۶]
جستارهای وابسته
منابع
- ↑ The Merck Index, 13th ed., entry 8249.
- 1 2 3 Palczewski K, Kumasaka T, Hori T, Behnke CA, Motoshima H, Fox BA, et al. (August 2000). "Crystal structure of rhodopsin: A G protein-coupled receptor". Science. 289 (5480): 739–745. Bibcode:2000Sci...289..739P. doi:10.1126/science.289.5480.739. PMID 10926528.
- ↑ DasSarma, Shiladitya; Schwieterman, Edward W. (2018). "Early evolution of purple retinal pigments on Earth and implications for exoplanet biosignatures". International Journal of Astrobiology. 20 (3): 241–250. arXiv:1810.05150. doi:10.1017/S1473550418000423. ISSN 1473-5504. S2CID 119341330.
- ↑ Wald, George (14 July 1934). "Carotenoids and the Vitamin A Cycle in Vision". Nature. 134 (3376): 65. Bibcode:1934Natur.134...65W. doi:10.1038/134065a0. S2CID 4022911.
- ↑ Wald, George (11 October 1968). "Molecular basis of visual excitation". Science. 162 (3850): 230–239. Bibcode:1968Sci...162..230W. doi:10.1126/science.162.3850.230. PMID 4877437.
- ↑ Morton, R. A.; Goodwin, T. W. (1 April 1944). "Preparation of Retinene in Vitro". Nature. 153 (3883): 405–406. Bibcode:1944Natur.153..405M. doi:10.1038/153405a0. S2CID 4111460.
- ↑ von Lintig, Johannes; Vogt, Klaus (2000). "Filling the Gap in Vitamin A Research: Molecular Identification of An Enzyme Cleaving Beta-carotene to Retinal". Journal of Biological Chemistry. 275 (16): 11915–11920. doi:10.1074/jbc.275.16.11915. PMID 10766819.
- ↑ Woggon, Wolf-D. (2002). "Oxidative cleavage of carotenoids catalyzed by enzyme models and beta-carotene 15,15'-monooxygenase". Pure and Applied Chemistry. 74 (8): 1397–1408. doi:10.1351/pac200274081397.
- ↑ Lidén, M; Eriksson, U (2006). "Understanding Retinol Metabolism: Structure and Function of Retinol Dehydrogenases". Journal of Biological Chemistry. 281 (19): 13001–13004. doi:10.1074/jbc.R500027200. PMID 16428379.
- ↑ Duester, Gregg (September 2008). "Retinoic Acid Synthesis and Signaling during Early Organogenesis". Cell. 134 (6): 921–931. doi:10.1016/j.cell.2008.09.002. PMC 2632951. PMID 18805086.
- 1 2 Kiser, Philip D.; Palczewski, Krzysztof (2019). "Structural biology of 11-cis-retinaldehyde production in the classical visual cycle". Journal of Biological Chemistry. 294 (21): 8295–8309. doi:10.1074/jbc.REV118.006536. PMC 6440480. PMID 30352831.
{{cite journal}}: نگهداری یادکرد:doi رایگان بینشان (رده) - ↑ Bownds, Deric (December 1967). "Site of Attachment of Retinal in Rhodopsin". Nature. 216 (5121): 1178–1181. Bibcode:1967Natur.216.1178B. doi:10.1038/2161178a0. PMID 4294735. S2CID 1657759.
- ↑ Seki, Takaharu; Isono, Kunio; Ito, Masayoshi; Katsuta, Yuko (1994). "Flies in the Group Cyclorrhapha Use (3S)-3-Hydroxyretinal as a Unique Visual Pigment Chromophore". European Journal of Biochemistry. 226 (2): 691–696. doi:10.1111/j.1432-1033.1994.tb20097.x. PMID 8001586.
- ↑ Moiseyev, Gennadiy; Chen, Ying; Takahashi, Yusuke; Wu, Bill X.; Ma, Jian-xing (2005). "RPE65 is the isomerohydrolase in the retinoid visual cycle". Proceedings of the National Academy of Sciences. 102 (35): 12413–12418. doi:10.1073/pnas.0503460102. PMC 1194921. PMID 16116091.
- ↑ Travis, Gabriel H.; Golczak, Marcin; Moiseyev, Gennadiy; Palczewski, Krzysztof (2007). "Diseases Caused by Defects in the Visual Cycle: Retinoids as Potential Therapeutic Agents". Annual Review of Pharmacology and Toxicology. 47: 469–512. doi:10.1146/annurev.pharmtox.47.120505.105225. PMC 2442882. PMID 16968212.
- ↑ "The Nobel Prize in Physiology or Medicine 1967". Nobel Prize Outreach. Retrieved 2026-09-01.
پیوند به بیرون

- آپوکاروتنوئیدها
- آلدهیدها
- ترارسانی پیام
- دید
- رتینوئیدها
- سیکلوهگزنها
- ویتامین آ
- رنگدانههای فتوسنتزی