ماهی ژرفازی
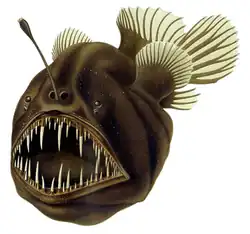
ماهیان ژرفازی یا ماهیان اعماق دریا (Deep-sea fish) ماهیهایی هستند که در تاریکی زیر آبهای سطحیِ روشن از نور خورشید، یعنی پایینتر از منطقه اپیپلاژیک یا منطقه نوردار دریا زندگی میکنند. ماهی فانوسی تا حد زیادی رایجترین ماهی اعماق دریا است. سایر ماهیان اعماق دریا شامل ماهی چراغقوهای، کوسه کوکیبر، دهانموییان، قلابچهماهی، ماهی افعی و برخی گونههای ماهی زغالماهی میشوند.
فقط حدود ۲ درصد از گونههای شناختهشدهٔ دریایی در محیط پلاژیک ساکن هستند. این بدان معناست که آنها در ستون آب زندگی میکنند، برخلاف جانداران بنتیک که در بستر دریا یا روی آن زندگی میکنند.[۲] جانداران اعماق دریا بهطور کلی در مناطق باتیپلاژیک (به عمق ۱–۴ کیلومتر (۰٫۶۲–۲٫۴۹ مایل)) و آبیسوپلاژیک (به عمق ۴–۶ کیلومتر (۲٫۵–۳٫۷ مایل)) ساکن هستند. با این حال، ویژگیهای جانداران اعماق دریا، مانند زیستتابی را میتوان در منطقهٔ مزوپلاژیک (به عمق ۲۰۰–۱٬۰۰۰ متر (۶۶۰–۳٬۲۸۰ فوت)) نیز مشاهده کرد. منطقهٔ مزوپلاژیک منطقهٔ کمنور (disphotic) است، به این معنا که نور در آنجا بسیار کم اما همچنان قابلاندازهگیری است. لایهٔ حداقل اکسیژن بسته به نقطهٔ اقیانوس، جایی بین عمق ۷۰۰ تا ۱٬۰۰۰ متری وجود دارد. این ناحیه همچنین جایی است که مواد مغذی بیشترین فراوانی را دارند. مناطق باتیپلاژیک و آبیسوپلاژیک بینور (aphotic) هستند، به این معنا که هیچ نوری به این ناحیه از اقیانوس نفوذ نمیکند. این مناطق حدود ۷۵ درصد از فضای قابل سکونت اقیانوس را تشکیل میدهند.[۴]
منطقهٔ اپیپلاژیک (به عمق ۰ تا ۲۰۰ متر یا ۰ تا ۶۵۰ فوت) ناحیهای است که نور به آب نفوذ میکند و فتوستنتز رخ میدهد. این ناحیه به عنوان منطقهٔ نوردار (photic zone) نیز شناخته میشود. از آنجا که این منطقه معمولاً تنها چند صد متر پایینتر از آب امتداد مییابد، اعماق دریا که حدود ۹۰ درصد از حجم اقیانوس را تشکیل میدهد، در تاریکی قرار دارد. اعماق دریا همچنین محیطی فوقالعاده خشن است، با دماهایی که بهرغم کاهش تا −۱٫۸ درجه سلسیوس (۲۹ درجه فارنهایت)، به ندرت از ۳ درجه سلسیوس (۳۷ درجه فارنهایت) تجاوز میکنند (به استثنای اکوسیستمهای منافذ گرمابی که میتوانند از ۳۵۰ درجه سلسیوس یا ۶۶۲ درجه فارنهایت فراتر روند)، سطوح پایین اکسیژن، و فشارهایی بین ۲۰ تا ۱۰۰۰ اتمسفر (۲ تا ۱۰۰ مگاپاسکال، ۳۰۰ تا ۱۴٬۵۰۰ پوند بر اینچ مربع).[۶]
تکامل
گمانهزنی شده است که اکوسیستمهای اعماق دریا پیش از افزایش ورود مواد مغذی به اقیانوس در طول ژوراسیک پسین و کرتاسه پیشین به دنبال ظهور نهاندانگان در خشکی، ممکن است برای حیات مهرهداران نامهماننواز بوده باشند؛ این رویداد منجر به افزایش حیات بیمهتران عمیق شد و به ماهیان اجازه داد به نوبهٔ خود این اکوسیستمها را استعمار کنند. با این حال، برخی از ماهیان مدرن اعماق دریا، مانند کلمماهیان، نوادگان دودمانهای بسیار کهنتری هستند که نشان میدهد استعمار بسیار زودترِ اعماق دریا توسط مهرهداران ممکن است رخ داده باشد، هرچند هیچ شواهد فسیلی از آن شناخته نشده است.[۷][۸]
قدیمیترین رکوردهای شناختهشده از ماهیان اعماق دریا، آثار فسیلی از رفتار تغذیه و شنا هستند که به نئوتلئوستهای ناشناس (قابل انتساب به ایکنوجنسهای Piscichnus و Undichna) نسبت داده میشوند و متعلق به کرتاسه پیشین (با قدمت ۱۳۰ میلیون سال) در شیل پالومبینی ایتالیا هستند؛ این سازند احتمالاً در دشت آبیسال اقیانوس پیمونت-لیگوریای پیشین رسوب کرده است. پیش از کشف این فسیلها، هیچ شاهدی بر وجود ماهیان استخوانی اعماق دریا با قدمت بیش از ۵۰ میلیون سال در پالئوژن وجود نداشت.[۷][۸] منشأ کرتاسهای برای بیشتر ماهیان مدرن اعماق دریا با مطالعات فیلوژنتیکی مانند مطالعات ماهیان اولوفیفرم بیشتر تأیید شده است، که نشان میدهد بسیاری از دودمانهای اعماق دریای این گروهها در همین دوران سرچشمه گرفتهاند.[۹]
اگرچه رکوردهای شیل پالومبینی قدیمیترین رکوردهای ماهیان استخوانی اعماق دریا را نشان میدهند، اما سازندهایی که فسیلهای کوسههای آبهای عمیق را حفظ کردهاند نیز از اواخر دورهٔ کرتاسه شناخته شدهاند. این موارد شامل سازند نورثکامبرلند در کانادا و رسوبات همسن در آنگولا میشود که هر دو فسیلهایی از تاکسونهایی مانند هگزانشیدها، کلامیدوسلاچیدها و کوسههای گربهای را حفظ کردهاند؛ این ماهیان امروزه از زیستگاههای آبهای عمیق شناخته میشوند اما در سایر سازندهای آن زمان کمیاب هستند.[۱۰] سازندهای پالئوژن حاوی دندانهای فسیلی کوسههای اعماق دریا از نیوزیلند برای اواسط پالئوسن، و سازندهایی در دانمارک، فرانسه، اتریش و مراکش در طول ائوسن شناخته شدهاند.[۱۱] دریای پاراتتیس همچنان تا میوسن از کوسهها و پرتوماهیان آبهای عمیق پشتیبانی میکرد که در سازندهایی در مجارستان حفظ شدهاند.[۱۲] در طول پالئوژن، برخی سازندهای برجسته که نمونههای خوشساختاری از ماهیان استخوانی اعماق دریا را حفظ کردهاند، شناخته شدهاند. این موارد شامل لاگرشتات مونته سولانه در ایتالیای ائوسن پیشین میشود که یک زیستگاه باتیپلاژیک را حفظ کرده که احتمالاً ۳۰۰–۶۰۰ متر (۹۸۰–۱٬۹۷۰ فوت) زیر دریا رسوب کرده است، و همچنین سازند پبده در ایران متعلق به ائوسن پسین. محیطهای اعماق دریای حفظشده توسط هر دو سازند از طریق فراوانی ماهیان فسیلی استومیفرم مشهود است.[۱۳][۱۴] سازندهای نئوژن قابلتوجهی که فسیلهای ماهیان استخوانی اعماق دریا را حفظ کردهاند از میوسن ایتالیا، ژاپن و کالیفرنیا شناخته شدهاند.[۱۵][۱۶][۱۷]
محیط زیست
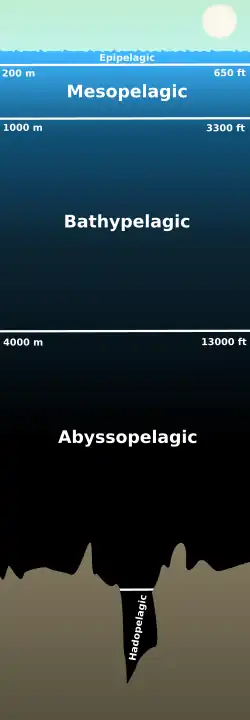
در اقیانوس عمیق، آبها بسیار پایینتر از منطقهٔ اپیپلاژیک امتداد یافته و از انواع بسیار متفاوتی از ماهیان پلاژیک که برای زندگی در این مناطق عمیقتر سازگار شدهاند، پشتیبانی میکنند.[۱۹] در آبهای عمیق، برف دریایی جریانی پیوسته از بقایای عمدتاً آلی است که از لایههای بالایی ستون آب فرو میریزد. منشأ آن در فعالیتهای درون منطقهٔ نوردارِ مولد نهفته است. برف دریایی شامل پلانکتونهای مرده یا در حال مرگ، آغازیان (دیاتومهها)، مواد مدفوعی، ماسه، دوده و سایر گرد و غبار معدنی است. این «دانههای برف» در طول زمان رشد میکنند و ممکن است به قطر چند سانتیمتر برسند و پیش از رسیدن به بستر اقیانوس، هفتهها در سفر باشند. با این حال، بیشتر اجزای آلی برف دریایی توسط میکروبها، زئوپلانکتونها و سایر جانوران فیلترکننده در طول نخستین ۱٬۰۰۰ متر (۳٬۳۰۰ فوت) سفر خود، یعنی در منطقهٔ اپیپلاژیک، مصرف میشوند. به این ترتیب، برف دریایی را میتوان به عنوان پایهٔ اکوسیستمهای مزوپلاژیک و کفزی (بنتیک) اعماق دریا در نظر گرفت: از آنجا که نور خورشید نمیتواند به آنها برسد، جانداران اعماق دریا به شدت به برف دریایی به عنوان منبع انرژی متکی هستند. از آنجا که هیچ نوری در اعماق دریا وجود ندارد (بینور یا آفوتیک)، کمبود تولیدکنندگان اولیه وجود دارد؛ بنابراین، بیشتر جانداران در منطقهٔ باتیپلاژیک به برف دریایی از مناطق بالاتر در ستون عمودی متکی هستند.
برخی از گروههای پلاژیک اعماق دریا، مانند خانوادههای ماهیان فانوسی، ریجهدها، ماهیان تبری دریایی و لایتهفیشها، گاهی اوقات «شبه اقیانوسزی» (pseudoceanic) نامیده میشوند زیرا به جای داشتن توزیع یکنواخت در آبهای آزاد، در اطراف وازههای ساختاری، بهویژه کوههای دریایی و روی شیبهای قارهای، با فراوانی بهطور قابلتوجهی بالاتری رخ میدهند. این پدیده با فراوانی مشابه گونههای طعمه که آنها نیز به این ساختارها جذب میشوند، توضیح داده میشود.
فشار هیدرواستاتیک به ازای هر ۱۰ متر (۳۳ فوت) عمق، ۱ اتمسفر (۰٫۱ مگاپاسکال) افزایش مییابد.[۲۱] جانداران اعماق دریا فشار یکسانی در بدن خود دارند که از بیرون به آنها وارد میشود، بنابراین توسط فشار شدید له نمیشوند. با این حال، فشار داخلی بالای آنها منجر به کاهش سیالیت غشاهای آنها میشود زیرا مولکولها به هم فشرده میشوند. سیالیت در غشاهای سلولی کارایی عملکردهای بیولوژیکی، به ویژه تولید پروتئینها را افزایش میدهد، بنابراین جانداران با افزایش نسبت اسیدهای چرب غیراشباع در لیپیدهای غشاهای سلولی با این شرایط سازگار شدهاند.[۲۳] علاوه بر تفاوت در فشار داخلی، این جانداران تعادل متفاوتی بین واکنشهای متابولیک خود در مقایسه با جاندارانی که در منطقهٔ اپیپلاژیک زندگی میکنند، ایجاد کردهاند. دیوید وارتون، نویسندهٔ کتاب «زندگی در مرزها: جانداران در محیطهای بحرانی» (Life at the Limits: Organisms in Extreme Environments)، خاطرنشان میکند: «واکنشهای بیوشیمیایی با تغییرات حجم همراه هستند. اگر واکنشی منجر به افزایش حجم شود، توسط فشار مهار میشود، در حالی که اگر با کاهش حجم همراه باشد، تقویت میشود».[۲۵] این بدان معناست که فرآیندهای متابولیک آنها باید در نهایت حجم جاندار را تا حدی کاهش دهد.
بیشتر ماهیهایی که در این محیط خشن تکامل یافتهاند قادر به زنده ماندن در شرایط آزمایشگاهی نیستند و تلاشها برای نگهداری آنها در اسارت منجر به مرگشان شده است. جانداران اعماق دریا حاوی فضاهای پر از گاز (واکوئلها) هستند. گاز تحت فشار بالا متراکم شده و تحت فشار کم منبسط میشود. به همین دلیل، شناخته شده است که این جانداران در صورت آمدن به سطح آب منفجر میشوند.[۲۷]
ویژگیها
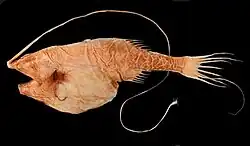
ماهیان اعماق دریا سازگاریهای مختلفی برای زنده ماندن در این منطقه تکامل دادهاند. از آنجا که بسیاری از این ماهیها در مناطقی زندگی میکنند که هیچ روشنایی طبیعی وجود ندارد، آنها نمیتوانند صرفاً برای یافتن طعمه، جفت و اجتناب از شکارچیان به بینایی خود اتکا کنند؛ ماهیهای اعماق دریا بهطور متناسب با منطقهٔ فوقالعاده کمنور (زیر-نوردار) که در آن زندگی میکنند، تکامل یافتهاند. بسیاری از این جانداران کور هستند و برای شکار غذا و اجتناب از شکار شدن، به سایر حواس خود مانند حساسیت به تغییرات فشار محلی و بویایی اتکا میکنند. آنهایی که کور نیستند دارای چشمهای بزرگ و حساسی هستند که میتوانند از نور زیستتاب استفاده کنند. این چشمها میتوانند تا ۱۰۰ برابر بیشتر از چشم انسان نسبت به نور حساس باشند. رودوپسین (Rh1) پروتئینی است که در سلولهای استوانهای چشم یافت میشود و به حیوانات کمک میکند در نور کم ببینند. در حالی که بیشتر مهرهداران معمولاً یک ژن اپسین Rh1 دارند، برخی از ماهیان اعماق دریا چندین ژن Rh1 دارند و یک گونه، یعنی خارباله نقرهای (Diretmus argenteus), دارای ۳۸ ژن است.[۲۸] این تکثیر ژنهای Rh1 ممکن است به ماهیان اعماق دریا کمک کند تا در اعماق اقیانوس ببینند. همچنین، برای اجتناب از شکار شدن، بسیاری از گونهها تیره رنگ هستند تا با محیط خود همرنگ شوند.[۳۰]
بسیاری از ماهیان اعماق دریا زیستتاب هستند و چشمهای بسیار بزرگی دارند که با تاریکی سازگار شدهاند. جانداران زیستتاب قادرند از طریق برانگیختگی مولکولهای لوسیفرین که سپس نور تولید میکنند، بهطور بیولوژیکی نور تولید کنند. این فرایند باید در حضور اکسیژن انجام شود. این جانداران در منطقهٔ مزوپلاژیک و پایینتر از آن (۲۰۰ متر (۶۵۶ فوت) و پایینتر) رایج هستند. بیش از ۵۰ درصد از ماهیان اعماق دریا و همچنین برخی گونههای میگو و ماهی مرکب قادر به زیستتابی هستند. حدود ۸۰ درصد از این جانداران دارای فوتوفور هستند – سلولهای غدد نورزا که حاوی باکتریهای درخشان محصور شده با رنگهای تیره هستند. برخی از این فوتوفورها حاوی عدسیهایی هستند، بسیار شبیه به عدسیهای چشم انسان، که میتوانند تابش نور را تشدید یا تضعیف کنند. توانایی تولید نور تنها به ۱ درصد از انرژی جاندار نیاز دارد و اهداف زیادی دارد: برای جستجوی غذا و جذب طعمه مانند قلابچهماهی استفاده میشود؛ ادعای قلمرو از طریق گشتزنی؛ ارتباط و یافتن جفت، و حواسپرتی یا کور کردن موقت شکارچیان برای فرار. همچنین، در منطقهٔ مزوپلاژیک که مقداری نور هنوز به آن نفوذ میکند، برخی جانداران با روشن کردن شکم خود به گونهای که با رنگ و شدت نور از بالا مطابقت داشته باشد، خود را از دید شکارچیان زیر خود استتار میکنند تا هیچ سایهای ایجاد نشود. این تاکتیک به عنوان روشنایی متقابل (counter-illumination) شناخته میشود.[۳۲]
چرخهٔ زندگی ماهیان اعماق دریا میتواند منحصراً در آبهای عمیق باشد، اگرچه برخی گونهها در آبهای کمعمقتر متولد میشوند و پس از بلوغ غوطهور میشوند. صرف نظر از عمقی که تخمها و لاروها در آن اقامت دارند، آنها معمولاً پلاژیک هستند. این سبک زندگی پلانکتونی — شناور — به شناوری خنثی نیاز دارد. برای حفظ این حالت، تخمها و لاروها اغلب حاوی قطرات روغن در پلاسما خود هستند.[۳۴] هنگامی که این جانداران در حالت کاملاً بالغ خود هستند، به سازگاریهای دیگری برای حفظ موقعیت خود در ستون آب نیاز دارند. بهطور کلی، چگالی آب باعث رانش به بالا میشود — جنبهای از شناوری که باعث شناور شدن جانداران میشود. برای مقابله با این امر، چگالی یک جاندار باید بیشتر از آب اطراف باشد. بیشتر بافتهای جانوری چگالتر از آب هستند، بنابراین آنها باید تعادلی پیدا کنند تا شناور بمانند.[۳۶] بسیاری از جانداران کیسههای شنا (حفرات گاز) را برای شناور ماندن توسعه میدهند، اما به دلیل فشار بالای محیطشان، ماهیهای اعماق دریا معمولاً این اندام را ندارند. در عوض، آنها ساختارهایی شبیه به هیدروفویلها (بالکتهای هیدرودینامیکی) از خود بروز میدهند تا نیروی برآی هیدرودینامیکی را فراهم کنند. همچنین مشخص شده است که هرچه ماهی در عمق بیشتری زندگی کند، گوشت آن ژلاتینیتر و ساختار استخوانی آن حداقلیتر است. آنها چگالی بافت خود را از طریق محتوای چربی بالا، کاهش وزن اسکلتی — که از طریق کاهش اندازه، ضخامت و محتوای معدنی به دست میآید — کاهش میدهند و تجمع آب[۳۸] آنها را کندتر و کمچابکتر از ماهیهای سطحی میکند. شکلهای بدن ماهیهای اعماق دریا بهطور کلی برای انفجارهای دورهای شنا کردن بهتر سازگار شدهاند تا شنای مداوم.[۳۹]
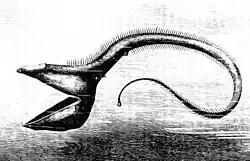
به دلیل سطح ضعیف نور فتوسنتزی که به محیطهای اعماق دریا میرسد، بیشتر ماهیها باید برای تأمین مواد مغذی به مادهٔ آلی که از سطوح بالاتر سقوط میکند، یا در موارد نادر، به منافذ گرمابی متکی باشند. این امر اعماق دریا را بسیار فقیرتر از مناطق کمعمقتر از نظر تولید میسازد. همچنین، جانوران در محیط پلاژیک پراکنده هستند و غذا بهطور مکرر به دست نمیآید. به همین دلیل، جانداران به سازگاریهایی نیاز دارند که به آنها اجازهٔ بقا دهد. برخی دارای شاکهای بلندی هستند تا به آنها کمک کند طعمه را پیدا کنند یا در تاریکی مطلق اقیانوس عمیق جفت جذب کنند. بهویژه قلابچهماهی اعماق دریا دارای یک سازگاری شبیه به چوب ماهیگیری است که از صورتش بیرون زده است و در انتهای آن یک تکه پوست زیستتاب قرار دارد که مانند کرم میلرزد تا طعمهٔ خود را فریب دهد. برخی باید ماهیهای دیگری را که هماندازه یا بزرگتر از خودشان هستند مصرف کنند و به سازگاریهایی نیاز دارند تا به هضم کارآمد آنها کمک کند. دندانهای تیز بزرگ، فکهای لولایی، دهانهای نامتناسب بزرگ و بدنهای قابل انبساط تنها چند مورد از ویژگیهایی هستند که ماهیان اعماق دریا برای این منظور دارند.[۴۰] مارماهی بلعنده (مارماهی گلپر) نمونهای از جانداری است که این ویژگیها را نشان میدهد.
ماهیهای مناطق مختلف پلاژیک و بنتیک آبهای عمیق از نظر فیزیکی ساختار یافتهاند و به روشهایی رفتار میکنند که بهطور چشمگیری با یکدیگر متفاوت است. گروههای گونههای همزیست در هر منطقه به نظر میرسد به روشهای مشابهی عمل میکنند، مانند پلانکتونخوارهای کوچک مهاجرتکنندهٔ عمودی مزوپلاژیک، قلابچهماهیهای باتیپلاژیک و دمموشیهای بنتیک آبهای عمیق.[۴۲]
گونههای بالهشعاعی با بالههای خاردار در میان ماهیان اعماق دریا نادر هستند، که نشان میدهد ماهیهای اعماق دریا باستانی هستند و چنان با محیط خود سازگار شدهاند که تهاجم ماهیهای مدرنتر ناموفق بوده است.[۴۳] چند بالهشعاعی که وجود دارند عمدتاً در راستهٔ بریمماهیشکلان و درازبالهشکلان هستند که آنها نیز اشکال باستانی هستند. بیشتر ماهیان پلاژیک اعماق دریا به راستههای خود تعلق دارند، که نشاندهندهٔ تکامل طولانی در محیطهای اعماق دریا است. در مقابل، گونههای بنتیک آبهای عمیق در راستههایی قرار دارند که شامل بسیاری از ماهیهای مرتبط با آبهای کمعمق است.[۴۵]
| گونهها بر اساس منطقهٔ پلاژیک | |
|---|---|
| بسیاری از گونهها به صورت روزانه طی مهاجرتهای عمودی بین مناطق جابجا میشوند. در این جدول آنها در میانیترین یا عمیقترین منطقهای که بهطور مرتب یافت میشوند، فهرست شدهاند. | |
| منطقه | گونهها و گروههای گونهای شامل… |
| اپیپلاژیک[۴۶] |
|
| مزوپلاژیک | ماهی فانوسی، اوپا، نیزهماهی پوزهدراز، بارهای، ریجهد، دندانشمشیری، فکشلنگ چراغراهنمایی، ماهی تبری دریایی[۴۷] |
| باتیپلاژیک | عمدتاً دهانمویی و قلابچهماهی. همچنین دنداننیش، ماهی افعی، بلعنده سیاه، ماهی تلسکوپی، فکچکشی، دندانخنجری، باراکودینا، ماهی شمشیرزن سیاه، مارماهی تکهدم نوکدار، تاجماهی تکشاخ، مارماهی پلیکانی، نهنگماهی شلبافت. |
| بنتوپلاژیک[۴۶] | دمموشیها و بروتولاها به ویژه فراوان هستند. |
| کفزی (بنتیک) | ماهیهای تخت، مکندهماهی دهانگرد، مارماهیپوت، چشمسبز، پرتوماهی، لامپفیش، و ماهی خفاشی[۴۶] |
| ساختار مقایسهای ماهیان پلاژیک | ||||
|---|---|---|---|---|
| اپیپلاژیک | مزوپلاژیک | باتیپلاژیک | کفزی اعماق دریا | |
| ماهیچهها | بدن ماهیچهای، استخوانهای استخوانیشده، فلسها، آبششها و سیستمهای عصبی مرکزی به خوبی توسعهیافته، و قلب و کلیههای بزرگ. | به ضعیف توسعهیافته، شل و ول | ||
| اسکلت | استخوانهای قوی و استخوانیشده | ضعیف، با استخوانیشدن حداقلی | ||
| فلسها | بله | ندارد | ||
| سیستمهای عصبی | به خوبی توسعهیافته | فقط خط جانبی و بویایی | ||
| چشمها | بزرگ و حساس | کوچک و ممکن است کار نکند | متغیر (از به خوبی توسعهیافته تا غایب) | |
| فوتوفورها | غایب | رایج | رایج | معمولاً غایب |
| آبششها | به خوبی توسعهیافته | |||
| کلیهها | بزرگ | کوچک | ||
| قلب | بزرگ | کوچک | ||
| کیسه هوا | ماهیان مهاجر عمودی دارای کیسه هوا هستند | کاهشیافته یا غایب | متغیر (از به خوبی توسعهیافته تا غایب) | |
| اندازه | معمولاً کمتر از ۲۵ سانتیمتر | متغیر، گونههای بزرگتر از یک متر غیرمعمول نیستند | ||
ماهیان مزوپلاژیک
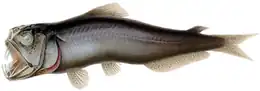
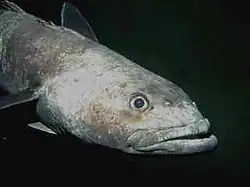
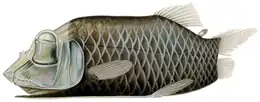
در پایین منطقهٔ اپیپلاژیک، شرایط به سرعت تغییر میکند. بین ۲۰۰ متر و حدود ۱۰۰۰ متر، نور به محو شدن ادامه میدهد تا اینکه تقریباً هیچ نوری باقی نمیماند. دماها از طریق یک ترموقلید به دماهایی بین ۳٫۹ و ۷٫۸ درجه سلسیوس (۳۹٫۰ و ۴۶٫۰ درجه فارنهایت) کاهش مییابد. این منطقه، منطقهٔ گرگومیش یا مزوپلاژیک است. فشار به افزایش خود ادامه میدهد، با نرخ ۱ اتمسفر (۰٫۱ مگاپاسکال) به ازای هر ۱۰ متر (۳۳ فوت)، در حالی که غلظت مواد مغذی به همراه اکسیژن محلول و سرعت گردش آب کاهش مییابد.[۵۱]
اپراتورهای سونار، با استفاده از فناوری تازه توسعهیافتهٔ سونار در طول جنگ جهانی دوم، از پدیدهای که به نظر میرسید یک بستر کاذب دریایی در عمق ۳۰۰–۵۰۰ متر (۹۸۴–۱٬۶۴۰ فوت) در طول روز و در عمق کمتر در شب باشد، شگفتزده شدند. مشخص شد که این پدیده ناشی از میلیونها جاندار دریایی، بهویژه ماهیان کوچک مزوپلاژیک دارای کیسههای هوا است که سونار را بازمیتابانند. این جانداران در هنگام غروب برای تغذیه از پلانکتونها به سمت آبهای کمعمقتر مهاجرت میکنند. هنگامی که ماه کامل است، این لایه عمیقتر است و هنگامی که ابرها از روی ماه عبور میکنند، میتواند کمعمقتر شود. این پدیده به نام لایه پراکندگی عمقی شناخته شده است.[۵۲]
بیشتر ماهیان مزوپلاژیک مهاجرتهای عمودی روزانه انجام میدهند و شبها به منطقهٔ اپیپلاژیک میروند، که اغلب مهاجرتهای مشابه زئوپلانکتونها را دنبال میکنند و برای ایمنی در طول روز به اعماق بازمیگردند.[۵۳][۵۴] این مهاجرتهای عمودی اغلب در فواصل عمودی بزرگ انجام میشوند و با کمک یک کیسه هوا صورت میگیرند.[۴۳] کیسه هوا هنگامی که ماهی میخواهد به سمت بالا حرکت کند باد میشود و با توجه به فشارهای بالا در منطقهٔ مزوپلاژیک، این امر مستلزم انرژی قابلتوجهی است. با صعود ماهی، فشار کیسه هوا باید تنظیم شود تا از ترکیدن آن جلوگیری شود. هنگامی که ماهی میخواهد به اعماق بازگردد، کیسه هوا خالی میشود.[۵۵] برخی از ماهیان مزوپلاژیک مهاجرتهای روزانه را از طریق ترموقلید انجام میدهند، جایی که دما بین ۵۰ و ۶۹ درجه فارنهایت (۱۰ و ۲۱ درجه سلسیوس) تغییر میکند، و بنابراین تحمل قابلتوجهی برای تغییرات دما نشان میدهند.[۵۷]
این ماهیها دارای بدنهای ماهیچهای، استخوانهای استخوانیشده، فلسها، آبششها و سیستمهای عصبی مرکزی به خوبی توسعهیافته، و قلب و کلیههای بزرگ هستند. پلانکتونخوارهای مزوپلاژیک دارای دهانهای کوچک با خارهای آبششی ظریف هستند، در حالی که ماهیخوارها دهانهای بزرگتر و خارهای آبششی ضخیمتر دارند.[۵۸]
ماهیان مزوپلاژیک برای یک زندگی فعال در شرایط کمنور سازگار شدهاند. بیشتر آنها شکارچیان بینایی با چشمهای بزرگ هستند. برخی از ماهیهای آبهای عمیقتر دارای چشمهای لولهای با عدسیهای بزرگ و فقط سلول استوانهای هستند که به سمت بالا نگاه میکنند. این امر دید دوچشمی و حساسیت زیادی به سیگنالهای نوری کوچک میدهد.[۵۹] این سازگاری دید انتهایی را به قیمت دید جانبی بهبود میبخشد و به شکارچی اجازه میدهد ماهی مرکب، کوتلفیش و ماهیهای کوچکتر را که در برابر تاریکی ملایم بالا سایه انداختهاند، شناسایی کند.
ماهیان مزوپلاژیک معمولاً فاقد خارهای دفاعی هستند و از رنگ برای استتار خود در برابر سایر ماهیها استفاده میکنند. شکارچی کمینگر تیره، سیاه یا قرمز هستند. از آنجا که طول موجهای بلندتر و قرمز رنگ نور به اعماق دریا نمیرسند، قرمز عملاً همان عملکرد سیاه را دارد. اشکال مهاجر از رنگهای نقرهای سایهروشن استفاده میکنند. روی شکم خود، آنها اغلب فوتوفورهایی را نشان میدهند که نور ضعیفی تولید میکنند. برای یک شکارچی از پایین، که به سمت بالا نگاه میکند، این زیستتابی سیلوئت (طرح) ماهی را استتار میکند. با این حال، برخی از این شکارچیان دارای عدسیهای زردی هستند که نور محیطی (فاقد قرمز) را فیلتر میکنند و زیستتابی را قابل مشاهده میسازند.[۶۰]
ماهی شبحپوزه قهوهای، گونهای از بارهای، تنها مهرهداری است که شناخته شده است به جای عدسی، از آینه برای متمرکز کردن تصویر در چشم خود استفاده میکند.[۶۱][۶۲]
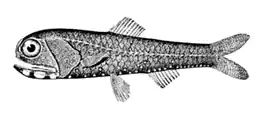
نمونهبرداری با ترال عمیق نشان میدهد که ماهی فانوسی تا ۶۵ درصد از کل زیستتوده ماهیان اعماق دریا را تشکیل میدهند.[۶۴] در واقع، ماهیان فانوسی از جمله گستردهترین، پرجمعیتترین و متنوعترین مهرهداران هستند که نقش بومشناختی مهمی به عنوان طعمه برای جانداران بزرگتر ایفا میکنند. زیستتودهٔ جهانی تخمینی ماهیان فانوسی ۵۵۰ تا ۶۶۰ میلیون تن است که چندین برابر کل صید ماهیگیری جهان است. ماهیان فانوسی همچنین سهم زیادی از زیستتودهٔ مسئول لایه پراکندگی عمقی اقیانوسهای جهان را به خود اختصاص میدهند.[۶۵]
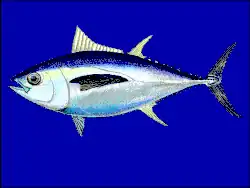
ماهی تن چشمدرشت یک گونهٔ اپیپلاژیک/مزوپلاژیک است که از ماهیهای دیگر تغذیه میکند. ردیابی ماهوارهای نشان داده است که ماهیان تن چشمدرشت اغلب زمان طولانیتری را در طول روز در اعماق پایینتر از سطح آب میگذرانند و گاهی اوقات تا عمق ۵۰۰ متر (۱٬۶۴۰ فوت) شیرجه میزنند. تصور میشود این حرکتها پاسخ به مهاجرتهای عمودی جانداران طعمه در لایه پراکندگی عمقی باشد[cite: 1].
 نیزهماهی پوزهدراز. نیزهماهیها شکارچیان کمینگری هستند که تمام وقت خود را در منطقهٔ مزوپلاژیک میگذرانند. آنها از بزرگترین ماهیان مزوپلاژیک هستند (تا ۲ متر (۶٫۶ فوت) طول دارند).[۶۸]
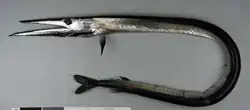 دندانخنجری هنگامی که سایر ماهیان مزوپلاژیک را با دندانهای خنجرمانند خود گاز میگیرد، آنها را فلج میکند[۶۹]
ماهیان باتیپلاژیک
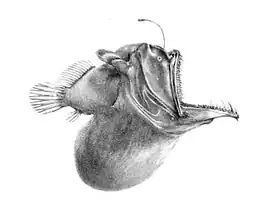
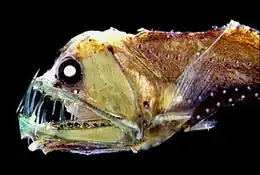
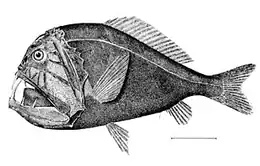
در پایین منطقهٔ مزوپلاژیک، تاریکی مطلق حکمفرماست. این منطقهٔ نیمهشب (یا منطقهٔ باتیپلاژیک) است که از عمق ۱٬۰۰۰ متر (۳٬۲۸۱ فوت) تا کف منطقهٔ بنتیک آبهای عمیق امتداد دارد. اگر آب بهطور استثنایی عمیق باشد، منطقهٔ پلاژیک پایینتر از ۴٬۰۰۰ متر (۱۳٬۱۲۳ فوت) گاهی اوقات نیمهشب پایینی (یا منطقهٔ آبیسوپلاژیک) نامیده میشود. دماها در این ناحیه بین ۱ تا ۴ درجه سلسیوس (۳۴ تا ۳۹ درجه فارنهایت) متغیر است و کاملاً بینور (aphotic) است.
شرایط در سراسر این مناطق تا حدودی یکنواخت است؛ تاریکی کامل است، فشار خردکننده است و دما، مواد مغذی و سطوح اکسیژن محلول همگی پایین هستند.[۷۶]
ماهیان باتیپلاژیک سازگاریهای ویژهای برای مقابله با این شرایط دارند؛ آنها دارای سوختوساز کند و رژیمهای غذایی غیرتخصصی هستند و تمایل دارند هر چیزی را که به دستشان میرسد بخورند. آنها ترجیح میدهند به جای اتلاف انرژی برای جستجوی غذا، بنشینند و منتظر آن بمانند. رفتار ماهیان باتیپلاژیک را میتوان با رفتار ماهیان مزوپلاژیک مقایسه کرد. ماهیان مزوپلاژیک اغلب بسیار متحرک هستند، در حالی که ماهیان باتیپلاژیک تقریباً همگی شکارچیان کمینگر هستند و معمولاً انرژی کمی برای حرکت مصرف میکنند.[۷۸]
ماهیان غالب باتیپلاژیک شامل دهانموییان کوچک و قلابچهماهیان هستند؛ دنداننیشها، ماهیان افعی، دندانخنجریها و باراکودینا نیز رایج هستند. این ماهیها کوچک هستند، بسیاری از آنها حدود ۱۰ سانتیمتر (۳٫۹ اینچ) طول دارند و تعداد کمی از آنها بلندتر از ۲۵ سانتیمتر (۹٫۸ اینچ) هستند. آنها بیشتر وقت خود را با صبوری در ستون آب منتظر میمانند تا طعمه ظاهر شود یا توسط فسفرسنسهای خود جذب شوند. انرژی اندکی که در منطقهٔ باتیپلاژیک در دسترس است، به شکل خردهمواد (دتریوس)، مواد مدفوعی، و بیمهرهها یا ماهیان مزوپلاژیک گاهبهگاه از بالا به پایین فیلتر میشود.[۷۹] حدود ۲۰ درصد از غذایی که منشأ آن در منطقهٔ اپیپلاژیک است به منطقهٔ مزوپلاژیک سقوط میکند،[۵۲] اما تنها حدود ۵ درصد به منطقهٔ باتیپلاژیک میرسد.[۷۰]
ماهیان باتیپلاژیک کمتحرک هستند و برای مصرف حداقل انرژی در زیستگاهی با غذای بسیار کم یا انرژی در دسترس، بدون نور خورشید و تنها با اتکا به زیستتابی سازگار شدهاند. بدن آنها کشیدهشده با ماهیچههای ضعیف و آبکی و ساختارهای استخوانی است. از آنجا که بخش عمدهای از ماهی را آب تشکیل میدهد، آنها توسط فشارهای عظیم در این اعماق متراکم نمیشوند. آنها اغلب دارای فکهای لولایی و قابلگسترش با دندانهای برگشته هستند. آنها لزج هستند و فلس ندارند. دستگاه عصبی مرکزی به سیستمهای خط جانبی و بویایی محدود شده است، چشمها کوچک هستند و ممکن است کار نکنند، و آبششها، کلیهها، قلبها و کیسههای شنا کوچک هستند یا وجود ندارند.[۷۰][۸۰] اینها همان ویژگیهایی هستند که در لارو ماهیها یافت میشوند، که نشان میدهد در طول تکامل، ماهیان باتیپلاژیک این ویژگیها را از طریق نوزادپایی (نوتنی) به دست آوردهاند. همانند لاروها، این ویژگیها به ماهی اجازه میدهد با صرف انرژی اندک در آب معلق بماند.[۸۱]
علیرغم ظاهر درندهخوی خود، این اشکال بیشتر ماهیهای مینیاتوری با ماهیچههای ضعیف هستند و بسیار کوچکتر از آن هستند که تهدیدی برای انسانها محسوب شوند. استثنای اندازهٔ عموماً کوچک ماهیان باتیپلاژیک، Yokozuna slickhead (Narcetes shonanmaruae) است که در سال ۲۰۲۱ توصیف شد و بزرگترین ماهی استخوانی تماماً باتیپلاژیک شناختهشده با طول بیش از ۲٫۵ متر (۸٫۲ فوت) است.[۸۲]
کیسههای هوای ماهیان اعماق دریا یا غایب هستند یا به سختی کار میکنند و ماهیان باتیپلاژیک معمولاً مهاجرتهای عمودی انجام نمیدهند. پر کردن کیسههای هوا در چنین فشارهای عظیمی هزینههای انرژی سرسامآوری را به همراه دارد. برخی از ماهیان اعماق دریا دارای کیسههای هوایی هستند که در دوران جوانی و هنگام سکونت در منطقهٔ بالایی اپیپلاژیک عمل میکنند، اما وقتی ماهی به سمت زیستگاه بالغ خود به پایین میرود، این کیسهها پژمرده میشوند یا با چربی پر میشوند.[۸۳]
چند استثنای شناختهشده عبارتند از مارماهی بالهسیاه (Holcomycteronus profundissimus) که از عمق ۷۱۶۰ متری بازیابی شده است، و دمموشی آبیسال زبر (Coryphaenoides yaquinae) که در عمق ۷۲۵۹ متری یافت شده است. این گونهها همچنان دارای کیسههای هوای کارآمد هستند که به آنها اجازه میدهد چگالی استخوانی بالا و فکهای قوی را حفظ کنند.[۸۴]
مهمترین سیستمهای حسی معمولاً گوش داخلی است که به صدا پاسخ میدهد و خط جانبی که به تغییرات فشار آب پاسخ میدهد. سیستم بویایی نیز میتواند برای نرها که مادهها را از طریق بو پیدا میکنند مهم باشد.[۸۵] ماهیان باتیپلاژیک سیاهرنگ یا گاهی قرمز هستند و فوتوفورهای کمی دارند. هنگامی که فوتوفورها استفاده میشوند، معمولاً برای فریب دادن طعمه یا جذب جفت است. از آنجا که غذا بسیار کمیاب است، شکارچیان باتیپلاژیک در عادات غذایی خود انتخابی عمل نمیکنند، بلکه هر چیزی را که به اندازهٔ کافی نزدیک شود میقاپند. آنها این کار را با داشتن دهانی بزرگ با دندانهای تیز برای گرفتن طعمههای بزرگ و خارهای آبششی همپوشان انجام میدهند که مانع از فرار طعمههای کوچکی که بلعیده شدهاند میشود.[۸۶]
یافتن جفت در این منطقه آسان نیست. برخی از گونهها به زیستتابی وابستهاند، بهطوریکه الگوهای زیستتابی برای گونههای خاصی منحصربهفرد است. برخی دیگر نروماده (hermaphrodite) هستند که شانس آنها را برای تولید همزمان تخم و اسپرم در هنگام برخورد دو برابر میکند.[۷۰] قلابچهماهی ماده برای جذب نرها فرومون ترشح میکند. هنگامی که یک نر او را پیدا میکند، به او گاز میزند و هرگز رهایش نمیکند. هنگامی که نرِ گونهٔ قلابچهماهی Haplophryne mollis پوست یک ماده را گاز میگیرد، آنزیمی آزاد میکند که پوست دهان خودش و بدن ماده را هضم میکند و این جفت را تا جایی به هم جوش میدهد که هر دو سیستم گردش خون به هم متصل شوند. سپس نر تحلیل میرود و به چیزی بیش از یک جفت گناد تبدیل نمیشود. این دوجنسیتی جنسی شدید (sexual dimorphism) تضمین میکند که وقتی ماده آمادهٔ تخمریزی است، یک جفت بلافاصله در دسترس داشته باشد.[۸۷]
اشکال بسیاری غیر از ماهیها در منطقهٔ باتیپلاژیک زندگی میکنند، مانند ماهیهای مرکب، نهنگهای بزرگ، هشتپاها، اسفنجها، براکیوپودها، ستارههای دریایی، و اکینوئیدها، اما زندگی در این منطقه برای ماهیها دشوار است.
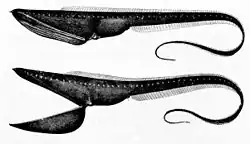 مارماهی پلیکانی از دهان بزرگ خود مانند یک تور با باز کردن فکها و شنا کردن به سمت طعمه استفاده میکند. این ماهی یک اندام لومینسانس در نوک دم خود دارد تا طعمه را جذب کند.
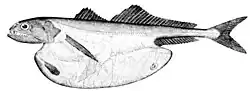 بلعنده سیاه، با معدهٔ قابل انبساط خود، به خاطر تواناییاش در بلعیدن کامل ماهیان استخوانی تا ده برابر جرم خود شناخته شده است.[۸۸][۸۹]
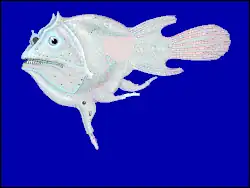 یک قلابچهماهی ماده Haplophryne mollis که نرهای متصلشده را به دنبال خود میکشد؛ نرهایی که تحلیل رفته و به یک جفت گناد تبدیل شدهاند تا زمانی که ماده آمادهٔ تخمریزی شود از آنها استفاده شود.
 یوکوزونا اسلیکههد بزرگترین ماهی استخوانی باتیپلاژیک شناختهشده است که طول آن به بیش از ۲۵۰ سانتیمتر (۸٫۲ فوت) میرسد.[۸۲]
سازگاری با فشار بالا
همانطور که ماهی عمیقتر در دریا پیش میرود، وزن آب بالای سر آن فشار هیدرواستاتیک فزایندهای را بر ماهی وارد میکند. این فشار افزایشیافته به ازای هر ۱۰ متر (۳۳ فوت) عمق، حدود یک اتمسفر (۰٫۱ مگاپاسکال) است. برای یک ماهی در کف منطقهٔ باتیپلاژیک، این فشار به حدود ۴۰۰ اتمسفر (۴۰ مگاپاسکال، ۶۰۰۰ پوند بر اینچ مربع) میرسد.[۹۰]
جانداران اعماق دریا دارای سازگاریهایی در سطوح سلولی و فیزیولوژیکی هستند که به آنها اجازه میدهد در محیطهای با فشار زیاد زنده بمانند. نداشتن این سازگاریها عمقی را که گونههای آبهای کمعمق میتوانند در آن فعالیت کنند محدود میکند. سطوح بالای فشار خارجی بر نحوهٔ انجام فرآیندهای متابولیک و واکنشهای بیوشیمیایی تأثیر میگذارد. تعادل بسیاری از واکنشهای شیمیایی توسط فشار مختل میشود، و فشار میتواند فرآیندهایی را که منجر به افزایش حجم میشوند مهار کند. آب، یک مؤلفهٔ کلیدی در بسیاری از فرآیندهای بیولوژیکی، بسیار مستعد تغییرات حجم است، عمدتاً به این دلیل که اجزای مایع سلولی بر ساختار آب تأثیر دارند؛ بنابراین، واکنشهای آنزیمی که تغییراتی را در سازماندهی آب ایجاد میکنند، بهطور مؤثری حجم سیستم را تغییر میدهند.[۹۲] پروتئینهای مسئول کاتالیز کردن واکنشها معمولاً توسط پیوندهای ضعیف در کنار هم نگه داشته میشوند و واکنشها معمولاً شامل افزایش حجم میشوند.[۹۴]
گونههایی که میتوانند این اعماق را تحمل کنند، تغییراتی را در ساختار پروتئینی و معیارهای واکنش خود برای مقاومت در برابر فشار تکامل دادهاند تا بتوانند واکنشها را در این شرایط انجام دهند. در محیطهای با فشار بالا، غشاهای سلولی دوقطبی دچار از دست دادن سیالیت میشوند. غشاهای سلولی اعماق دریا دوسویههای فسفولیپیدی را با نسبت بالاتری از اسیدهای چرب غیراشباع ترجیح میدهند که سیالیت بالاتری نسبت به همتایان سطح دریای خود ایجاد میکنند.
ده راسته، سیزده خانواده و حدود ۲۰۰ گونهٔ شناختهشده از ماهیان اعماق دریا لایهای ژلاتینی در زیر پوست یا اطراف ستون فقرات تکامل دادهاند که برای شناوری، رشد کمهزینه و افزایش کارایی شنا با کاهش پسا استفاده میشود.[۹۵]
گونههای اعماق دریا تغییرات آنتروپی و انتالپی کمتری در مقایسه با جانداران سطح دریا از خود نشان میدهند، زیرا محیط با فشار بالا و دمای پایین تغییرات انتالپی منفی و وابستگی کمتر به واکنشهای مبتنی بر آنتروپی را ترجیح میدهد. از منظر ساختاری، پروتئینهای کروی ماهیان اعماق دریا به دلیل ساختار سوم G-اکتین در مقایسه با ماهیان سطح دریا نسبتاً سفت و سخت هستند.[۹۶] این واقعیت که پروتئینهای ماهیان اعماق دریا از نظر ساختاری با ماهیهای سطحی متفاوت هستند از این مشاهده آشکار میشود که اکتینِ الیاف ماهیچهٔ ماهیان اعماق دریا در برابر گرما بسیار مقاوم است؛ مشابهسازی که در مارمولکها نیز یافت میشود. این پروتئینها با اصلاح پیوندهای ساختار سوم پروتئین، از نظر ساختاری تقویت میشوند که اتفاقاً سطوح بالایی از پایداری حرارتی را نیز القا میکند.[۹۷] پروتئینها از نظر ساختاری برای مقاومت در برابر فشار با اصلاح پیوندها در ساختار سوم تقویت میشوند.[۹۸] بنابراین، سطوح بالای فشار هیدرواستاتیک، مشابه دمای بالای بدن خزندگان گرمادوست بیابانی، ساختارهای پروتئینی سفت و سخت را ترجیح میدهد.
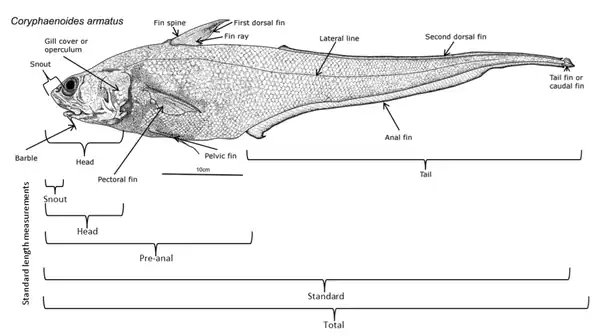
سدیم/پتاسیم-ATPase یک آنزیم لیپوپروتئین است که نقش برجستهای در تنظیم اسمزی ایفا میکند و بهشدت تحت تأثیر فشار هیدرواستاتیک است. مهار Na+/K+ -ATPase به دلیل افزایش تراکم ناشی از فشار است. مرحلهٔ محدودکنندهٔ نرخ واکنش Na+/K+ -ATPase باعث انبساط در دوسویهٔ اطراف پروتئین و در نتیجه افزایش حجم میشود. افزایش حجم، واکنشپذیری Na+/K+ -ATPase را مستعد فشارهای بالاتر میکند. حتی با وجود اینکه فعالیت Na+/K+ -ATPase در هر گرم بافت آبشش برای ماهیان اعماق دریا کمتر است، Na+/K+ -ATPaseهای ماهیان اعماق دریا تحمل بسیار بالاتری نسبت به فشار هیدرواستاتیک در مقایسه با همتایان آبهای کمعمق خود نشان میدهند. این امر در میانگونهای نمونهوار است؛ مانند گونهٔ C. acrolepis (حدود ۲۰۰۰ متر عمق) و همتای هادالپلاژیک آن یعنی C. armatus (حدود ۴٬۰۰۰ متر (۱۳٬۱۲۳ فوت) عمق)، که در آن Na+/K+ -ATPaseهای C. armatus حساسیت بسیار کمتری به فشار دارند. این مقاومت در برابر فشار را میتوان با سازگاریها در بخشهای پروتئینی و لیپیدی Na+/K+ -ATPase توضیح داد.[۹۹]
ماهیان فانوسی
نمونهبرداری از طریق ترال عمیق نشان میدهد که ماهی فانوسی تا ۶۵ درصد از کل زیستتوده ماهیان اعماق دریا را تشکیل میدهند.[۱۰۰] در واقع، ماهیان فانوسی در میان گستردهترین، پرجمعیتترین و متنوعترین مهرهداران هستند که نقش بومشناختی مهمی بهعنوان طعمه برای جانداران بزرگتر ایفا میکنند. با یک زیستتودهٔ جهانی تخمینی ۵۵۰ تا ۶۶۰ میلیون تن، که چندین برابر کل صید ماهیگیری جهان است، ماهیان فانوسی همچنین سهم زیادی از زیستتودهٔ مسئول لایه پراکندگی عمقی اقیانوسهای جهان را به خود اختصاص میدهند. در اقیانوس منجمد جنوبی، میکتوفیدها منبع غذایی جایگزینی برای کریل برای شکارچیانی مانند ماهی مرکب و پنگوئن پادشاه فراهم میکنند. اگرچه این ماهیها فراوان و پربار هستند، در حال حاضر تنها چند شیلات تجاری برای ماهیان فانوسی وجود دارد: اینها شامل عملیات محدود در سواحل آفریقای جنوبی، در زیر-جنوبگان و در دریای عمان است.
گونههای در معرض خطر
مطالعهای در سال ۲۰۰۶ توسط دانشمندان کانادایی نشان داد که پنج گونه از ماهیان اعماق دریا – شامل هیک آبی و مارماهی خاردار – به دلیل تغییر مسیر ماهیگیری تجاری از فلات قاره به سمت شیبهای فلات قاره، تا عمق ۱٬۶۰۰ متر (۵٬۲۴۹ فوت)، در آستانهٔ انقراض قرار دارند. تولیدمثل کند این ماهیها – آنها تقریباً در همان سنی که انسانها به بلوغ جنسی میرسند، بالغ میشوند – یکی از دلایل اصلی است که آنها نمیتوانند از صید بیرویه بهبود یابند.[۱۰۱]
جستارهای وابسته
پانویس
- ↑ Trujillo & Thurman 2011, pp. 354.
- ↑ [۱]
- ↑ Trujillo & Thurman 2011, pp. 365.
- ↑ [۳]
- ↑ Trujillo & Thurman 2011, pp. 457, 460.
- ↑ [۵]
- 1 2 Baucon, Andrea; Ferretti, Annalisa; Fioroni, Chiara; Pandolfi, Luca; Serpagli, Enrico; Piccinini, Armando; de Carvalho, Carlos Neto; Cachão, Mário; Linley, Thomas; Muñiz, Fernando; Belaústegui, Zain; Jamieson, Alan; Lo Russo, Girolamo; Guerrini, Filippo; Ferrando, Sara (2023-09-12). "The earliest evidence of deep-sea vertebrates". Proceedings of the National Academy of Sciences (in English). 120 (37) e2306164120. Bibcode:2023PNAS..12006164B. doi:10.1073/pnas.2306164120. ISSN 0027-8424. PMC 10500276. PMID 37669391.
- 1 2 News Staff (2023-09-19). "130-Million-Year-Old Trace Fossils Reveal Earliest Evidence of Deep-Sea Vertebrates | Sci.News". Sci.News: Breaking Science News (in American English). Retrieved 2023-09-30.
- ↑ Davis, Matthew P.; Fielitz, Christopher (2010-12-01). "Estimating divergence times of lizardfishes and their allies (Euteleostei: Aulopiformes) and the timing of deep-sea adaptations". Molecular Phylogenetics and Evolution. 57 (3): 1194–1208. Bibcode:2010MolPE..57.1194D. doi:10.1016/j.ympev.2010.09.003. ISSN 1055-7903. PMID 20854916.
- ↑ Cappetta, Henri; Morrison, Kurt; Adnet, Sylvain (2021-08-03). "A shark fauna from the Campanian of Hornby Island, British Columbia, Canada: an insight into the diversity of Cretaceous deep-water assemblages". Historical Biology (in English). 33 (8): 1121–1182. Bibcode:2021HBio...33.1121C. doi:10.1080/08912963.2019.1681421. ISSN 0891-2963. S2CID 212878837.
- ↑ "Bulletin Volume 72 – 2023". Dansk Geologisk Forening (in Danish). 2023-01-27. doi:10.37570/bgsd-2023-72-06. hdl:11250/3150975. Retrieved 2024-03-08.
- ↑ Szabó, Márton; Kocsis, László; Tóth, Emőke; Szabó, Péter; Németh, Tamás; Sebe, Krisztina (2022). Cavin, Lionel (ed.). "Chondrichthyan (Holocephali, Squalomorphii and Batomorphii) remains from the Badenian of southern Hungary (Tekeres, Mecsek Mountains): the first deepwater cartilaginous fishes from the Middle Miocene of the Central Paratethys". Papers in Palaeontology (in English). 8 (6) e1471. Bibcode:2022PPal....8E1471S. doi:10.1002/spp2.1471. hdl:10831/113805. ISSN 2056-2799.
- ↑ Giusberti, Luca; Bannikov, Alexander; Boscolo Galazzo, Flavia; Eliana; Joost; Valeria; Cesare Andrea; Guido; Stefan; Appy; Francesca R.; Roberto (2014-06-01). "A new Fossil-Lagerstätte from the Lower Eocene of Lessini Mountains (northern Italy): A multidisciplinary approach". Palaeogeography, Palaeoclimatology, Palaeoecology. 403: 1–15. Bibcode:2014PPP...403....1G. doi:10.1016/j.palaeo.2014.03.012. hdl:1874/309076. ISSN 0031-0182. S2CID 128416509.
- ↑ Bannikov, A. F.; Erebakan, I. G. (2023-10-01). "On the Evolution of Some Groups of Marine Bony Fishes in the Cenozoic of the Tethys and Paratethys". Paleontological Journal (in English). 57 (5): 475–490. Bibcode:2023PalJ...57..475B. doi:10.1134/S0031030123050015. ISSN 1555-6174. S2CID 262543874.
- ↑ Carnevale, Giorgio (2008). "Miniature deep-sea hatchetfish (Teleostei: Stomiiformes) from the Miocene of Italy". Geological Magazine (in English). 145 (1): 73–84. Bibcode:2008GeoM..145...73C. doi:10.1017/S0016756807003937. ISSN 1469-5081. S2CID 128491684.
- ↑ Tsuchiya, Yuki; Schwarzhans, Werner; Ohe, Fumio; Atsushi (2024-02-06). "Deep-sea fish otoliths from the Lower Miocene Oi and Katada formations, Ichishi Group, Mie Prefecture, central Japan". Historical Biology (in English). 37 (2): 304–327. doi:10.1080/08912963.2023.2301408. ISSN 0891-2963. S2CID 267540826.
- ↑ Carnevale, Giorgio; Pietsch, Theodore W. (2009-06-12). "The deep-sea anglerfish genus Acentrophryne (Teleostei, Ceratioidei, Linophrynidae) in the Miocene of California". Journal of Vertebrate Paleontology (in English). 29 (2): 372–378. Bibcode:2009JVPal..29..372C. doi:10.1671/039.029.0232. ISSN 0272-4634. S2CID 86776685.
- 1 2 3 4 5 6 Moyle & Cech 2004, pp. 585.
- ↑ [۱۸]
- ↑ Wharton 2002, pp. 198.
- ↑ [۲۰]
- ↑ Wharton 2002, pp. 199, 201–202.
- ↑ [۲۲]
- 1 2 Wharton 2002, pp. 199.
- ↑ [۲۴]
- ↑ Compagno, L. J. V. (1984). Sharks of the World: An Annotated and Illustrated Catalogue of Shark Species Known to Date. Food and Agricultural Organization of the United Nations. pp. 14–15. ISBN 92-5-101384-5.
- ↑ [۲۴]
- ↑ Musilova, Zuzana; Cortesi, Fabio; Matschiner, Michael; Davies, Wayne; Patel, Jagdish; Stieb, Sara; de Busserolles, Fanny; Malmstrøm, Martin; Tørresen, Ole; Brown, Celeste; Mountford, Jessica; Hanel, Reinhold; Stenkamp, Deborah; Jakobsen, Kjetill; Carleton, Karen; Jentoft, Sissel; Marshall, Justin; Salzburger, Walter (2019). "Vision using multiple distinct rod opsins in deep-sea fishes". Science. 364 (6440). American Association for the Advancement of Science: 588–592. Bibcode:2019Sci...364..588M. doi:10.1126/science.aav4632. PMC 6628886. PMID 31073066.
- 1 2 Trujillo & Thurman 2011, pp. 415.
- ↑ [۲۹]
- ↑ Trujillo & Thurman 2011, pp. 414–5.
- ↑ [۳۱]
- ↑ Randall & Farrell 1997, pp. 217.
- ↑ [۳۳]
- ↑ Randall & Farrell 1997, pp. 195.
- ↑ [۳۵]
- ↑ Randall & Farrell 1997, pp. 196, 225.
- ↑ [۳۷]
- ↑ Martinez, Christopher M.; Friedman, Sarah T.; Corn, Katherine A.; Larouche, Olivier; Price, Samantha A.; Wainwright, Peter C. (September 2021). "The deep sea is a hot spot of fish body shape evolution". Ecology Letters. 24 (9): 1788–1799. Bibcode:2021EcolL..24.1788M. doi:10.1111/ele.13785. ISSN 1461-0248. PMID 34058793.
- ↑ [۲۹]
- ↑ Moyle & Cech 2004, pp. 591.
- ↑ [۴۱]
- 1 2 Haedrich R. L. (1996) خطای اسکریپتی: پودمان «Deprecated archive» وجود ندارد. , Journal of Fish Biology, 49(sA):40–53.
- ↑ Moyle & Cech 2004, pp. 586.
- ↑ [۴۴]
- 1 2 3 Moyle & Cech 2004, pp. 571.
- ↑ Froese, Rainer; Pauly, Daniel (eds.). "Argyropelecus aculeatus". FishBase. August 2009 version.
- ↑ Froese, Rainer; Pauly, Daniel (eds.). "Dissostichus mawsoni". FishBase. August 2009 version.
- ↑ Mystery Of Deep-sea Fish With Tubular Eyes And Transparent Head Solved ScienceDaily, 24 February 2009.
- ↑ Froese, Rainer; Pauly, Daniel (eds.). "Gigantura chuni". FishBase. October 2010 version.
- ↑ [۱۸]
- 1 2 Ryan P. , "Deep-sea creatures: The mesopelagic zone" بایگانیشده در ۱۱ مه ۲۰۰۹ توسط Wayback Machine, Te Ara – the Encyclopedia of New Zealand. Updated ۲۱ سپتامبر ۲۰۰۷.
- ↑ [۱۸]
- ↑ Bone & Moore 2008, p. 38.
- ↑ Douglas E. L.; Friedl W. A.; Pickwell G. V. (1976). "Fishes in oxygen-minimum zones: blood oxygenation characteristics". Science. 191 (4230): 957–959. Bibcode:1976Sci...191..957D. doi:10.1126/science.1251208. PMID 1251208.
- ↑ Moyle & Cech 2004, pp. 590.
- ↑ [۵۶]
- ↑ [۱۸]
- ↑ [۱۸]
- ↑ Munz W. R. A. (1976). "On yellow lenses in mesopelagic animals". Marine Biological Association of the UK. 56 (4): 963–976. Bibcode:1976JMBUK..56..963M. doi:10.1017/S0025315400021019. S2CID 86353657.
- ↑ Wagner, H. J.; Douglas, R. H.; Frank, T. M.; Roberts, N. W.; Partridge, J. C. (2009). "A Novel Vertebrate Eye Using Both Refractive and Reflective Optics". Current Biology. 19 (2): 108–114. Bibcode:2009CBio...19..108W. doi:10.1016/j.cub.2008.11.061. PMID 19110427. S2CID 18680315.
- ↑ Smith, L. (۸ ژانویه ۲۰۰۹). "Fish with four eyes can see through the deep sea gloom". Times Online. Times Newspapers Ltd. بازبینیشده در ۱۴ مارس ۲۰۰۹.
- 1 2 Paxton & Eschmeyer 1998, pp. 127–8.
- ↑ [۶۳]
- ↑ R. Cornejo; R. Koppelmann; T. Sutton. "Deep-sea fish diversity and ecology in the benthic boundary layer". Archived from the original on 1 ژوئن 2013. Retrieved 2 مارس 2013.
- 1 2 Kenaley, C. P. (2007). "Revision of the Stoplight Loosejaw Genus Malacosteus (Teleostei: Stomiidae: Malacosteinae), with Description of a New Species from the Temperate Southern Hemisphere and Indian Ocean". Copeia. 2007 (4): 886–900. doi:10.1643/0045-8511(2007)7[886:ROTSLG]2.0.CO;2. S2CID 1038874.
- ↑ Sutton, T. T. (2005). "Trophic ecology of the deep-sea fish Malacosteus niger (Pisces: Stomiidae): An enigmatic feeding ecology to facilitate a unique visual system?". Deep-Sea Research Part I: Oceanographic Research Papers. 52 (11): 2065–2076. Bibcode:2005DSRI...52.2065S. doi:10.1016/j.dsr.2005.06.011.
- ↑ Moyle & Cech 2004, pp. 336.
- ↑ Froese, Rainer; Pauly, Daniel (eds.). "Anotopterus pharao". FishBase. آوریل 2010 version.
- 1 2 3 4 Ryan P "Deep-sea creatures: The bathypelagic zone" بایگانیشده در ۲۱ دسامبر ۲۰۰۸ توسط Wayback Machine Te Ara - the Encyclopedia of New Zealand. Updated ۲۱ سپتامبر ۲۰۰۷.
- 1 2 Froese, Rainer, and Daniel Pauly, eds. (۲۰۰۹). "Gonostoma" in پایگاه داده ماهی. اوت ۲۰۰۹ version.
- ↑ "Connecting knowledge and people for more than 10 years".
{{cite web}}: نگهداری یادکرد:خدمت بایگانی منسوخ (رده) - ↑ "Scientists solve mystery: 3 fish are all the same". 22 ژانویه 2009. Retrieved 22 ژانویه 2009.
- ↑ Froese, Rainer; Pauly, Daniel (eds.). "Chauliodus sloani". FishBase. آوریل 2010 version.
- ↑ Froese, Rainer; Pauly, Daniel (eds.). "Anoplogaster cornuta". FishBase. اوت 2009 version.
- ↑ [۱۸]
- 1 2 Moyle & Cech 2004, pp. 594.
- ↑ [۷۷]
- ↑ [۷۷]
- 1 2 Moyle & Cech 2004, pp. 587.
- ↑ Marshall (1984) "Progenetic tendencies in deep-sea fishes", pp. 91-101 in Potts GW and Wootton RJ (eds.) (1984) Fish reproduction: strategies and tactics Fisheries Society of the British Isles.
- 1 2 Fujiwara, Yoshihiro; Tsuchida, Shinji; Kawato, Masaru; Masuda, Kotohiro; Sakaguchi, Sakiko Orui; Sado, Tetsuya; Miya, Masaki; Yoshida, Takao (2022-07-01). "Detection of the Largest Deep-Sea-Endemic Teleost Fish at Depths of Over 2,000 m Through a Combination of eDNA Metabarcoding and Baited Camera Observations". Frontiers in Marine Science (in English). 9 945758. Bibcode:2022FrMaS...945758F. doi:10.3389/fmars.2022.945758. ISSN 2296-7745.
- ↑ Horn MH (1970). "The swim bladder as a juvenile organ in stromateoid fishes". Breviora. 359: 1–9.
- ↑ In situ observation of a macrourid fish at 7259 m in the Japan Trench: swimbladder buoyancy at extreme depth
- ↑ Jumper GY, Bair RC (1991). "Location by olfaction: a model and application to the mating problem in the deep-sea Hatchetfish Argyropelecus hemigymnus". The American Naturalist. 138 (6): 1431–58. Bibcode:1991ANat..138.1431J. doi:10.1086/285295. JSTOR 2462555. S2CID 84386858.
- ↑ [۸۰]
- ↑ Theodore W. Pietsch (1975). "Precocious sexual parasitism in the deep sea ceratioid anglerfish, Cryptopsaras couesi Gill". Nature. 256 (5512): 38–40. Bibcode:1975Natur.256...38P. doi:10.1038/256038a0. S2CID 4226567.
- ↑ Jordan, D.S. (1905). A Guide to the Study of Fishes. H. Holt and Company.
- ↑ Froese, Rainer; Pauly, Daniel (eds.). "Chiasmodon niger". FishBase. August 2009 version.
- ↑ Scott, Thomas R.; Powell, James (2018). The Universe as It Really Is: Earth, Space, Matter, and Time. Columbia University Press. Bibcode:2018uiri.book.....S. doi:10.7312/scot18494. ISBN 978-0-231-54576-1. S2CID 125357269.
- 1 2 Hochachka & Somero 1984.
- ↑ [۹۱]
- 1 2 3 Priede 2017, pp. 87–138.
- ↑ [۹۳]
- ↑ Gerringer, M. E.; Drazen, J. C.; Linley, T. D.; Summers, A. P.; Jamieson, A. J.; Yancey, P. H. (2017). "Distribution, composition and functions of gelatinous tissues in deep-sea fishes". Royal Society Open Science. 4 (12). Bibcode:2017RSOS....471063G. doi:10.1098/rsos.171063. PMC 5750012. PMID 29308245.
- ↑ [۹۱]
- ↑ [۹۳]
- ↑ [۹۳]
- ↑ Somero, G N (1992). "Adaptations to High Hydrostatic Pressure". Annual Review of Physiology (in English). 54 (1): 557–577. doi:10.1146/annurev.ph.54.030192.003013. ISSN 0066-4278. PMID 1314046.
- ↑ [۶۳]
- ↑ Devine Jennifer A.; Baker Krista D.; Haedrich Richard L. (2006). "Fisheries: Deep-sea fishes qualify as endangered". Nature. 439 (7072): 29. Bibcode:2006Natur.439...29D. doi:10.1038/439029a. PMID 16397489. S2CID 4428618.
منابع
- Hochachka, Peter W.; Somero, George N. (1984). Biochemical Adaptation. Princeton University Press. JSTOR j.ctt7zv9d4.
- Moyle, P. B.; Cech, J. J. (2004). Fishes, An Introduction to Ichthyology (5 ed.). Benjamin Cummings. ISBN 978-0-13-100847-2.
- Paxton, J. R.; Eschmeyer, W. N., eds. (1998). Encyclopedia of Fishes. San Diego: Academic Press. ISBN 0-12-547665-5.
- Priede, Imants G., ed. (2017). "Adaptations to the Deep Sea". Deep-Sea Fishes: Biology, Diversity, Ecology and Fisheries. Cambridge: Cambridge University Press. pp. 87–138. doi:10.1017/9781316018330.004. ISBN 978-1-316-01833-0.
- Randall, David J.; Farrell, Anthony Peter (1997). Deep-sea Fishes. San Diego: Academic. ISBN 978-0-12-350440-1.
- Trujillo, Alan P.; Thurman, Harold V. (2011). Essentials of Oceanography (10 ed.). Boston: Prentice Hall. ISBN 978-0-321-66812-7.
- Wharton, David (2002). Life at the Limits: Organisms in Extreme Environments. Cambridge: Cambridge University Press. p. 198. ISBN 978-0-521-78212-8.
برای مطالعهٔ بیشتر
- Gordon J. D. M. (2001) "Deep-sea fishes" In: John H. Steele, Steve A. Thorpe, Karl K. Turekian (eds.) Elements of Physical Oceanography, pages 227–233, Academic Press. شابک ۹۷۸۰۱۲۳۷۵۷۲۴۱.
- Hoar W. S. , Randall D. J. and Farrell A. P. (eds.) (1997) Deep-Sea Fishes, Academic Press. شابک ۹۷۸۰۰۸۰۵۸۵۴۰۶.
- Shotton, Ross (1995) "Deepwater fisheries" In: Review of the state of world marine fishery resources, FAO Fisheries technical paper 457, FAO, Rome. شابک ۹۲−۵−۱۰۵۲۶۷−۰.
- Tandstad M. , Shotton R. , Sanders J. and Carocci F. (2011) "Deep-sea Fisheries" بایگانیشده در ۳ مارس ۲۰۱۶ توسط Wayback Machine In: Review of the state of world marine fishery resources, pages 265–278, FAO Fisheries technical paper 569, FAO, Rome. شابک ۹۷۸−۹۲−۵−۱۰۷۰۲۳−۹.
پیوند به بیرون

 Creatures and Fish of the Deep Ocean – مستند نشنال جئوگرافیک |
- Deep-Sea Bestiary
- گالری عکس: جانداران اعماق دریا
- Crash Course To Deep Sea Fishing – مقالات، حقایق و تصاویر حیوانات اعماق دریا
- الگو:بایگانی
- ماهیشناسی
- ماهیان دریای عمیق
- واژگان اقیانوسنگاری