بازدارنده مخلوط
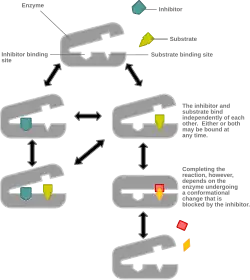

بازدارندگی مختلط (انگلیسی: Mixed inhibition) یکی از روشهایی است که یک ماده میتواند جلوی کار یک آنزیم را بگیرد. برای فهم سادهاش، تصور کنید آنزیم مثل یک قفل است و مولکول اصلی (بستر یا سوبسترا) مانند کلید. معمولاً کلید درست وارد قفل میشود و واکنش انجام میشود. اما در بازدارندگی مختلط، بازدارنده (ماده مزاحم) میتواند هم به خود قفل (آنزیم) وصل شود و هم به مجموعه «قفل+کلید» (آنزیم+بستر). به همین دلیل نام آن «مختلط» است، چون دو گونه جای مختلف برای چسبیدن دارد.
نتیجه این میشود که: هم تعداد «کلیدهایی» که درست کار میکنند کم میشود، چون بازدارنده جای آنها را میگیرد. هم وقتی کلید وارد قفل شد، کیفیت کار قفل پایین میآید، چون بازدارنده میتواند به مجموعه وصل شود و جلوی واکنش درست را بگیرد.
بنابراین سرعت واکنش آنزیمی پایین میآید، چه بازدارنده قبل از ورود کلید برسد و چه بعدش.
بنابراین، بازدارنده مختلط نوعی از بازدارنده آنزیم است که در آن بازدارنده میتواند به آنزیم متصل شود، چه سوبسترا قبلاً به آنزیم متصل شده باشد و چه نشده باشد، اما تمایل بیشتری به یکی از این دو حالت دارد.[۱]
این نوع بازدارندگی به «مختلط» معروف است زیرا از نظر مفهومی بهعنوان ترکیبی از بازدارندگی رقابتی و بازدارندگی غیررقابتی در نظر گرفته میشود. در بازدارندگی رقابتی، بازدارنده فقط در صورتی میتواند به آنزیم متصل شود که سوبسترا هنوز متصل نشده باشد، در حالی که در بازدارندگی غیررقابتی، بازدارنده فقط در صورتی میتواند متصل شود که بستر قبلاً متصل شده باشد. اگر توانایی بازدارنده برای اتصال به آنزیم دقیقاً یکسان باشد، چه آنزیم با بستر متصل شده باشد و چه نشده باشد، به آن بازدارندگی غیررقابتی گفته میشود.[۱][۲]
در بازدارندگی مختلط، بازدارنده به یک سایت آلواستریک متصل میشود، یعنی محلی غیر از جایگاه فعال که سوبسترا به آن متصل میشود. با این حال، همه بازدارندههایی که به سایتهای دگرریختار (آلواستریک) متصل میشوند، الزاماً بازدارندههای مختلط نیستند.[۱]
بازدارندگی مختلط میتواند منجر به یکی از دو حالت زیر شود:
- کاهش در تمایل ظاهری آنزیم به سوبسترا ()؛ این حالت در زمانی دیده میشود که بازدارنده تمایل بیشتری به اتصال به آنزیم آزاد دارد و بیشتر به بازدارندگی رقابتی شباهت دارد.
- افزایش در تمایل ظاهری آنزیم به بستر ()؛ این حالت در زمانی دیده میشود که بازدارنده تمایل بیشتری به اتصال به کمپلکس آنزیم-سوبسترا دارد و بیشتر به بازدارندگی غیررقابتی شباهت دارد.


در هر دو حالت، بازدارندگی باعث کاهش نرخ واکنش آنزیمی ماکزیمم ظاهری میشود ().[۳]
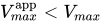
از نظر ریاضی، بازدارندگی مختلط زمانی رخ میدهد که ضرایب α و α’ (که برای بازدارندگی رقابتی و غیررقابتی در سینتیک مایکل–منتن وارد شدهاند) هر دو بزرگتر از ۱ باشند.
در حالت خاصی که α = α’ باشد، بازدارندگی غیررقابتی رخ میدهد که در این حالت کاهش مییابد اما بدون تغییر باقی میماند. این حالت در عمل بسیار نادر است.[۳]


نمونههای زیستی
در گلوکونئوژنز، آنزیم cPEPCK (فسفوئنولپیرووات کربوکسیکیناز سیتوزولی) مسئول تبدیل اگزالواستیک اسید به فسفوئنولپیروویک اسید (PEP) در حضور گوانوزین تریفسفات (GTP) است. این مرحله بهطور انحصاری در فرایند گلوکونئوژنز رخ میدهد که در شرایط روزهداری به دلیل کاهش ذخایر گلوکز بدن فعال میشود. مشخص شده است که فعالیت cPEPCK توسط جنیستئین، یک ایزوفلاوون که بهطور طبیعی در تعدادی از گیاهان یافت میشود، تنظیم میشود.[۴]
در یک مطالعه، مشخص شد که جنیستئین فعالیت cPEPCK را مهار میکند. حضور این ایزوفلاوون باعث کاهش سطح قند خون شد. کاهش سطح قند خون به معنای وجود گلوکز کمتر در جریان خون است. اگر این اتفاق در یک فرد روزهدار رخ دهد، دلیل آن مهار گلوکونئوژنز و جلوگیری از تولید بیشتر گلوکز است. توانایی جنیستئین در کاهش سطح قند خون، به آن خاصیت ضد دیابتی میدهد.[۴]
مکانیسمی که جنیستئین از طریق آن فعالیت آنزیم cPEPCK را مهار میکند، بیشتر مورد بررسی قرار گرفت. ابتدا cPEPCK در حضور ۳-مرکاپتوپروپیونیک اسید (3-MPA)، که بازدارندهای شناختهشده برای این آنزیم است، قرار گرفت و نتایج با حضور جنیستئین مقایسه شد. این مقایسه نشان داد که مکانیسم بازدارندگی مختلط برای کاهش فعالیت cPEPCK مورد استفاده قرار گرفته است.[۴]
آنزیم cPEPCK هنگام کاتالیز تشکیل PEP چندین پیکربندی مختلف به خود میگیرد؛ این آنزیم میتواند آزاد باشد، به GDP متصل باشد یا به GTP متصل شود. در یک آزمایش، تمایل جنیستئین به اتصال به cPEPCK در این پیکربندیهای مختلف مورد مطالعه قرار گرفت. نتایج نشان داد که جنیستئین تمایل بیشتری به اتصال به cPEPCK متصل به GTP دارد تا آنزیمی که به GDP متصل است، که پایداری کمتری داشت.[۴]
این امر به این دلیل بود که cPEPCK متصل به GTP یک سایت اتصال گسترشیافته برای جنیستئین نشان داد.[۴] این سایت همان محل اتصال سوبسترای آنزیم، اگزالواستات، بود، در حالی که پیکربندیهای دیگر چنین رفتاری را در حضور جنیستئین نشان ندادند.[۴] این شواهد نشان داد که مکانیسم مهار cPEPCK توسط جنیستئین ترکیبی از بازدارندگی رقابتی و غیررقابتی است.
کالیکرئین نوعی سرین پروتئاز است که پیوندهای پپتیدی را پس از برخی آمینواسیدها در پروتئینها میشکند. این ۱۵ کالیکرئین، از KLK1 تا KLK15، در بافتهای انسانی یافت میشوند. توانایی این مولکول در شکستن پروتئینها منجر به فعالسازی مؤثر گیرندههای سطح سلول میشود، که آنها را به عناصر حیاتی در بسیاری از مسیرهای انتقال سیگنال بیولوژیکی و تقویت آنها از طریق آبشارها تبدیل میکند. این خانواده از پروتئازهای سرین معمولاً به عنوان نشانگرهای بیماری عمل میکنند و بنابراین هدفی برای مهار قرار میگیرند.[۵]
مهار این کالیکرئینها میتواند به درمان بیماریهایی مانند سرطان متاستاتیک یا بیماری آلزایمر کمک کند.[۵]
فوکوجتین، یا (+)-مورللو فلاوون، نوعی بفیلاوونوئید گیاهی است که از Garcinia brasiliensis استخراج میشود.[۵] پس از استخراج فوکوجتین، آن را با KLK1، KLK2، پادگن ویژه پروستات، KLK4، KLK5، KLK6 و KLK7 در غلظتهای مختلف ترکیب کردند.[۵] این کار به تحلیل سینتیک آنزیمی از طریق استخراج پارامترهای Km و Vmax کمک کرد. با استفاده از مدل سینتیک میکائلیس–منتن، نمودار Eadie-Hofstee رسم شد.[۵] این نمودار تأیید کرد که فوکوجتین بهعنوان یک مهارکننده مختلط عمل میکند و تمایلات مختلفی برای آنزیم بهتنهایی و پیچیده آنزیم-سوبسترات نشان میدهد.
تحلیل سینتیکی نشان داد که فوکوجتین Vmax را کاهش داده و Km را برای این کالیکرئینها افزایش میدهد.[۵] بهطور معمول، در مهار رقابتی، Vmax ثابت میماند در حالی که Km افزایش مییابد، و در مهار غیررقابتی، Vmax کاهش مییابد در حالی که Km ثابت میماند. تغییر در هر دو متغیر یکی دیگر از یافتهها است که با اثرات یک مهارکننده مختلط سازگار است.
منابع
- 1 2 3 "Types of Inhibition". National Institutes of Health Chemical Genomics Center. 2011. Archived from the original on 8 September 2011. Retrieved 2 April 2012.
- ↑ "Enzyme inhibition". London South Bank University. Archived from the original on 19 March 2012. Retrieved 2 April 2012.
- 1 2 Storey KB (2004). Functional Metabolism: Regulation and Adaptation. Wiley-IEEE. p. 12. ISBN 978-0-471-41090-4.
- 1 2 3 4 5 6 Katiyar SP, Jain A, Dhanjal JK, Sundar D (2015). "Mixed Inhibition of cPEPCK by Genistein, Using an Extended Binding Site Located Adjacent to Its Catalytic Cleft". PLOS ONE. 10 (11): e0141987. Bibcode:2015PLoSO..1041987K. doi:10.1371/journal.pone.0141987. PMC 4631375. PMID 26528723.
- 1 2 3 4 5 6 Santos JA, Kondo MY, Freitas RF, dos Santos MH, Ramalho TC, Assis DM, Juliano L, Juliano MA, Puzer L (March 2016). "The natural flavone fukugetin as a mixed-type inhibitor for human tissue kallikreins". Bioorganic & Medicinal Chemistry Letters. 26 (5): 1485–1489. doi:10.1016/j.bmcl.2016.01.039. PMID 26848109.