تاریخچه زیستشناسی مولکولی
تاریخچه زیستشناسی مولکولی در دهه ۱۹۳۰ با همگرایی حوزههای مختلف و پیشتر مجزای زیستشناختی و فیزیکی آغاز میشود: بیوشیمی، ژنتیک، میکروبیولوژی، ویروسشناسی و فیزیک. با امید به درک حیات در بنیادیترین سطح آن، فیزیکدانان و شیمیدانان متعددی نیز به آنچه بعدها به زیستشناسی مولکولی تبدیل شد، علاقهمند شدند.
در معنای مدرن آن، زیستشناسی مولکولی تلاش میکند تا پدیدههای حیات را با شروع از ویژگیهای درشتمولکولی (ماکرومولکولی) که آنها را ایجاد میکنند، توضیح دهد. دو دسته از درشتمولکولها بهطور ویژه کانون توجه زیستشناس مولکولی هستند: ۱) اسیدهای نوکلئیک، که مشهورترین آنها دیاکسیریبونوکلئیک اسید (یا دیانای - DNA) تشکیلدهنده ژنها است، و ۲) پروتئینها، که عوامل فعال ارگانیسمهای زنده هستند. بنابراین یک تعریف از دامنه زیستشناسی مولکولی، تعیین ویژگیهای ساختاری، عملکردی و روابط بین این دو نوع درشتمولکول است. این تعریف نسبتاً محدود اجازه میدهد تا تاریخی برای اصطلاح «انقلاب مولکولی» تخمین زده شود، یا دستکم گاهشماری از بنیادیترین پیشرفتهای آن ایجاد گردد.
نمای کلی
در تجلیات اولیهاش، زیستشناسی مولکولی — نامی که توسط وارن ویور از بنیاد راکفلر در سال ۱۹۳۸ ابداع شد[۱] — بیشتر یک ایده برای توضیحات فیزیکی و شیمیایی از حیات بود تا یک رشته منسجم. در پی پیدایش نظریه وراثت کروموزومی-مندلی در دهه ۱۹۱۰ و بلوغ نظریه اتمی و مکانیک کوانتومی در دهه ۱۹۲۰، چنین توضیحاتی دستیافتنی به نظر میرسیدند. ویور و دیگران تحقیقات در تقاطع زیستشناسی، شیمی و فیزیک را تشویق (و تأمین مالی) کردند، در حالی که فیزیکدانان برجستهای چون نیلز بور و اروین شرودینگر توجه خود را به گمانهزنیهای زیستشناختی معطوف ساختند. کتاب سال ۱۹۴۴ شرودینگر با عنوان حیات چیست؟ بهویژه الهامبخش بسیاری برای ورود به این حوزه نوظهور شد، از جمله راهنمایی جیمز واتسون به سمت تحقیقات دیانای.[۲]تاریخچه زیستشناسی مولکولی با این حال، در دهههای ۱۹۳۰ و ۱۹۴۰ به هیچ وجه مشخص نبود که کدام تحقیقات میانرشتهای — اگر اصلاً وجود داشته باشند — به ثمر خواهند نشست؛ کارهایی در زمینه شیمی کلوئید، بیوفیزیک و زیستشناسی پرتوی، بلورشناسی، و دیگر حوزههای نوظهور، همگی امیدوارکننده به نظر میرسیدند.
در سال ۱۹۴۰، جرج بیدل و ادوارد تاتوم وجود یک رابطه دقیق بین ژنها و پروتئینها را اثبات کردند.[۳] در جریان آزمایشهای خود برای اتصال ژنتیک با بیوشیمی، آنها از پایه اصلی ژنتیک یعنی دروزوفیلا به یک جاندار مدل مناسبتر، یعنی قارچ نوروسپورا تغییر مسیر دادند؛ ساخت و بهرهبرداری از جانداران مدل جدید به یک مضمون تکرارشونده در توسعه زیستشناسی مولکولی تبدیل میشد. در سال ۱۹۴۴، اسوالد ایوری، که در مؤسسه راکفلر نیویورک کار میکرد، اثبات کرد که ژنها از دیانای تشکیل شدهاند[۴] (ببینید آزمایش ایوری–مکلئود–مککارتی). در سال ۱۹۵۲، آلفرد هرشی و مارتا چیس تأیید کردند که ماده ژنتیکی باکتریخوار (باکتریوفاژ)، ویروسی که باکتریها را آلوده میکند، از دیانای ساخته شده است[۵] (ببینید آزمایش هرشی–چیس). در سال ۱۹۵۳، جیمز واتسون و فرانسیس کریک مقالهای درباره کشف ساختار مارپیچ دوگانه مولکول دیانای بر اساس کشفیات انجام شده توسط روزالیند فرانکلین منتشر کردند.[۶] در سال ۱۹۶۱، فرانسوا ژاکوب و ژاک مونو نشان دادند که محصولات برخی ژنها با اثرگذاری بر سایتهای خاص در لبه ژنهای دیگر، بیان آن ژنها را تنظیم میکنند. آنها همچنین فرضیه وجود یک واسطه بین دیانای و محصولات پروتئینی آن را مطرح کردند که آن را آرانای پیامرسان (mRNA) نامیدند.[۷] بین سالهای ۱۹۶۱ و ۱۹۶۵، رابطه بین اطلاعات موجود در دیانای و ساختار پروتئینها مشخص شد: یک رمز به نام رمز ژنتیکی وجود دارد که ارتباطی بین توالی نوکلئوتیدها در توالی دیانای و مجموعهای از اسیدهای آمینه در پروتئینها ایجاد میکند.
در آوریل ۲۰۲۳، دانشمندان بر اساس شواهد جدید به این نتیجه رسیدند که روزالیند فرانکلین یک مشارکتکننده و «بازیگر برابر» در فرایند کشف دیانای بوده است، نه آنگونه که ممکن است در سالهای پس از اکتشاف ارائه شده باشد.[۸][۹][۱۰]
اکتشافات اصلی زیستشناسی مولکولی در دورهای حدوداً بیست و پنج ساله رخ داد. پانزده سال دیگر نیاز بود تا فناوریهای جدید و پیچیدهتری که امروز تحت نام مهندسی ژنتیک متحد شدهاند، امکان جداسازی و شناسایی خصوصیات ژنها، بهویژه در موجودات بسیار پیچیده را فراهم کنند.
کاوش در قلمرو مولکولی
اگر انقلاب مولکولی را در بستر تاریخ زیستشناسی ارزیابی کنیم، به راحتی میتوان دریافت که این نقطه اوج فرایندی طولانی است که با نخستین مشاهدات از طریق میکروسکوپ آغاز شد. هدف این محققان اولیه درک عملکرد موجودات زنده با توصیف سازماندهی آنها در سطح میکروسکوپی بود. از اواخر قرن هجدهم، تعیین خصوصیات مولکولهای شیمیایی که موجودات زنده را میسازند، توجه فزایندهای را به خود جلب کرد، که همراه با تولد شیمی فیزیولوژیک در قرن نوزدهم (توسعهیافته توسط شیمیدان آلمانی یوستوس فون لیبیگ) و در پی تولد بیوشیمی در آغاز قرن بیستم، به لطف شیمیدان آلمانی دیگر ادوارد بوخنر همراه بود. میان مولکولهای مطالعهشده توسط شیمیدانان و ساختارهای کوچک قابل رؤیت در زیر میکروسکوپ نوری، مانند هسته سلول یا کروموزومها، یک منطقه تاریک وجود داشت؛ "دنیای ابعاد نادیده گرفته شده" همانطور که فیزیکوشیمیدان ولفگانگ اوستوالد آن را مینامید. این دنیا مملو از کلوئیدها بود، ترکیبات شیمیایی که ساختار و ویژگیهای آنها به خوبی تعریف نشده بود.
موفقیتهای زیستشناسی مولکولی از اکتشاف در آن دنیای ناشناخته از طریق فناوریهای جدید توسعهیافته توسط شیمیدانان و فیزیکدانان به دست آمد: پراش پرتو ایکس، میکروسکوپ الکترونی، اولتراسانتریفیوژ و الکتروفورز. این مطالعات ساختار و عملکرد درشتمولکولها را آشکار ساخت.
یکی از نقاط عطف در این فرآیند کار لینوس پاولینگ در سال ۱۹۴۹ بود، که برای نخستین بار جهش ژنتیکی خاص در بیماران مبتلا به بیماری کمخونی داسیشکل را به تغییر اثباتشده در یک پروتئین فردی پیوند داد، یعنی هموگلوبین موجود در گلبولهای قرمز افراد هتروزیگوت یا هوموزیگوت.
برخورد میان بیوشیمی و ژنتیک
توسعه زیستشناسی مولکولی همچنین نتیجه برخورد دو رشتهای است که در طول سی سال نخست قرن بیستم پیشرفت چشمگیری داشتند: بیوشیمی و ژنتیک. رشته نخست، ساختار و عملکرد مولکولهایی را که موجودات زنده را میسازند، مطالعه میکند. بین سالهای ۱۹۰۰ و ۱۹۴۰، فرآیندهای مرکزی متابولیسم توصیف شدند: فرایند گوارش و جذب عناصر غذایی حاصل از تغذیه، مانند قندها. هر یک از این فرآیندها توسط یک آنزیم خاص کاتالیز میشود. آنزیمها پروتئین هستند، مانند پادتنهای موجود در خون یا پروتئینهای مسئول انقباض عضلانی. در نتیجه، مطالعه پروتئینها، ساختار و سنتز آنها، به یکی از اهداف اصلی بیوشیمیدانان تبدیل شد.
رشته دوم زیستشناسی که در آغاز قرن بیستم توسعه یافت، ژنتیک است. پس از کشف مجدد قوانین مندل از طریق مطالعات هوگو دو وریس، کارل کورنس و اریش فون چرمک در سال ۱۹۰۰، این علم به لطف اتخاذ یک جاندار مدل برای مطالعات ژنتیک توسط توماس هانت مورگان در سال ۱۹۱۰، یعنی مگس سرکه معروف (Drosophila melanogaster)، شروع به شکلگیری کرد. اندکی بعد، مورگان نشان داد که ژنها روی کروموزومها قرار دارند. در پی این کشف، او به کار با دروزوفیلا ادامه داد و در کنار بسیاری از گروههای تحقیقاتی دیگر، اهمیت ژن در حیات و تکامل ارگانیسمها را تأیید کرد. با این وجود، ماهیت شیمیایی ژنها و مکانیسم عمل آنها همچنان یک معما باقی ماند. زیستشناسان مولکولی خود را متعهد به تعیین ساختار، و توصیف روابط پیچیده میان ژنها و پروتئینها کردند.
توسعه زیستشناسی مولکولی صرفاً ثمره نوعی "ضرورت" ذاتی در تاریخ ایدهها نبود، بلکه پدیدهای مشخصاً تاریخی با تمام ناشناختهها، غیرقابلپیشبینیها و پیشامدهای آن بود: پیشرفتهای چشمگیر در فیزیک در آغاز قرن بیستم، تأخیر نسبی در توسعه زیستشناسی را برجسته کرد که تبدیل به "مرز جدید" در جستجوی دانش درباره دنیای تجربی شد. افزون بر این، پیشرفتهای نظریه اطلاعات و سایبرنتیک در دهه ۱۹۴۰، در پاسخ به نیازهای نظامی، تعداد قابل توجهی از ایدههای بارور و بهویژه استعارهها را به زیستشناسی جدید آورد.
انتخاب باکتریها و ویروس آنها (باکتریوفاژ) به عنوان مدلهایی برای مطالعه مکانیسمهای بنیادی حیات تقریباً طبیعی بود — آنها کوچکترین موجودات زنده شناخته شده هستند — و در عین حال ثمره انتخابهای فردی بود. این مدل موفقیت خود را بیش از همه مدیون شهرت و حس سازماندهی مکس دلبروک، فیزیکدان آلمانی است که توانست یک گروه تحقیقاتی پویا مستقر در ایالات متحده ایجاد کند که هدف انحصاری آن مطالعه باکتریوفاژها بود: گروه فاژ.[۱۱]
گروه فاژ یک شبکه غیررسمی از زیستشناسان بود که تحقیقات پایه را عمدتاً روی باکتریوفاژ T4 انجام دادند و در اواسط قرن بیستم مشارکتهای مهم و بنیادی در ژنتیک میکروبی و ریشههای زیستشناسی مولکولی داشتند. در سال ۱۹۶۱، سیدنی برنر، یکی از اعضای اولیه گروه فاژ، با فرانسیس کریک، لزلی بارنت و ریچارد واتس-توبین در آزمایشگاه کاوندیش در کمبریج همکاری کرد تا آزمایشهای ژنتیکی انجام دهند که ماهیت پایهای رمز ژنتیکی برای پروتئینها را اثبات میکرد.[۱۲] این آزمایشها که با جهشیافتههای ژن rIIB از باکتریوفاژ T4 انجام شد، نشان داد که برای ژنی که یک پروتئین را رمزگذاری میکند، سه باز متوالی از دیانایِ آن ژن، هر اسید آمینه متوالی در پروتئین را مشخص میکنند. بنابراین رمز ژنتیکی یک رمز سهگانه (تریپلت) است، که در آن هر سهگانه (که کدون نامیده میشود) یک اسید آمینه خاص را مشخص میکند. آنها همچنین دریافتند که کدونها در توالی دیانای که یک پروتئین را رمزگذاری میکند با یکدیگر همپوشانی ندارند و چنین توالیای از یک نقطه شروع ثابت خوانده میشود. در طول سالهای ۱۹۶۲–۱۹۶۴، پژوهشگران فاژ T4 فرصتی برای مطالعه عملکرد تقریباً تمامی ژنهایی که برای رشد باکتریوفاژ در شرایط آزمایشگاهی ضروری هستند فراهم کردند.[۱۳][۱۴] این مطالعات با کشف دو دسته از جهشیافتههای کشنده مشروط تسهیل شد. یک دسته از چنین جهشیافتههایی به عنوان جهشیافتههای امبر (amber) شناخته میشوند.[۱۵] دسته دیگر از این جهشیافتههای کشنده مشروط، جهشیافتههای حساس به دما نامیده میشوند.[۱۶] مطالعات روی این دو دسته از جهشیافتهها منجر به بینش قابل توجهی در بسیاری از مسائل اساسی بیولوژیک شد. بدین ترتیب درک روشنی از عملکرد و تعاملات پروتئینهای بهکار رفته در ماشینآلات همانندسازی دیانای، ترمیم دیانای و نوترکیبی دیانای به دست آمد. افزون بر این، درکی از فرایندهایی که ویروسها از طریق قطعات پروتئینی و اسید نوکلئیک در آنها مونتاژ میشوند (مورفوژنز مولکولی) حاصل گردید. همچنین نقش کدونهای پایاندهنده زنجیره روشن شد. یک مطالعه قابل توجه از جهشیافتههای امبر که در ژن رمزگذار پروتئین اصلی سر باکتریوفاژ T4 دارای نقص بودند، استفاده کرد.[۱۷] این آزمایش شواهد محکمی برای «فرضیه توالی» که بهطور گسترده پذیرفته شده بود اما پیش از ۱۹۶۴ هنوز اثبات نشده بود، فراهم کرد؛ مبنی بر اینکه توالی اسیدهای آمینه یک پروتئین توسط توالی نوکلئوتیدیِ ژنی که پروتئین را تعیین میکند، مشخص میشود. بنابراین، این مطالعه همخطی (co-linearity) ژن با پروتئین رمزگذاری شده توسط آن را نشان داد.
چشمانداز جغرافیایی پیشرفتهای زیستشناسی جدید پیش از هر چیز متأثر از کارهای پیشین بود. ایالات متحده که ژنتیک در آن سریعترین رشد را داشت، و بریتانیا که در آن همزیستی تحقیقات ژنتیکی و بیوشیمیایی در سطوح بسیار پیشرفته وجود داشت، در خط مقدم بودند. آلمان، مهد انقلابهای فیزیک، با بهترین ذهنها و پیشرفتهترین آزمایشگاههای ژنتیک در جهان، میبایست نقش اصلی را در توسعه زیستشناسی مولکولی ایفا میکرد. اما تاریخ به گونهای دیگر رقم خورد: روی کار آمدن نازیها در سال ۱۹۳۳ — و تا حدودی کمتر، سختگیری تدابیر توتالیتر در ایتالیای فاشیست — باعث مهاجرت شمار زیادی از دانشمندان یهودی و غیریهودی شد. اکثریت آنها به ایالات متحده یا بریتانیا گریختند و انگیزهای مضاعف برای پویایی علمی این کشورها فراهم کردند. این جابهجاییها در نهایت زیستشناسی مولکولی را از همان ابتدا به یک علم واقعاً بینالمللی تبدیل کرد.
تاریخچه بیوشیمی دیانای
الگو:Double helix2
مطالعه دیانای بخش مرکزی زیستشناسی مولکولی است.
نخستین جداسازی دیانای
بیوشیمیدانان در قرن نوزدهم در ابتدا دیانای و آرانای (مخلوط با یکدیگر) را از هسته سلولها جدا کردند. آنها نسبتاً سریع به ماهیت پلیمری "اسید نوکلئیکِ" جدا شده پی بردند، اما تنها بعداً متوجه شدند که نوکلئوتیدها از دو نوع هستند - یکی حاوی ریبوز و دیگری حاوی دیاکسیریبوز. همین کشف بعدی بود که منجر به شناسایی و نامگذاری دیانای به عنوان مادهای متمایز از آرانای شد.
فریدریش میشر (۱۸۴۴–۱۸۹۵) مادهای را در سال ۱۸۶۹ کشف کرد که آن را "نوکلئئین" نامید. اندکی بعد، او نمونه خالصی از مادهای را که اکنون با نام دیانای شناخته میشود از اسپرم ماهی آزاد جدا کرد و در سال ۱۸۸۹ شاگرد او، ریچارد آلتمن، آن را "اسید نوکلئیک" نامید. مشخص شد که این ماده فقط در کروموزومها وجود دارد.
در سال ۱۹۱۹ فیبوس لوین در مؤسسه راکفلر اجزای آن (چهار باز، قند و زنجیره فسفات) را شناسایی کرد و نشان داد که اجزای دیانای به ترتیب فسفات-قند-باز به هم متصل شدهاند. او هر یک از این واحدها را یک نوکلئوتید نامید و پیشنهاد کرد که مولکول دیانای متشکل از رشتهای از واحدهای نوکلئوتیدی است که از طریق گروههای فسفات، که «ستون فقرات» مولکول هستند، به هم پیوستهاند. با این حال لوین فکر میکرد زنجیره کوتاه است و بازها به همان ترتیبِ ثابت تکرار میشوند. توربیورن کاسپرسون و اینار هامرستن نشان دادند که دیانای یک پلیمر است.
کروموزومها و صفات موروثی
در سال ۱۹۲۷، نیکولای کلتسوف پیشنهاد کرد که صفات ارثی از طریق یک "مولکول غولپیکر وراثتی" به ارث میرسند که از "دو رشته آینهای که به روش نیمهحفاظتی تکثیر میشوند و هر رشته به عنوان الگو عمل میکند" ساخته شده است.[۱۸] مکس دلبروک، نیکولای تیموفیف-رسوفسکی و کارل جی. زیمر نتایجی را در سال ۱۹۳۵ منتشر کردند که نشان میداد کروموزومها مولکولهای بسیار بزرگی هستند که ساختارشان میتواند با تیمار توسط پرتو ایکس تغییر کند، و با تغییر ساختار آنها میشد ویژگیهای توارثی که تحت کنترل آن کروموزومها هستند را تغییر داد. در سال ۱۹۳۷ ویلیام آستبری نخستین الگوهای پراش پرتو ایکس دیانای را تولید کرد. او نتوانست ساختار صحیح را پیشنهاد کند اما الگوها نشان دادند که دیانای ساختار منظمی دارد و بنابراین ممکن است بتوان استنتاج کرد که این ساختار چیست.
در سال ۱۹۴۳، اسوالد ایوری و تیمی از دانشمندان کشف کردند که صفات اختصاصی شکل "صاف" (Smooth) باکتری پنوموکوک میتواند تنها با در دسترس قرار دادن شکل کشتهشده "صاف" (S) به فرم زنده "خشن" (R) منتقل شود. کاملاً غیرمنتظره، باکتریهای زنده فرم R پنوموکوک به سویه جدیدی از فرم S تبدیل شدند و صفات انتقال یافته S قابلیت توارث پیدا کردند. ایوری وسیله انتقال صفات را اصل ترانسفورماسیون نامید؛ او دیانای را به عنوان اصل ترانسفورماسیون شناسایی کرد و نه پروتئین که پیشتر تصور میشد. او در واقع آزمایش فردریک گریفیت را دوباره انجام داد. در سال ۱۹۵۳، آلفرد هرشی و مارتا چیس آزمایشی انجام دادند (آزمایش هرشی-چیس) که نشان داد در فاژ تی۲ (T2 phage)، دیانای همان ماده ژنتیکی است (هرشی جایزه نوبل را با لوریا به اشتراک گذاشت).
کشف ساختار دیانای
در دهه ۱۹۵۰، سه گروه تعیین ساختار دیانای را هدف خود قرار دادند. گروه اول که کار را شروع کرد در کالج کینگ لندن بود و توسط موریس ویلکینز رهبری میشد و بعداً روزالیند فرانکلین نیز به آن پیوست. گروه دیگر شامل فرانسیس کریک و جیمز واتسون در دانشگاه کمبریج بود. گروه سوم در مؤسسه فناوری کالیفرنیا (کلتک) بود و توسط لینوس پاولینگ رهبری میشد. کریک و واتسون با استفاده از میلهها و توپهای فلزی مدلهای فیزیکی ساختند که در آنها ساختارهای شیمیایی شناخته شده نوکلئوتیدها، و همچنین موقعیت شناختهشده اتصالات میان یک نوکلئوتید و نوکلئوتید بعدی در طول پلیمر را لحاظ میکردند. در کالج کینگ، موریس ویلکینز و روزالیند فرانکلین الگوهای پراش پرتو ایکس از الیاف دیانای را بررسی کردند. از میان سه گروه، تنها گروه لندن قادر به تولید الگوهای پراش با کیفیت خوب بود و بدین ترتیب دادههای کمیِ کافی درباره ساختار تولید کرد.
ساختار مارپیچ
در سال ۱۹۴۸، پاولینگ کشف کرد که بسیاری از پروتئینها دارای اَشکال مارپیچی (ببینید مارپیچ آلفا) هستند. پاولینگ این ساختار را از الگوهای پرتو ایکس و از تلاش برای مدلسازی فیزیکی ساختارها استنتاج کرده بود. (پاولینگ بعداً یک ساختار اشتباه از دیانای به شکل مارپیچ سهرشتهای بر اساس دادههای آستبری پیشنهاد کرد). حتی در دادههای اولیه پراش دیانای توسط موریس ویلکینز، مشهود بود که ساختار شامل مارپیچهایی است. اما این بینش تنها یک آغاز بود. سؤالاتی باقی ماند در مورد اینکه چند رشته به هم میرسند، آیا این تعداد برای هر مارپیچ یکسان است، آیا بازها به سمت محور مارپیچ اشاره دارند یا به دور از آن، و در نهایت زوایا و مختصات صریح تمام پیوندها و اتمها چه هستند. چنین پرسشهایی انگیزهبخشِ تلاشهای مدلسازی واتسون و کریک بود.
نوکلئوتیدهای مکمل
واتسون و کریک در مدلسازی خود را به آنچه که به لحاظ شیمیایی و بیولوژیکی معقول میدیدند محدود کردند. با این حال، گستره احتمالات بسیار وسیع بود. یک پیشرفت مهم در سال ۱۹۵۲ رخ داد، زمانی که اروین چارگاف به کمبریج سفر کرد و کریک را با شرح آزمایشهایی که در سال ۱۹۴۷ منتشر کرده بود، ملهم ساخت. چارگاف مشاهده کرده بود که نسبت چهار نوکلئوتید از یک نمونه دیانای تا نمونه دیگر متفاوت است، اما برای جفتهای خاصی از نوکلئوتیدها — آدنین و تیمین، گوانین و سیتوزین — این دو نوکلئوتید همیشه به نسبت مساوی وجود دارند.
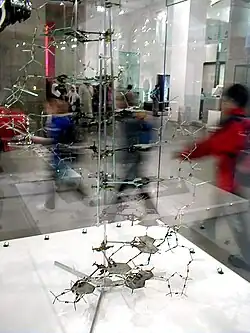
با استفاده از پراش پرتو ایکس و سایر دادههای روزالیند فرانکلین و اطلاعات او مبنی بر جفت بودن بازها، جیمز واتسون و فرانسیس کریک در سال ۱۹۵۳ به اولین مدل دقیق از ساختار مولکولی دیانای دست یافتند، که از طریق بازرسی روزالیند فرانکلین نیز پذیرفته شد. آنها از قوانین اروین چارگاف استفاده کردند که در یک گونه، درصد آدنین با درصد تیمین و درصد گوانین با درصد سیتوزین برابر است. آنها نوشتند: "از توجه ما دور نمانده است که جفتشدن خاصی که ما فرض کردهایم، بلافاصله یک مکانیسم احتمالی کپیبرداری برای ماده ژنتیکی را پیشنهاد میدهد."[۱۹] این کشف در ۲۸ فوریه ۱۹۵۳ اعلام شد؛ اولین مقاله واتسون/کریک در نشریه نیچر در ۲۵ آوریل ۱۹۵۳ ظاهر شد. سر لارنس براگ، مدیر آزمایشگاه کاوندیش، جایی که واتسون و کریک کار میکردند، سخنرانیای را در مدرسه پزشکی بیمارستان گای در لندن در روز پنجشنبه ۱۴ مه ۱۹۵۳ ایراد کرد، که منجر به مقالهای از ریچی کالدر در روزنامه News Chronicle لندن، در روز جمعه، ۱۵ مه ۱۹۵۳، با عنوان "چرا شما، شما هستید. نزدیکتر به راز حیات" شد. این خبر روز بعد به خوانندگان نیویورک تایمز رسید؛ ویکتور کی مکالنی در جریان تحقیق برای زندگینامه خود، "واتسون و دیانای: ساختن یک انقلاب علمی"، بریدۀ مقالهای شش پاراگرافی از نیویورک تایمز را پیدا کرد که از لندن نوشته شده و مورخ ۱۶ مه ۱۹۵۳ بود با تیتر "شکل 'واحد حیات' در سلول اسکن شد." این مقاله در یک نسخه اولیه چاپ شد و سپس برای ایجاد فضا برای اخباری که مهمتر تلقی میشدند حذف گردید. (نیویورک تایمز متعاقباً مقاله طولانیتری را در ۱۲ ژوئن ۱۹۵۳ منتشر کرد). روزنامه دانشجویی دوره کارشناسی دانشگاه کمبریج نیز در روز شنبه، ۳۰ مه ۱۹۵۳ مقاله کوتاه خود را در مورد این کشف منتشر کرد. اطلاعیه اولیه براگ در یک کنفرانس سولوای درباره پروتئینها در بلژیک در ۸ آوریل ۱۹۵۳ توسط مطبوعات گزارش نشد. در سال ۱۹۶۲ واتسون، کریک و موریس ویلکینز بهطور مشترک جایزه نوبل فیزیولوژی و پزشکی را برای تعیین ساختار دیانای دریافت کردند.
"دگم مرکزی"
مدل واتسون و کریک بلافاصله پس از ارائه توجه زیادی را به خود جلب کرد. واتسون و کریک در ۲۱ فوریه ۱۹۵۳ به نتیجهگیری خود رسیدند و نخستین اطلاعیه خود را در ۲۸ فوریه صادر کردند. در ارائهای تأثیرگذار در سال ۱۹۵۷، کریک "اصل بنیادین زیستشناسی مولکولی" (Central Dogma) را مطرح کرد که رابطه بین دیانای، آرانای و پروتئینها را پیشبینی مینمود و «فرضیه توالی» را به روشنی بیان داشت. تأیید حیاتی مکانیسم همانندسازی که توسط ساختار مارپیچ دوگانه دلالت میشد، در سال ۱۹۵۸ در قالب آزمایش مسلسون-استال به دست آمد. آرانای پیامرسان (mRNA) به عنوان یک واسطه بین توالیهای دیانای و سنتز پروتئین توسط سیدنی برنر، متیو مسلسون و فرانسوا ژاکوب در سال ۱۹۶۱ شناسایی شد.[۲۰] سپس کارهای کریک و همکارانش نشان داد که رمز ژنتیکی بر پایه سهگانههای غیرهمپوشان از بازها، به نام کدون استوار است، و هار گوبیند خورانا و دیگران رمز ژنتیکی را اندکی بعد (۱۹۶۶) رمزگشایی کردند. این یافتهها نمایانگر تولد زیستشناسی مولکولی است.
تاریخچه ساختار سوم آرانای
پیشتاریخ: ساختار مارپیچ آرانای
نخستین کارها در زیستشناسی ساختاری آرانای کم و بیش با کارهایی که در اوایل دهه ۱۹۵۰ روی دیانای انجام میشد همزمان بود. در مقاله مهم خود در سال ۱۹۵۳، واتسون و کریک پیشنهاد کردند که ازدحام واندروالسی ناشی از گروه هیدروکسیل (2`OH) در ریبوز مانع از آن میشود که آرانای ساختار مارپیچ دوگانهای مشابه مدلی که آنها پیشنهاد کردند — چیزی که ما اکنون به عنوان دیانای فرم B میشناسیم — اتخاذ کند.[۲۱] این موضوع پرسشهایی را در مورد ساختار سهبعدی آرانای برانگیخت: آیا این مولکول میتواند نوعی ساختار مارپیچ تشکیل دهد، و اگر چنین است، چگونه؟ مانند دیانای، کارهای ساختاری اولیه روی آرانای حول جداسازی پلیمرهای آرانای بومی برای تجزیه و تحلیل پراش الیاف متمرکز بود. تا حدی به دلیل ناهمگنی نمونههای آزمایش شده، الگوهای پراش الیاف اولیه معمولاً مبهم بودند و به راحتی قابل تفسیر نبودند. در سال ۱۹۵۵، ماریان گرونبرگ-ماناگو و همکارانش مقالهای منتشر کردند که در آن آنزیم پلینوکلئوتید فسفریلاز را توصیف میکردند؛ آنزیمی که گروه فسفاتی را از دیفسفاتهای نوکلئوتید جدا میکرد تا پلیمریزه شدن آنها را کاتالیز کند.[۲۲] این کشف به محققان اجازه داد تا پلیمرهای همگن نوکلئوتیدی را سنتز کنند، که سپس آنها را برای تولید مولکولهای دورشتهای با هم ترکیب کردند. این نمونهها قابلتفسیرترین الگوهای پراش الیافی که تا آن زمان به دست آمده بود را ارائه دادند و ساختاری منظم و مارپیچ را برای آرانای دورشتهای خویشاوند که با آنچه در دیانای مشاهده میشد متفاوت بود، پیشنهاد کردند. این نتایج راه را برای مجموعهای از تحقیقات روی ویژگیها و تمایلات مختلف آرانای هموار کرد. از اواخر دهه ۱۹۵۰ و اوایل دهه ۱۹۶۰، مقالات متعددی در موضوعات گوناگون ساختار آرانای منتشر شد، از جمله هیبریداسیون آرانای-دیانای،[۲۳] آرانای سهرشتهای،[۲۴] و حتی بلورشناسی در مقیاس کوچک از دینوکلئوتیدهای آرانای — G-C و A-U — در چیدمانهای مارپیچمانند ابتدایی.[۲۵] برای بررسی دقیقتر کارهای اولیه در زیستشناسی ساختاری آرانای، میتوانید به مقاله عصر بیداری آرانای: زیستشناسی ساختاری آرانای در سالهای اولیه نوشته الکساندر ریچ مراجعه کنید.[۲۶]
سرآغاز: ساختار بلوری tRNAPHE
در اواسط دهه ۱۹۶۰، نقش tRNA در سنتز پروتئین به شدت در حال بررسی بود. در این مرحله، دخالت ریبوزومها در سنتز پروتئین مشخص شده بود و نشان داده شده بود که یک رشته mRNA برای تشکیل این ساختارها ضروری است. در انتشاراتی در سال ۱۹۶۴، وارنر و ریچ نشان دادند که ریبوزومهای فعال در سنتز پروتئین حاوی مولکولهای tRNA هستند که در جایگاههای A و P متصل شدهاند، و ایده کمک این مولکولها به واکنش پپتیدیل ترانسفراز را به بحث گذاشتند.[۲۷] با این حال، با وجود توصیف گسترده بیوشیمیایی، پایه ساختاری عملکرد tRNA همچنان یک معما باقی مانده بود. در سال ۱۹۶۵، هالی و همکارانش نخستین مولکول tRNA را خالصسازی و توالییابی کردند و در ابتدا پیشنهاد کردند که یک ساختار برگشبدری به خود میگیرد، که بیشتر بر پایه توانایی مناطق خاصی از مولکول برای تشکیل ساختارهای ساقه-حلقه استوار بود.[۲۸] جداسازی tRNA نخستین گام بزرگ در زیستشناسی ساختاری آرانای محسوب میشد. پس از مقاله رابرت دبلیو. هالی، پژوهشگران متعددی کار بر روی جداسازی tRNA برای مطالعه بلورشناسی را آغاز کردند و در حین کار روشهای بهتری برای جداسازی مولکول توسعه دادند. تا سال ۱۹۶۸ چندین گروه بلورهای tRNA تولید کرده بودند، اما مشخص شد که کیفیت محدودی دارند و دادههایی در رزولوشنهای لازم برای تعیین ساختار ارائه نکردند.[۲۹] در سال ۱۹۷۱، کیم و همکارانش به پیشرفت دیگری دست یافتند و با استفاده از اسپرمین (یک پلیآمین طبیعی که به tRNA متصل شده و آن را تثبیت میکند) بلورهایی از مخمر tRNAPHE تولید کردند که تا رزولوشن ۲–۳ آنگستروم بازتاب مییافتند.[۳۰] با این حال، با وجود داشتن بلورهای مناسب، ساختار tRNAPHE بلافاصله در رزولوشن بالا حل نشد؛ بلکه به کارهای پیشگامانه در استفاده از مشتقات فلزات سنگین و زمان بسیار بیشتری نیاز بود تا نقشه چگالی با کیفیت بالا از کل مولکول تولید شود. در سال ۱۹۷۳، کیم و همکارانش نقشه ۴ آنگسترومی از مولکول tRNA تولید کردند که در آن میتوانستند کل ستون فقرات را بدون ابهام ردیابی کنند.[۳۱] این راهحل توسط بسیاری دیگر دنبال شد، زیرا محققان گوناگون کار کردند تا ساختار را بهینهسازی کنند و در نتیجه جزئیات جفت شدن بازها و برهمکنشهای انباشتگی را با دقت بیشتری روشن کنند و معماری منتشر شده از مولکول را تأیید نمایند.
ساختار tRNAPHE بهطور کلی در حوزه ساختار اسیدهای نوکلئیک قابل توجه است، زیرا این امر نشاندهنده اولین راهحل برای ساختار یک اسید نوکلئیک زنجیرهبلند از هر نوع — چه آرانای یا دیانای — بود که تقریباً یک دهه پیش از راهحل ریچارد ئی. دیکرسون برای یک دوازدهمرِ فرم B بود.[۳۲] همچنین، tRNAPHE بسیاری از برهمکنشهای سومی که در معماری آرانای دیده میشدند را نشان داد که تا سالهای آینده دستهبندی و کاملاً درک نمیشدند و مبنایی برای تمام تحقیقات ساختاری آینده آرانای فراهم کرد.
رنسانس: ریبوزیم کلهچکشی و اینترون گروه I: P4-6
برای مدتی قابل توجه پس از ساختارهای اولیه tRNA، حوزه ساختار آرانای به طرز چشمگیری پیشرفت نکرد. توانایی مطالعه ساختار آرانای به پتانسیل جداسازی هدف آرانای بستگی داشت. این امر سالها برای این رشته محدودکننده بود، تا حدی به این دلیل که سایر اهداف شناخته شده — یعنی ریبوزومها — بسیار دشوارتر جدا و متبلور میشدند. علاوهبر این، به دلیل آنکه دیگر اهداف جالب آرانای به سادگی شناسایی نشده بودند، یا به اندازه کافی درک نشده بودند تا جالب تلقی شوند، به سادگی کمبود مواردی برای مطالعه ساختاری وجود داشت. از اینرو، برای حدود بیست سال پس از انتشار اولیه ساختار tRNAPHE، ساختارهای تنها تعداد انگشتشماری از اهداف دیگر آرانای حل شدند، که تقریباً همه آنها متعلق به خانواده آرانای ناقل (tRNA) بودند.[۳۳] این کمبود تأسفبار در گستره، در نهایت عمدتاً به دلیل دو پیشرفت عمده در تحقیقات اسید نوکلئیک برطرف شد: شناسایی ریبوزیمها و توانایی تولید آنها از طریق رونویسی برونتنی (in vitro).
پس از انتشار مقاله توماس چک که حاکی از آن بود که اینترون گروه I تتراهیمنا به عنوان یک ریبوزیم خودکاتالیزگر عمل میکند،[۳۴] و گزارش سیدنی آلتمن از کاتالیز توسط آرانای ریبونوکلئاز P،[۳۵] چندین آرانای کاتالیزوری دیگر در اواخر دهه ۱۹۸۰ شناسایی شدند،[۳۶] از جمله ریبوزیم کلهچکشی. در سال ۱۹۹۴، مککی و همکاران ساختار یک «کمپلکس مهارکننده ریبوزیم آرانای-دیانای کلهچکشی» را در رزولوشن ۲٫۶ آنگستروم منتشر کردند که در آن فعالیت خودکاتالیزوری ریبوزیم از طریق اتصال به سوبسترای دیانای مختل شده بود.[۳۷] پیکربندی ریبوزیمی که در این مقاله منتشر شد در نهایت نشان داد که یکی از چندین حالت ممکن است، و اگرچه این نمونه خاص به لحاظ کاتالیزوری غیرفعال بود، اما ساختارهای بعدی معماری حالت-فعال آن را فاش کردهاند. این ساختار با انتشار ساختار دامنههای P4-P6 از اینترون گروه I تتراهیمنا توسط جنیفر دودنا دنبال شد که بخشی از ریبوزیمی است که در ابتدا توسط چک معروف شده بود.[۳۸] عبارت دوم در عنوان این نشریه — اصول بستهبندی آرانای — بهطور خلاصه ارزش این دو ساختار را نشان میدهد: برای نخستین بار، میتوانستند مقایسههایی بین ساختارهای توصیفشده و خوبِ tRNA و آرانایهای کروی خارج از خانواده ناقلها انجام دهند. این اجازه داد تا چارچوب دستهبندی برای ساختار سوم آرانای ساخته شود. اکنون امکانپذیر بود که حفظ الگوها (موتیفها)، تاشدگیها، و برهمکنشهای محلی تثبیتکننده مختلف پیشنهاد شوند. برای یک بررسی اولیه از این ساختارها و مفاهیم آنها، مقاله RNA FOLDS: Insights from recent crystal structures (تاشدگیهای آرانای: بینشهایی از ساختارهای بلوری اخیر)، نوشته دودنا و فره دامار (Ferre-D'Amare) را ببینید.[۳۹]
علاوهبر پیشرفتهای حاصل در تعیین ساختار جهانی از طریق بلورشناسی، اوایل دهه ۱۹۹۰ شاهد پیادهسازی انامآر (NMR) به عنوان تکنیکی قدرتمند در زیستشناسی ساختاری آرانای بود. همزمان با حل ساختارهای ریبوزیمی در مقیاس بزرگ به روش بلورشناسی، تعدادی از ساختارهای آرانایهای کوچک و آرانایهای پیچیده شده با داروها و پپتیدها با استفاده از NMR حل شدند.[۴۰] علاوه بر این، اکنون از NMR برای بررسی و تکمیل ساختارهای بلوری استفاده میشد، که نمونه آن در تعیین ساختار یک موتیف گیرنده تترالوپِ مجزا (isolated tetraloop-receptor motif) منتشر شده در سال ۱۹۹۷ مشاهده میشود.[۴۱] تحقیقاتی از این دست امکان توصیف دقیقتر از جفتشدن بازها و برهمکنشهای روی همچینیِ بازها (Base stacking) را که تاشدگیهای جهانی مولکولهای بزرگ آرانای را تثبیت میکنند، فراهم آورد. اهمیت درک موتیفهای ساختاری سوم آرانای، توسط میشل و کوستا در مقالهشان برای شناسایی موتیف تترالوپ به صورت پیشگویانهای به خوبی توصیف شده بود: «... جای تعجب نخواهد بود اگر مولکولهای خود-تایِ آرانای (self-folding RNA molecules) استفاده فشردهای تنها از مجموعه نسبتاً کوچکی از موتیفهای سوم داشته باشند. شناسایی این موتیفها به شدت به اقدامات مدلسازی کمک خواهد کرد، که تا زمانی که تبلور آرانایهای بزرگ کاری دشوار باقی بماند، ضروری خواهند بود».[۴۲]
عصر مدرن: عصر زیستشناسی ساختاری آرانای
رستاخیزِ زیستشناسی ساختاری آرانای در اواسط دهه ۱۹۹۰ سبب یک انفجار واقعی در حوزه تحقیقات ساختاری اسیدهای نوکلئیک شده است. از زمان انتشار ساختارهای کلهچکشی و P4-6، مشارکتهای عمدهای به این رشته وارد شده است. برخی از قابلتوجهترین نمونهها عبارتند از ساختارهای اینترونهای گروه I و گروه II،[۴۳] و ریبوزوم که توسط نناد بان و همکارانش در آزمایشگاه توماس استیتز حل شد.[۴۴] سه ساختار نخست با استفاده از رونویسی برونتنی تولید شدند و NMR نقش مهمی در بررسی اجزای جزئی هر چهار ساختار ایفا کرده است — که این گواهی بر ضرورت هر دو تکنیک در تحقیقات آرانای است. در سال ۲۰۰۹، جایزه نوبل شیمی به عادا یونات، ونکاترامان راماکریشنان و توماس استیتز به خاطر کارهای ساختاری آنها روی ریبوزوم اعطا شد، که نشانگر نقش برجستهای است که زیستشناسی ساختاری آرانای در زیستشناسی مولکولی مدرن به خود گرفته است.
تاریخچه بیوشیمی پروتئین
اولین جداسازی و طبقهبندی
پروتئینها در قرن هجدهم توسط آنتوان فورکروی و دیگران به عنوان یک گروه مجزا از مولکولهای بیولوژیکی شناخته شدند. اعضای این کلاس (که «آلبومینوئیدها»، Eiweisskörper، یا matières albuminoides نامیده میشدند) با توانایی آنها در لخته شدن (coagulate) یا لخته شدن/تودهای شدن (flocculate) تحت درمانهای مختلف مانند گرما یا اسید شناخته میشدند؛ نمونههای شناختهشده در آغاز قرن نوزدهم شامل آلبومین از سفیده تخممرغ، سرم آلبومین خون، فیبرین، و گلوتن گندم بودند. شباهت بین پختن سفیده تخممرغ و دَلَمه شدن شیر حتی در دوران باستان نیز تشخیص داده شده بود؛ برای نمونه، نام albumen برای پروتئین سفیده تخممرغ توسط پلینیوس از کلمه لاتین albus ovi (سفیده تخممرغ) ابداع شد.
با مشاوره یونس یاکوب برزلیوس، شیمیدان هلندی گرهاردوس یوهانس مولدر آنالیز عنصری پروتئینهای رایج حیوانی و گیاهی را انجام داد. در کمال تعجب همگان، تمام پروتئینها تقریباً فرمول تجربی یکسانی داشتند، حدوداً C400H620N100O120 با اتمهای منفرد گوگرد و فسفر. مولدر یافتههای خود را در دو مقاله (۱۸۳۷، ۱۸۳۸) منتشر کرد و فرض کرد که یک ماده پایه (Grundstoff) برای پروتئینها وجود دارد و توسط گیاهان سنتز شده و از آنها توسط حیوانات در عمل هضم جذب میشود. برزلیوس از حامیان اولیه این نظریه بود و در نامهای به تاریخ ۱۰ ژوئیه ۱۸۳۸ نام "پروتئین" را برای این ماده پیشنهاد داد:
نام پروتئین که آن را برای اکسید آلی فیبرین و آلبومین پیشنهاد میکنم، قصد داشتم از [کلمه یونانی] πρωτειος استخراج کنم، زیرا به نظر میرسد ماده ابتدایی یا اصلی تغذیه حیوانات باشد.
مولدر به شناسایی محصولات تخریب پروتئینها مانند اسید آمینه، لوسین ادامه داد، که برای آن وزن مولکولی ۱۳۱ دالتون را (تقریباً درست) به دست آورد.
خالصسازیها و اندازهگیری جرم
حداقل وزن مولکولی پیشنهاد شده توسط تحلیلهای مولدر تقریباً ۹ کیلودالتون بود که صدها برابر بزرگتر از سایر مولکولهای در حال مطالعه بود. ازاینرو، ساختار شیمیایی پروتئینها (ساختار اولیه آنها) تا سال ۱۹۴۹ یک حوزه فعال تحقیقاتی بود، زمانی که فرد سنگر انسولین را توالییابی کرد. نظریه (درست) که پروتئینها پلیمرهای خطی از اسیدهای آمینه هستند که توسط پیوندهای پپتیدی به هم متصل شدهاند بهطور مستقل و همزمان توسط فرانتس هوفمایستر و هرمان امیل فیشر در یک کنفرانس در سال ۱۹۰۲ ارائه شد. با این حال، برخی دانشمندان شک داشتند که چنین درشتمولکولهای بلندی بتوانند در محلول پایدار باشند. در نتیجه، نظریههای جایگزین متعددی درباره ساختار اولیه پروتئین پیشنهاد شد، بهعنوان مثال، فرضیه کلوئیدی که پروتئینها مجموعهای از مولکولهای کوچک هستند، فرضیه سیکلولِ دوروتی ماد رینچ، فرضیه دیکتوپیپرازین امیل آبرهالدن و فرضیه پیرول/پیپریدین تروئنسگارد (Troensgard) در سال ۱۹۴۲. بیشتر این نظریهها در توجیه این واقعیت که هضم پروتئینها به پپتیدها و اسیدهای آمینه منجر میشود، مشکل داشتند.
پروتئینها سرانجام توسط تئودور سودبرگ با استفاده از اولتراسانتریفیوژ تحلیلی به عنوان درشتمولکولهایی با ترکیب به خوبی تعریفشده (و نه مخلوطهای کلوئیدی) نشان داده شدند. امکان اینکه برخی از پروتئینها ارتباطات غیرکووالانسی از چنین درشتمولکولهایی باشند توسط گیلبرت اسمیتسون آدر (از طریق اندازهگیری فشار اسمزی هموگلوبین) و بعداً توسط فردریک ام. ریچاردز در مطالعاتش روی ریبونوکلئاز S نشان داده شد. طیفسنجی جرمی پروتئینها مدتهاست تکنیک مفیدی برای شناسایی تغییرات پس از ترجمه و، اخیراً، برای بررسی ساختار پروتئین بوده است.
اکثر پروتئینها به سختی در مقادیر بیشتر از میلیگرم خالصسازی میشوند، حتی با استفاده از مدرنترین روشها. از اینرو، مطالعات اولیه روی پروتئینهایی تمرکز داشتند که میتوانستند در مقادیر بزرگ خالص شوند، مانند پروتئینهای خون، سفیده تخممرغ، انواع سموم (توکسینها)، و آنزیمهای گوارشی/متابولیکی که از کشتارگاهها به دست میآمدند. بسیاری از تکنیکهای خالصسازی پروتئین در طول جنگ جهانی دوم در پروژهای به رهبری ادوین جوزف کوهن برای خالصسازی پروتئینهای خون جهت زنده نگه داشتن سربازان توسعه یافت. در اواخر دهه ۱۹۵۰، شرکت آرمور हॉट داگ کو (Armour Hot Dog Co.) مقدار ۱ کیلوگرم (معادل یک میلیون میلیگرم) از ریبونوکلئاز A لوزالمعده گاوی خالص تولید کرد و آن را با هزینه کم در اختیار دانشمندان سراسر جهان قرار داد.[۴۵] این عمل سخاوتمندانه باعث شد RNase A به پروتئین اصلی برای تحقیقات پایهای طی چند دهه بعدی تبدیل شود، که منجر به چندین جایزه نوبل گردید.
تاشدگی پروتئین و نخستین مدلهای ساختاری
مطالعه تاشدگی پروتئینها در سال ۱۹۱۰ با مقالهای مشهور از هریت چیک و سی. جی. مارتین آغاز شد، که در آن نشان دادند که لخته شدن (flocculation) یک پروتئین از دو فرآیند مجزا تشکیل شده است: رسوب پروتئین از محلول مسبوق به فرآیند دیگری به نام واسرشتن (دناتوراسیون) بود، که در آن پروتئین حلالیت بسیار کمتری پیدا کرده، فعالیت آنزیمی خود را از دست میداد و از نظر شیمیایی واکنشپذیرتر میشد. در اواسط دهه ۱۹۲۰، تیم آنسون و آلفرد میرسکی پیشنهاد کردند که دناتوراسیون فرآیندی بازگشتپذیر است، فرضیهای درست که ابتدا توسط برخی دانشمندان با تمسخر به "از پختگی درآوردن تخممرغ جوشیده" تشبیه شد. آنسون همچنین پیشنهاد کرد که دناتوراسیون فرآیندی دوحالتی ("همهیاهیچ") است که در آن یک انتقال بنیادین مولکولی منجر به تغییرات شدید در حلالیت، فعالیت آنزیمی و واکنشپذیری شیمیایی میشود؛ او همچنین خاطرنشان کرد که تغییرات انرژی آزاد در حین دناتوراسیون بسیار کوچکتر از تغییراتی است که معمولاً در واکنشهای شیمیایی رخ میدهد. در سال ۱۹۲۹، هسین وو فرض کرد که دناتوراسیون در واقع باز شدن پروتئین است، یک تغییر کاملاً ساختمانی (کانفورماسیونی) که منجر به قرار گرفتن زنجیرههای جانبی اسیدهای آمینه در معرض حلال میشود. بر اساس این فرضیه (صحیح)، قرار گرفتن زنجیرههای جانبی آلیفاتیک و واکنشپذیر در معرض حلال، پروتئین را کمتر محلول و بیشتر واکنشپذیر میکند، در حالی که از دست دادن یک پیکربندی خاص باعث از دست دادن فعالیت آنزیمی میشود. اگرچه فرضیه وو معقول در نظر گرفته شد، اما بلافاصله پذیرفته نشد، زیرا از ساختار پروتئین و آنزیمشناسی اطلاعات کمی در دست بود و سایر عوامل میتوانستند تغییرات حلالیت، فعالیت آنزیمی و واکنشپذیری شیمیایی را توجیه کنند. در اوایل دهه ۱۹۶۰، کریستین بی. آنفینسن نشان داد که تاشدن ریبونوکلئاز A کاملاً برگشتپذیر است و به هیچ کوفاکتور خارجی نیاز ندارد و این موضوع، "فرضیه ترمودینامیکی" تاشدگی پروتئین را تأیید کرد که بیان میکند حالت تاشده نمایانگر حداقل جهانی انرژی آزاد ترمودینامیکی برای پروتئین است.
فرضیه تاشدگی پروتئین با تحقیقات در مورد برهمکنشهای فیزیکی که ساختارهای پروتئینی تاشده را تثبیت میکنند، دنبال شد. نقش حیاتی برهمکنشهای آبگریز توسط دوروتی ماد رینچ و ایروینگ لانگمویر بهعنوان مکانیسمی که میتوانست ساختارهای سیکلول او را تثبیت کند فرض شد. اگرچه این فرضیه (صحیح) توسط جی. دی. برنال و دیگران حمایت شد، اما همراه با فرضیه سیکلول رد شد، که در دهه ۱۹۳۰ توسط لینوس پاولینگ (در میان دیگران) مردود اعلام شده بود. در عوض، پاولینگ مدافع این ایده شد که ساختار پروتئین عمدتاً با پیوندهای هیدروژنی تثبیت میشود، ایدهای که ابتدا توسط ویلیام آستبری (۱۹۳۳) مطرح شد. به طرز شگفتآوری، نظریه اشتباه پاولینگ در مورد پیوندهای هیدروژنی به مدلهای صحیح او برای عناصر ساختار دوم پروتئین یعنی مارپیچ آلفا و صفحه بتا منجر شد. برهمکنشهای آبگریز جایگاه والای خود را با مقاله معروفی در سال ۱۹۵۹ توسط والتر کاوزمان در مورد دناتوراسیون، که تا حدی بر اساس کارهای کای اولریک لیندرستروم-لانگ بود، بازیافت. ماهیت یونی پروتئینها توسط بیروم، وبر و آرنه تیسلیوس نشان داده شد، اما لیندرستروم-لانگ نشان داد که بارها معمولاً در دسترس حلال هستند و به یکدیگر پیوند ندارند (۱۹۴۹).
ساختار دوم و ساختار سوم پروتئین (با وضوح پایین) پروتئینهای کروی، در ابتدا با روشهای هیدرودینامیکی، مانند اولتراسانتریفیوژ تحلیلی و دوشکستی جریان بررسی شد. روشهای طیفسنجی برای بررسی ساختار پروتئین (مانند دورنگنمایی دورانی، فلورسانس، جذب مادون قرمز و فرابنفش نزدیک) در دهه ۱۹۵۰ توسعه یافت. نخستین ساختارهای با وضوح اتمی پروتئینها با استفاده از بلورشناسی پرتو ایکس در دهه ۱۹۶۰ و با استفاده از NMR در دهه ۱۹۸۰ حل شدند. تا سال ۲۰۱۹، بانک داده پروتئین دارای بیش از ۱۵۰٬۰۰۰ ساختار با وضوح اتمی از پروتئینها بود. در دوران اخیر، میکروسکوپ الکترونی کرایو از مجموعههای ماکرومولکولی به وضوح اتمی دست یافته است و پیشبینی ساختار پروتئین به روش محاسباتی برای دامنههای ساختاری پروتئینهای کوچک در حال نزدیک شدن به وضوح اتمی است.
جستارهای وابسته
منابع
- ↑ Weaver, Warren (6 November 1970). "Molecular Biology: Origin of the Term". Science. 170 (3958): 581–582. Bibcode:1970Sci...170R.581W. doi:10.1126/science.170.3958.581-a. ISSN 0036-8075. JSTOR 1731491. PMID 4919180.
- ↑ Judson, Horace (1996). The Eighth Day of Creation: Makers of the Revolution in Biology. ISBN 0879694785.
- ↑ Beadle, G. W.; Tatum, E. L. (1941). "Genetic Control of Biochemical Reactions in Neurospora". PNAS. 27 (11): 499–506. Bibcode:1941PNAS...27..499B. doi:10.1073/pnas.27.11.499. PMC 1078370. PMID 16588492.
- ↑ Avery, Oswald T.; MacLeod, Colin M.; McCarty, Macylyn (1944-02-01). "Studies on the Chemical Nature of the Substance Inducing Transformation of Pneumococcal Types: Induction of Transformation by a Desoxyribonucleic Acid Fraction Isolated from Pneumococcus Type III". Journal of Experimental Medicine. 79 (2): 137–158. doi:10.1084/jem.79.2.137. PMC 2135445. PMID 19871359.
- ↑ Hershey, A.D. and Chase, M. (1952) "Independent functions of viral protein and nucleic acid in growth of bacteriophage" J Gen Physiol.
- ↑ Watson J.D.; Crick F.H.C. (1953). "A Structure for Deoxyribose Nucleic Acid" (PDF). Nature. 171 (4356): 737–738. Bibcode:1953Natur.171..737W. doi:10.1038/171737a0. PMID 13054692. S2CID 4253007. Retrieved 13 Feb 2007.
- ↑ Jacob F, Monod J (1961). "Genetic regulatory mechanisms in the synthesis of proteins". J Mol Biol. 3 (3): 318–356. doi:10.1016/S0022-2836(61)80072-7. PMID 13718526.
- ↑ Burakoff, Maddie (25 April 2023). "Rosalind Franklin's role in DNA discovery gets a new twist". AP News. Retrieved 25 April 2023.
- ↑ Anthes, Emily (25 April 2023). "Untangling Rosalind Franklin's Role in DNA Discovery, 70 Years On - Historians have long debated the role that Dr. Franklin played in identifying the double helix. A new opinion essay argues that she was an "equal contributor."". The New York Times. Retrieved 26 April 2023.
{{cite news}}: نگهداری یادکرد:خدمت بایگانی منسوخ (رده) - ↑ Cobb, Mathew; Comfort, Nathaniel (25 April 2023). "What Rosalind Franklin truly contributed to the discovery of DNA's structure - Franklin was no victim in how the DNA double helix was solved. An overlooked letter and an unpublished news article, both written in 1953, reveal that she was an equal player". Nature. 616 (7958): 657–660. doi:10.1038/d41586-023-01313-5. PMID 37100935. Retrieved 25 April 2023.
- ↑ Keen, E. C. (2015). "A century of phage research: Bacteriophages and the shaping of modern biology". BioEssays. 37 (1): 6–9. doi:10.1002/bies.201400152. PMC 4418462. PMID 25521633.
- ↑ Crick FH, Barnett L, Brenner S, Watts-Tobin RJ (1961). "General nature of the genetic code for proteins". Nature. 192 (4809): 1227–32. Bibcode:1961Natur.192.1227C. doi:10.1038/1921227a0. PMID 13882203.
- ↑ Edgar RS Conditional lethals: in Phage and the Origins of Molecular Biology (2007) Edited by John Cairns, Gunther S. Stent, and James D. Watson, Cold Spring Harbor Laboratory of Quantitative Biology, Cold Spring Harbor, Long Island, New York شابک ۹۷۸−۰−۸۷۹۶۹−۸۰۰−۳
- ↑ Edgar B (2004). "The genome of bacteriophage T4: an archeological dig". Genetics. 168 (2): 575–82. doi:10.1093/genetics/168.2.575. PMC 1448817. PMID 15514035.
- ↑ Epstein RH, Bolle A, Steinberg CM, Kellenberger E, Boy de la Tour E, Chevalley R, Edgar RS, Susman M, Denhardt GH, Lielausis A (1963). "Physiological studies of conditional lethal mutants of bacteriophage T4D". Cold Spring Harbor Symposia on Quantitative Biology. 28: 375–394. doi:10.1101/SQB.1963.028.01.053.
- ↑ Edgar RS, Lielausis I (1964). "Temperature-sensitive mutants of bacteriophage T4D: Their isolation and Characterization". Genetics. 49 (4): 649–62. doi:10.1093/genetics/49.4.649. PMC 1210603. PMID 14156925.
- ↑ Sarabhai AS, Stretton AO, Brenner S, Bolle A (1964). "Co-linearity of the gene with the polypeptide chain". Nature. 201 (4914): 13–7. Bibcode:1964Natur.201...13S. doi:10.1038/201013a0. PMID 14085558.
- ↑ Soyfer VN (September 2001). "The consequences of political dictatorship for Russian science". Nat. Rev. Genet. 2 (9): 723–9. doi:10.1038/35088598. PMID 11533721. S2CID 46277758.
- ↑ Watson, James; Crick, Francis (April 1953). "Molecular Structure of Nucleic Acids: A Structure for Deoxyribose Nucleic Acid". Nature. 171 (4356): 737–8. Bibcode:1953Natur.171..737W. doi:10.1038/171737a0. PMID 13054692.
- ↑ Brenner, S.; Jacob, F.; Meselson, M. (May 1961). "An Unstable Intermediate Carrying Information from Genes to Ribosomes for Protein Synthesis". Nature (in English). 190 (4776): 576–581. Bibcode:1961Natur.190..576B. doi:10.1038/190576a0. ISSN 1476-4687. PMID 20446365.
- ↑ Watson JD, Crick FH (April 1953). "Molecular structure of nucleic acids; a structure for deoxyribose nucleic acid" (PDF). Nature. 171 (4356): 737–738. Bibcode:1953Natur.171..737W. doi:10.1038/171737a0. PMID 13054692. S2CID 4253007.
- ↑ Grunberg-Manago M, Ortiz PJ, Ochoa S (November 1955). "Enzymatic synthesis of nucleic acidlike polynucleotides". Science. 122 (3176): 907–10. Bibcode:1955Sci...122..907G. doi:10.1126/science.122.3176.907. PMID 13274047.
- ↑ Rich A, Davies DR (July 1956). "A new, two-stranded helical structure: polyadenylic acid and polyuridylic acid". J. Am. Chem. Soc. 78 (14): 3548–3549. Bibcode:1956JAChS..78R3548R. doi:10.1021/ja01595a086.
- ↑ Felsenfeld G, Davies DR, Rich A (April 1957). "Formation of a three-stranded polynucleotide molecule". J. Am. Chem. Soc. 79 (8): 2023–2024. Bibcode:1957JAChS..79.2023F. doi:10.1021/ja01565a074.
- ↑ Sobll H, Tomita K, Rich A (June 1963). "The crystal structure of an intermolecular complex containing a guanine and a cytosine derivative". Proc. Natl. Acad. Sci. U.S.A. 49 (6): 885–92. Bibcode:1963PNAS...49..885S. doi:10.1073/pnas.49.6.885. PMC 300027. PMID 13989773.
- ↑ Rich A (May 2009). "The era of RNA awakening: structural biology of RNA in the early years". Q. Rev. Biophys. 42 (2): 117–37. doi:10.1017/S0033583509004776. PMID 19638248. S2CID 2285884.
- ↑ Warner JR, Rich A (June 1964). "The number of soluble RNA molecules on reticulocyte polyribosomes". Proc. Natl. Acad. Sci. U.S.A. 51 (6): 1134–41. Bibcode:1964PNAS...51.1134W. doi:10.1073/pnas.51.6.1134. PMC 300225. PMID 14215634.
- ↑ Holley, RW, Apgar, J, Everett, GA, Madison, JT, Marguisse, M, Merrill, SH, Penwick, JR, Zamir (March 1965). "Structure of a ribonucleic acid". Science. 147 (3664): 1462–5. Bibcode:1965Sci...147.1462H. doi:10.1126/science.147.3664.1462. PMID 14263761. S2CID 40989800.
{{cite journal}}: نگهداری یادکرد:نامهای متعدد:فهرست نویسندگان (رده) - ↑ Kim SH, Rich A (December 1968). "Single crystals of transfer RNA: an X-ray diffraction study". Science. 162 (3860): 1381–4. Bibcode:1968Sci...162.1381K. doi:10.1126/science.162.3860.1381. PMID 4880852. S2CID 43053527.
- ↑ Kim SH, Quigley G, Suddath FL, Rich A (April 1971). "High-resolution x-ray diffraction patterns of crystalline transfer RNA that show helical regions". Proc. Natl. Acad. Sci. U.S.A. 68 (4): 841–5. doi:10.1073/pnas.68.4.841. PMC 389056. PMID 5279525.
- ↑ Kim SH, Quigley GJ, Suddath FL, McPherson A, Sneden D, Kim JJ, Weinzierl J, Rich A (January 1973). "Three-dimensional structure of yeast phenylalanine transfer RNA: folding of the polynucleotide chain". Science. 179 (4070): 285–8. Bibcode:1973Sci...179..285K. doi:10.1126/science.179.4070.285. PMID 4566654. S2CID 28916938.
- ↑ Drew HR, Wing RM, Takano T, Broka C, Tanaka S, Itakura K, Dickerson RE (April 1981). "Structure of a B-DNA dodecamer: conformation and dynamics". Proc. Natl. Acad. Sci. U.S.A. 78 (4): 2179–83. Bibcode:1981PNAS...78.2179D. doi:10.1073/pnas.78.4.2179. PMC 319307. PMID 6941276.
- ↑ Shen LX, Cai Z, Tinoco I (August 1995). "RNA structure at high resolution". FASEB J. 9 (11): 1023–33. doi:10.1096/fasebj.9.11.7544309. PMID 7544309. S2CID 40621440.
- ↑ Cech TR, Zaug AJ, Grabowski PJ (December 1981). "In vitro splicing of the ribosomal RNA precursor of Tetrahymena: involvement of a guanosine nucleotide in the excision of the intervening sequence". Cell. 27 (3 Pt 2): 487–96. Bibcode:1981Cell...27..487C. doi:10.1016/0092-8674(81)90390-1. PMID 6101203. S2CID 17674600.
- ↑ Stark BC, Kole R, Bowman EJ, Altman S (August 1978). "Ribonuclease P: an enzyme with an essential RNA component". Proc. Natl. Acad. Sci. U.S.A. 75 (8): 3717–21. Bibcode:1978PNAS...75.3717S. doi:10.1073/pnas.75.8.3717. PMC 392857. PMID 358197.
- ↑ Prody GA, Bakos JT, Buzayan JM, Schneider IR, Bruening G (March 1986). "Autolytic Processing of Dimeric Plant Virus Satellite RNA". Science. 231 (4745): 1577–1580. Bibcode:1986Sci...231.1577P. doi:10.1126/science.231.4745.1577. PMID 17833317. S2CID 21563490.
- ↑ Pley HW, Flaherty KM, McKay DB (November 1994). "Three-dimensional structure of a hammerhead ribozyme". Nature. 372 (6501): 68–74. Bibcode:1994Natur.372...68P. doi:10.1038/372068a0. PMID 7969422. S2CID 4333072.
- ↑ Cate JH, Gooding AR, Podell E, Zhou K, Golden BL, Kundrot CE, Cech TR, Doudna JA (September 1996). "Crystal structure of a group I ribozyme domain: principles of RNA packing". Science. 273 (5282): 1678–85. Bibcode:1996Sci...273.1678C. doi:10.1126/science.273.5282.1678. PMID 8781224. S2CID 38185676.
- ↑ Ferré-D'Amaré AR, Doudna JA (1999). "RNA folds: insights from recent crystal structures". Annu Rev Biophys Biomol Struct. 28 (1): 57–73. doi:10.1146/annurev.biophys.28.1.57. PMID 10410795.
- ↑ Ramos A, Gubser CC, Varani G (June 1997). "Recent solution structures of RNA and its complexes with drugs, peptides and proteins". Curr. Opin. Struct. Biol. 7 (3): 317–23. doi:10.1016/S0959-440X(97)80046-2. PMID 9204272.
- ↑ Butcher SE, Dieckmann T, Feigon J (December 1997). "Solution structure of a GAAA tetraloop receptor RNA". EMBO J. 16 (24): 7490–9. doi:10.1093/emboj/16.24.7490. PMC 1170348. PMID 9405377.
- ↑ Costa M, Michel F (March 1995). "Frequent use of the same tertiary motif by self-folding RNAs". EMBO J. 14 (6): 1276–85. doi:10.1002/j.1460-2075.1995.tb07111.x. PMC 398207. PMID 7720718.
- ↑ پیدیبی 3BWP; Toor N, Keating KS, Taylor SD, Pyle AM (April 2008). "Crystal structure of a self-spliced group II intron". Science. 320 (5872): 77–82. Bibcode:2008Sci...320...77T. doi:10.1126/science.1153803. PMC 4406475. PMID 18388288.; rendered with PyMOL
- ↑ پیدیبی 1FFK; Ban N, Nissen P, Hansen J, Moore PB, Steitz TA (August 2000). "The complete atomic structure of the large ribosomal subunit at 2.4 A resolution". Science. 289 (5481): 905–20. Bibcode:2000Sci...289..905B. CiteSeerX 10.1.1.58.2271. doi:10.1126/science.289.5481.905. PMID 10937989.; rendered with PyMOL
- ↑ Richards FM (1972). "The 1972 nobel prize for chemistry". Science. 178 (4060): 492–3. Bibcode:1972Sci...178..492R. doi:10.1126/science.178.4060.492. PMID 17754377.
- Fruton, Joseph. Proteins, Genes, Enzymes: The Interplay of Chemistry and Biology. New Haven: Yale University Press. 1999. شابک ۰−۳۰۰−۰۷۶۰۸−۸
- Lily E. Kay, The Molecular Vision of Life: Caltech, the Rockefeller Foundation, and the Rise of the New Biology, Oxford University Press, Reprint 1996
- Morange, Michel. A History of Molecular Biology. Cambridge, MA: Harvard University Press. 1998.
- Fry, Michael. Landmark Experiments in Molecular Biology. Amsterdam: Elsevier/Academic Press. 2016. شابک ۹۷۸−۰−۱۲−۸۰۲۰۷۴−۶
| نمای کلی |
| ||||||
|---|---|---|---|---|---|---|---|
| مهندسی |
| ||||||
| |||||||


| زمینهها، رشتهها |
|  |
|---|---|---|
| موسسات |
| |
| نظریهها، مفاهیم | ||
| تاریخچه | ||
| مرتبط |
| |
| ||