فونای کوچک صدفدار
فونای کوچک صدفدار (Small shelly fauna)، سنگوارههای کوچک صدفدار (Small shelly fossils یا SSF) یا سنگوارههای اسکلتی اولیه (Early skeletal fossils یا ESF)،[۱] سنگوارههایی کانیسازیشده (معدنیشده) هستند که طول بسیاری از آنها تنها چند میلیمتر است و دارای یک سابقهٔ فسیلیِ تقریباً پیوسته از آخرین مراحل دورهٔ ادیاکاران تا پایان کامبرین پیشین میباشند. آنها بسیار متنوع هستند و هیچ تعریف رسمی برای «فونای کوچک صدفدار» یا «سنگوارههای کوچک صدفدار» وجود ندارد. تقریباً همهٔ آنها از صخرههایی قدیمیتر نسبت به سنگوارههای آشناتری چون تریلوبیتها به دست آمدهاند. از آنجا که بیشتر این سنگوارهها (SSF) از طریق پوشیده شدن سریع با فسفات حفظ شدهاند و این روشِ حفظشدگی عمدتاً به دورههای ادیاکاران پسین و کامبرین پیشین محدود میشود، جانورانی که آنها را ایجاد کردهاند ممکن است در واقع زودتر پدید آمده و پس از این بازهٔ زمانی نیز به بقای خود ادامه داده باشند.
برخی از این سنگوارهها نشاندهندهٔ اسکلت کامل ارگانیسمهای کوچک هستند، از جمله گونهٔ اسرارآمیز کلاودینا (Cloudina) و برخی نرمتنان حلزونمانند. با این حال، بخش عمدهٔ این سنگوارهها، قطعات یا بقایای جداشدهٔ ارگانیسمهای بزرگتر هستند، از جمله اسفنجها، نرمتنان، هالکیرییدهای (Halkieriids) لیسهمانند، بازوپایان، خارپوستان و ارگانیسمهای شبیه به کرمهای مخملی که ممکن است به اجداد بندپایان نزدیک بودهباشند.
یکی از توضیحات اولیه برای ظهور این سنگوارهها – و در نتیجه فرگشت اسکلتهای کانیسازیشده – حاکی از افزایش ناگهانی غلظت کلسیم در اقیانوسها بود. با این حال، بسیاری از این فسیلها از کانیهای دیگری نظیر سیلیس ساخته شدهاند. از آنجا که نخستین سنگوارههای کوچک صدفدار تقریباً همزمان با دورانی ظاهر میشوند که ارگانیسمها برای نخستین بار به منظور در امان ماندن از شکار به حفاری در بستر روی آوردند، به احتمال زیاد این صدفها نشاندهندهٔ گامهای اولیه در یک مسابقه تسلیحاتی فرگشتی میان شکارچیان و طعمههای بهطور فزایندهای مجهز به سیستم دفاعی هستند. از سوی دیگر، اسکلتهای معدنی (کانیسازیشده) ممکن است صرفاً به این دلیل فرگشت یافته باشند که قویتر هستند و تولیدشان انرژی کمتری نسبت به اسکلتهای تماماً آلی (نظیر اسکلت حشرات) میطلبد. با این حال، این واقعیت همچنان پابرجاست که جانوران از کانیهایی استفاده میکردند که به آسانترین شکل در دسترس بود.
اگرچه اندازهٔ کوچک و ماهیت اغلب تکهتکهشدهٔ این سنگوارهها، شناسایی و طبقهبندی آنها را دشوار میسازد، اما آنها شواهد بسیار مهمی را در مورد چگونگی فرگشت گروههای اصلی بیمهرگان دریایی، و به ویژه در مورد سرعت و الگوی فرگشت در انفجار کامبرین ارائه میدهند. آنها علاوه بر اینکه شامل نخستین نمایندگان شناختهشده از برخی شاخههای (Phyla) امروزی هستند، این مزیت بزرگ را دارند که سابقهٔ تقریباً پیوستهای از ارگانیسمهای کامبرین پیشین را که بدنشان دارای بخشهای سخت بوده است، ارائه میدهند.
تاریخچه کشف
اصطلاح «سنگوارههای کوچک صدفدار» (Small shelly fossils) توسط ساموئل متیوز (Samuel Matthews) و وی.وی. میسارژفسکی (V. V. Missarzhevsky) در سال ۱۹۷۵ ابداع شد.[۲] این اصطلاح اغلب به صورت مخفف «صدفداران کوچک» (Small shellies) یا «SSF» به کار میرود.[۳] این اصطلاح کاملاً یک تسمیه غلط (Misnomer) است؛ چرا که همانطور که استفان بنگتسون (Stefan Bengtson) میگوید: «آنها همیشه کوچک نیستند، معمولاً صدفدار نیستند - و این اصطلاح به همان اندازه میتواند برای حلزونهای دریاییِ (Periwinkles) دوره پلیستوسن نیز به کار رود.» دیرینهشناسان نتوانستهاند اصطلاح بهتری ابداع کنند و ناامیدی خود را در قالب شوخیهایی نظیر «سنگوارههای کوچک احمقانه» (Small silly fossils) و «کوچولوهای بدبو» (Small smellies) ابراز کردهاند.[۳]
اکثریت قریب به اتفاقِ تمامی ویژگیهای ریختشناختی (مورفولوژیک) ارگانیسمهای صدفدارِ دورههای بعدی، در میان همین سنگوارهها ظاهر میشوند.[۳][۴] هیچکس تلاشی برای ارائهٔ یک تعریف رسمی از «فونای کوچک صدفدار»، «سنگوارههای کوچک صدفدار» یا دیگر عبارات مشابه نکرده است.[۵]
نمونهها و گاهی مجموعههای کاملاً غنی از این سنگوارهها بین سالهای ۱۸۷۲ تا ۱۹۶۷ کشف شدند، اما هیچکس به این نتیجه نرسید که کامبرین پیشین، علاوه بر تریلوبیتها، آرکئوسیاتاها (Archaeocyathans) و غیره که بهطور سنتی شناخته شده بودند، دربرگیرندهٔ طیف متنوعی از جانوران دیگر نیز بوده است. در اواخر دهه ۱۹۶۰، دیرینهشناسان اتحاد جماهیر شوروی مجموعههای حتی غنیتری از این سنگوارهها را در بسترهای پایینتر و در نتیجه قدیمیتر از بسترهای حاوی تریلوبیتهای کامبرین کشف کردند. متأسفانه مقالاتی که به توصیف این اکتشافات میپرداختند به زبان روسی بودند، و در نهایت مقالهٔ سال ۱۹۷۵ متیوز و میسارژفسکی برای نخستین بار توجه جدیِ جهانِ غیرروسزبان را به این سنگوارهها (SSFs) جلب کرد.[۳]
در آن زمان پیشاپیش بحثهای شدیدی در مورد فرگشت اولیهٔ جانوران در جریان بود. پرستون کلاود (Preston Cloud) در سالهای ۱۹۴۸ و ۱۹۶۸ استدلال کرد که این فرایند «انفجاری» بوده است،[۶] و در اوایل دهه ۱۹۷۰، نیلز الدرج و استیون جی گولد نظریهٔ تعادل نقطهای (Punctuated equilibrium) خود را توسعه دادند، که فرگشت را به عنوان فواصل طولانی از ایستاییِ نسبی در نظر میگیرد که با دورههای کوتاهی از تغییرات سریع «قطع» (نقطهگذاری) شدهاند.[۷] از سوی دیگر، تقریباً در همان زمان ویات دورهام (Wyatt Durham) و مارتین گلیسنر هر دو استدلال کردند که فرمانرو جانوران دارای تاریخچهٔ طولانیای در دورهٔ پیشینزیوی (Proterozoic) بوده است که به دلیل کمبود سنگوارهها پنهان مانده است.[۳][۸]
پراکندگی
مجموعههای غنیای در چین، روسیه، مغولستان، قزاقستان، استرالیا و جنوبگان یافت شدهاند؛ و مجموعههایی با تنوع متوسط در هند، پاکستان، ایران، اروپا و آمریکای شمالی به دست آمدهاند.[۳] در مورد محدودهٔ زمانیِ این سنگوارهها دیدگاههای متفاوتی وجود دارد. اکتشافات روسیه در اواخر دهه ۱۹۶۰ به عصر توموتین (Tommotian) از دورهٔ کامبرین نسبت داده شد و برای مدتی اصطلاح «فونای کوچک صدفدار» تنها برای آن عصر به کار میرفت. از طرف دیگر، بنگتسون سنگوارههای دورهٔ ادیاکاران نظیر کلاودینا و سنگوارههای پس از عصر توموتین مانند میکرودیکتیون (Microdictyon) از شیلهای مائوتیانشان را نیز در دستهٔ «SSF» قرار میدهد.[۳] این سنگوارهها در لایههایی نیز یافت شدهاند که دربرگیرندهٔ فسیلِ تریلوبیتها هستند.[۹] پیشتر تصور میشد که انقراض دستهجمعی در پایان عصر بوتومین (Botomian) در دورهٔ کامبرین، بیشتر این فونای کوچک را نابود کرده است، به استثنای هالکیرییدها، ویواکسییدها و گونهٔ پوژتایا (Pojetaia).[۱۰]
نحوه حفظشدگی
سنگوارههای کوچک صدفدار معمولاً، هرچند نه همیشه، در فسفات حفظ شدهاند. در حالی که برخی از این صدفداران در اصل فسفاتی بودهاند، در بیشتر موارد فسفات نشاندهندهٔ جایگزینی برای کلسیت اولیه است.[۱۱] این سنگوارهها معمولاً با قرار دادن سنگ آهک در یک اسید ضعیف، معمولاً اسید استیک، از آن استخراج میشوند؛ پس از حل شدن سنگ، سنگوارههای فسفاته باقی میمانند.[۱۲] به نظر میرسد حفظشدگیِ ریزسنگوارهها (میکروفسیلها) به وسیلهٔ فسفات پس از کامبرین پیشین رواج کمتری یافته باشد، که شاید نتیجهٔ افزایشِ آشفتگی و دستکاریِ بستر دریاها توسط جانوران حفار باشد.[۱۱] بدون وجود این شیوهٔ تشکیل فسیل، ممکن بود بسیاری از سنگوارههای کوچک صدفدار حفظ نشوند – یا استخراج آنها از سنگ غیرممکن باشد؛ بنابراین جانورانی که این سنگوارهها را تولید کردهاند ممکن است پس از کامبرین پیشین نیز زیسته باشند – انقراض ظاهریِ بیشتر این ارگانیسمها در پایان کامبرین ممکن است صرفاً یک خطای دید باشد.[۱۲][۱۳][۴] دههها تصور میشد که هالکیرییدها، که «صفحات زرهیِ» آنها نوع رایجی از این سنگوارههاست، در انقراض دستهجمعیِ پایانِ عصر بوتومین نابود شدهاند؛ اما در سال ۲۰۰۴، صفحات زرهی هالکیرییدها از صخرههای کامبرین میانی در استرالیا گزارش شد که به خوبی ۱۰ میلیون سال متأخرتر از زمان انقراض مفروض است.[۱۴]
کانیهای بهکاررفته در صدفها
این سنگوارهها از انواع مختلفی از کانیها تشکیل شدهاند که مهمترین آنها سیلیس، کلسیم فسفات و کلسیم کربنات هستند.[۳] کانیهای مورد استفاده توسط هر ارگانیسم تحت تأثیر شیمیِ اقیانوسهایی است که ارگانیسم برای نخستین بار در آنها فرگشت یافته است، اما استفاده از آنها حتی در صورت تغییر ترکیب شیمیایی اقیانوس نیز ادامه مییابد. برای نمونه، در دورهٔ ادیاکاران و عصر نماکیت-دالدینین (Nemakit-Daldynian) از دورهٔ کامبرین، جانورانی که از کلسیم کربنات استفاده میکردند، شکلِ آراگونیت (Aragonite) آن را به کار میبردند. از طرف دیگر، جانورانی که نخستین بار در عصرِ بعدی (توموتین) ظاهر شدند، از شکل دیگری یعنی کلسیت استفاده کردند.[۱۵]
کشفِ اخیرِ یک شکمپایِ مدرن که در نزدیکی چاههای گرمابیِ اعماق دریا زندگی میکند، تأثیر همزمانِ محیطهای شیمیاییِ محلیِ گذشته و معاصر را نشان میدهد: صدف آن از آراگونیت ساخته شده است، که در نخستین سنگوارههای نرمتنان یافت میشود؛ اما همچنین دارای صفحات زرهی در کنارههای پای خود است، و این صفحات توسط سولفیدهای آهن شامل پیریت و گریگیت (Greigite) کانیسازی شدهاند، که پیش از این هرگز در هیچ متازوئری یافت نشده بود، اما مواد تشکیلدهندهٔ آنها در مقادیر زیاد توسط این چاههای گرمابی ساطع میشوند.[۳]
روشهای ساخت صدف در میان این ارگانیسمها بسیار متفاوت است و در بیشتر موارد مکانیسمهای دقیق آن ناشناخته است.[۳]
فرگشت اسکلتها و زیستکانیسازی
| زیستکانیسازیشده | |||
| خیر | بله | ||
| اسکلت | خیر | دیکینسونیا[۱۶] | اسکلریتهای هالکیریا[۱۷] |
| بله | کیمبرلا[۱۸] | هلسیونلیدها[۱۹] | |
زیستکانیسازی به معنای تولیدِ بخشهای معدنی و کانیسازیشده توسط ارگانیسمهاست. فرضیههایی که برای توضیح فرگشت زیستکانیسازی مطرح شدهاند شامل سازگاریِ فیزیولوژیک با تغییرات شیمیاییِ اقیانوسها، دفاع در برابر شکارچیان، و فرصت برای رشد و رسیدن به اندازههای بزرگتر هستند. کارکردهای زیستکانیسازی در این ارگانیسمها متفاوت است: عملکرد برخی هنوز درک نشده است؛ برخی از آنها اجزای زره محسوب میشوند؛ و برخی دیگر نقش اسکلت را دارند. اسکلت به هر ساختار نسبتاً صُلب و سختِ یک جانور گفته میشود، صرفنظر از اینکه دارای مفصل باشد یا خیر، و اینکه آیا کانیسازی شده است یا نه. اگرچه ممکن است برخی از این سنگوارهها اسکلت نباشند، اما با توجه به اینکه صدفدار هستند، طبق تعریف همگیِ آنها کانیسازیشده محسوب میشوند. اسکلتها طیف گستردهای از مزایای ممکن را ارائه میدهند، از جمله: محافظت، پشتیبانی، اتصال به یک سطح، ایجاد یک پلتفرم یا مجموعهای از اهرمها برای عمل ماهیچهها، کشش و چسبندگی هنگام حرکت روی یک سطح، جابهجایی و کنترل غذا، فراهم کردن اتاقکهای فیلتراسیون، و ذخیرهسازی مواد ضروری.[۳]
اغلب پیشنهاد شده است که زیستکانیسازی به عنوان پاسخی به افزایش غلظت کلسیم در دریاها فرگشت یافته است، پدیدهای که در حوالی مرز ادیاکاران–کامبرین رخ داد، و اینکه سود اصلیِ زیستکانیسازی، ذخیرهٔ بیخطر کانیهایی بود که ممکن بود در روندهای داخلی ارگانیسمها اختلال ایجاد کنند. برای نمونه، میخائیل ای. فدونکین پیشنهاد داد که افزایش طول زنجیرههای غذایی ممکن است در این امر نقش داشته باشد، زیرا جانورانی که در ردههای بالاترِ زنجیره غذایی قرار دارند مقادیر بیشتری از مواد زائد و سموم را نسبت به اندازهٔ خود انباشته میکنند، و زیستکانیسازی احتمالاً راهی برای جداسازی کربناتها یا سیلیکاتهای اضافیِ مصرفشده به همراه طعمه بوده است.[۲۰] با این حال، کانیسازی زیستیِ یک اسکلت روشِ نسبتاً پُرخرجی برای دفعِ ایمنِ کانیهای اضافی است، زیرا هزینهٔ اصلیِ ساختوساز مربوط به ماتریسِ آلی، عمدتاً پروتئینها و پلیساکاریدهایی است که مواد معدنی با آنها ترکیب میشوند تا یک مادهٔ کامپوزیت را شکل دهند.[۳] ایدهٔ اینکه زیستکانیسازی پاسخی به تغییرات ترکیب شیمیایی اقیانوس بوده است نیز با این واقعیت تضعیف میشود که سنگوارههای کوچک صدفداری از جنس کلسیت، آراگونیت، کلسیم فسفات و سیلیس تقریباً بهطور همزمان در مجموعهای از محیطهای مختلف ظاهر شدند.[۱۲]
ارگانیسمها تقریباً در همان زمان برای در امان ماندن از شکار شروع به حفر بستر کردند. یرژی دزیک (Jerzy Dzik) پیشنهاد کرد که کانیسازیِ زیستیِ اسکلتها یک سازوکار دفاعی در برابر شکارچیان بوده که آغازگر یک مسابقه تسلیحاتی فرگشتی شد.[۱۲] او به عنوان مثالی دیگر از سختشدنِ سپرِ دفاعی در این دوران، به این واقعیت استناد کرد که نخستین «اسکلتهای» محافظ شامل مجموعهای از اجسام غیرآلیِ بههمچسبیده بود — به عنوان مثال، کرم اونوفیونلا (Onuphionella) از دوره کامبرین پیشین، لولهای ساخت که پوشیده از پوستههای میکا بود.[۲۱] چنین استراتژیای هم نیازمند سازگاریهای آناتومیکی بود که به ارگانیسم اجازه میداد اشیاء را جمعآوری کرده و به هم بچسباند، و هم نیازمند سیستم عصبیِ نسبتاً پیچیدهای برای هماهنگسازی این رفتار.[۱۲]
از سوی دیگر، برنارد کوهن (Bernard Cohen) استدلال کرد که اسکلتهای زیستکانیسازیشده بیشتر به دلایل «مهندسی» به وجود آمدند تا به عنوان عوامل دفاعی. استراتژیهای دفاعیِ بسیارِ دیگری نیز برای جانورانِ شکار در دسترس است؛ از جمله تحرک، حواس تیز، دفاع شیمیایی و استتار. کامپوزیتهای معدنی-آلی هم قویترند و هم برای ساخته شدن به انرژیِ کمتری نسبت به اسکلتهای تمامارگانیک (آلی) نیاز دارند، و این دو مزیت امکان رشدِ بیشتر و در برخی موارد، عضلانیتر شدن را برای جانوران فراهم آورد. در جانورانی که از یک اندازهٔ مشخص بزرگتر میشوند، عضلاتِ بزرگتر و اهرمبندیِ قدرتمندترِ آنها نیروهایی را تولید میکنند که اسکلتهای تماماً آلی به اندازهٔ کافی برای تحملِ آنها سفتوسخت نیستند. روند رشد و تکامل بازوپایان امروزی، شامل گذار از صدفهای تمامآلی به صدفهای کامپوزیتی معدنی-آلی است، که ممکن است سرنخی برای روند رشد فرگشتیِ آنها باشد. در آن صورت، فرگشت اسکلتهای خارجیِ صلبِ زیستکانیسازیشده احتمالاً آغازگرِ یک مسابقه تسلیحاتی بوده است که در آن، شکارچیان ابزارهای متهمانند یا سلاحهای شیمیاییای را توسعه دادند که قادر به نفوذ در صدفها بود، در مقابل برخی جانورانِ شکار نیز صدفهای سنگینتر و سختتری را تکامل بخشیدند و غیره.[۲۲]
فدونکین توضیح دیگری را برای ظهور زیستکانیسازی در اوایل دورهٔ کامبرین مطرح کرد: زیواگان ادیاکاران در آبهای سرد فرگشت یافته و شکوفا شدند، که این امر متابولیسم آنها را کُند کرده و انرژیِ مازادِ کافی برای زیستکانیسازی برای آنها باقی نمیگذاشت؛ اما نشانههایی از گرمایش جهانی در حوالیِ آغازِ کامبرین وجود دارد، که میتوانسته کانیسازیِ زیستی را آسانتر کند. الگوی مشابهی در جانوران دریایی امروزی نیز به چشم میخورد، زیرا اسکلتهای زیستکانیسازیشده در آبهای قطبی، نادرتر و شکنندهتر از آبهای استوایی هستند.[۲۰]
اهمیت فرگشتی
در برخی مناطق، تا ۲۰ درصد از سنگوارههای کلاودینا آثاری از سوراخشدگی نشان میدهند؛ سوراخهایی که گمان میرود توسط شکارچیان ایجاد شده باشند.[۲۳][۲۴] سنگوارهٔ صدفدارِ بسیار مشابهی با نام سینوتوبولیتس (Sinotubulites)، که اغلب در همان مکانها یافت میشود، فاقد این سوراخها بوده است. علاوه بر این، پراکندگیِ این سوراخها در کلاودینا نشاندهندهٔ یک انتخابِ مبتنی بر اندازه است – بزرگترین سوراخها در بزرگترین صدفها دیده میشوند. این شواهد از حملات انتخابیِ شکارچیان نشان میدهد که گونههای جدید ممکن است در پاسخ به شکار شدن پدید آمده باشند، موضوعی که اغلب به عنوان یک دلیل بالقوه برای تنوعبخشیِ سریع جانوران در کامبرین پیشین مطرح میشود.[۲۴]
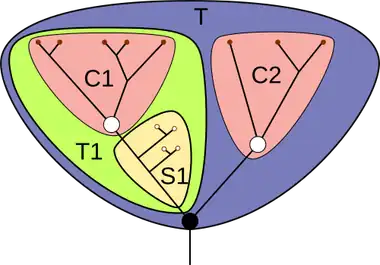
- = خطوط تبار
- = گره پایهای
- = گره تاجی
- = گروه کل
- = گروه تاجی
- = گروه ساقهای
این صدفداران کوچک سابقهٔ نسبتاً پیوستهای را در سراسر کامبرین پیشین ارائه میدهند، و از اینرو نسبت به نمونههای حفظشدگی استثنایی، بینش سودمندتری را دربارهٔ انفجار کامبرین فراهم میکنند.[۲۶] اگرچه شناسایی اکثر این سنگوارهها دشوار است، اما آنهایی که به جایگاههایی در آرایههای مدرن، یا در گروههای ساقهایِ متناظر با «خالهها» یا «پسرعموهای» فرگشتی خود اختصاص یافتهاند، دانشمندان را قادر میسازند تا با تکیه بر شواهدِ صدفهای کوچک، الگو و سرعت فرگشت جانوران را ارزیابی کنند. چنین ارزیابیای نشان میدهد که نخستین صدفدارانِ کوچک، پایهایترین گونهها هستند. با گذشت زمان، میتوان آنها را در گروه ساقهایِ کلادهای کوچکتر و کوچکتر جای داد. به عبارت دیگر، نخستین صدفداران کوچک (متعلق به ادیاکاران) را میتوان بهطور آزمایشی موجوداتی دولایهای (دیپلوبلاست) در نظر گرفت؛ یعنی ساختهشده از دو لایهٔ بافتیِ اصلی. صدفدارانِ بعدی به طرز متقاعدکنندهتری سهلایهای (تریپلوبلاستیک) هستند، همانطور که تمام جانورانِ «عالیتر» چنیناند. متعاقباً، هلسیونلیدها نخستین سنگوارههای صدفداری هستند که میتوانند در گروه ساقهایِ یک شاخه (نرمتنان) جای گیرند. با بررسیِ سنگوارههای کوچکِ صدفدارِ متأخرتر، استدلالها برای جایگیری در گروههای ساقهای قویتر میشود، و در عصر آتدابانین (Atdabanian)، برخی از این سنگوارهها را میتوان به گروه تاجی از یک شاخهٔ مدرن، یعنی خارپوستان نسبت داد.[۲۶] این موضوع این تصور را ایجاد میکند که نخستین جانورانِ مرتبط با این سنگوارهها، که متعلق به ادیاکارانِ پسین بودند، اعضای پایهایِ کلادهای بعدی بودهاند؛ و شاخههای جانوری متعاقباً به شکلی «سریع، اما با این حال قابل تفکیک و منظم» ظاهر شدهاند، نه به صورتِ «یک آشفتگی و درهمریختگی ناگهانی»،[۲۶]: 163 و در نتیجه این شواهد سرعتِ حقیقیِ انفجار کامبرین را آشکار میسازد.[۲۶]
انواع سنگوارههای کوچک صدفدار
فرمهای ادیاکاران
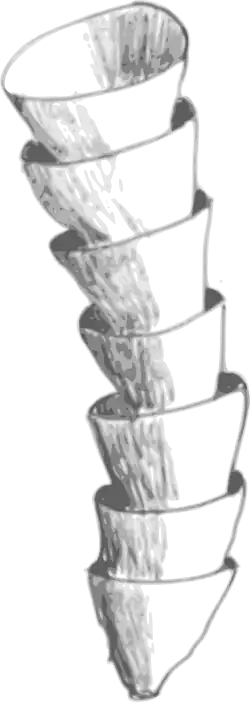
مجموعههای معدودِ به دست آمده از دورهٔ ادیاکاران دامنهٔ محدودی از اشکال را در بر میگیرند.[۳] لولههای کاملاً یا نسبتاً کانیسازیشده بسیار رایجاند و مجموعهای کاملاً درهمآمیخته را شکل میدهند: ساختار و ترکیبِ دیوارههای آنها بسیار متفاوت است؛ نمونهها به عنوان اعضای طیف گستردهای از کلادها طبقهبندی شدهاند، از جمله روزنداران، کنیداریانها، کرمهای حلقوی از نوع پرتاران و پوگونوفر (Pogonophoran)، کرمهای بادامزمینی و غیره.[۳] «لولهٔ» کلاودینا، که طولی بین ۸ تا ۱۵۰ میلیمتر داشت، شامل مخروطهای تودرتویی بود که توسط کلسیم کربنات کانیسازی شده بودند، اما فواصل بین مخروطها به صورت غیرمعدنی باقی مانده بود.[۲۷][۲۸] سینوتوبولیتس (Sinotubulites) لولههای نازک و بلندی میساخت که انعطافپذیرتر بودند اما احتمالاً خطوط و برآمدگیهای کانیسازیشده داشتند.[۲۹]
ناماپویکیا (Namapoikia) احتمالاً یک اسفنج یا ارگانیسمی مرجانمانند بود، و ساختارها و سکونتگاههایی به وسعت تا ۱ متر از جنس کلسیم کربنات میساخت.[۳۰]
سوزنهها (اسپیکولها) خارها یا ترکیبی ستارهمانند از خارهایی از جنس سیلیس هستند که تصور میشود بقایای اسفنجها باشند.[۳][۳۱][۳۲]
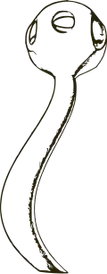
ناماکالاتوس (Namacalathus)، که ممکن است متعلق به گروه کنیداریانها بوده و ارتباط نزدیکی با عروسهای دریایی و مرجانها داشته باشد، سکونتگاههایی جاممانند با ساقهای به طول تا ۳۰ میلیمتر میساخت. این نوع شکل به عنوان یک «تستِ (پوستهٔ) ساقهدار» (Stalked test) شناخته میشود، چرا که واژهٔ «تست» در زیستشناسی به معنای یک صدف یا پوستهٔ تقریباً کروی است.[۳۳]
فرمهای کامبرین
در یافتههای متعلق به کامبرین پیشین، لولهها و سوزنهها فراوانتر و متنوعتر میشوند و انواع جدیدی از سنگوارههای کوچک صدفدار پدیدار میگردند. بسیاری از آنها به گروههای شناختهشدهای همچون نرمتنان، هالکیرییدهای لیسهمانند، بازوپایان، خارپوستان، و ارگانیسمهای شبیه به کرمهای مخملی که احتمالاً به اجداد بندپایان نزدیک بودند، نسبت داده شدهاند.[۳] انبوهی از سنگوارههای لولهایِ مبهم، مانند آناباریتیدها (Anabaritids)، هیولیتلوس (Hyolithellus) یا تورللا (Torellella)، مشخصهٔ مجموعههای اسکلتیِ سنگوارههای کوچک صدفدار در نخستین مراحل دورهٔ کامبرین هستند.
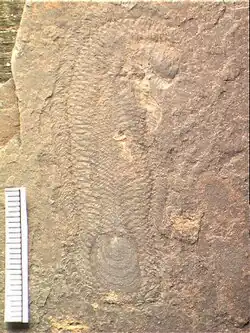
بیشترِ سنگوارههای کوچک صدفدار کامبرین از اسکلریتها (Sclerites) تشکیل شدهاند؛ قطعاتی که روزگاری زره خارجی جانوران اولیه را تشکیل میدادند، نظیر هالکیریا (Halkieria) یا «کرمهای فلسدار».[۳۴][۳۵] مجموعههای نسبتاً کامل و مونتاژشده از این قطعات که کمیاب هستند، «اسکلریتوم» (Scleritome) نامیده میشوند. در بسیاری از موارد، شکل بدن جانورانی که این اسکلریتها را ایجاد کردهاند و نحوهٔ توزیع این قطعات بر روی بدنشان ناشناخته است.[۳] این پوشش زرهی عموماً پس از مرگِ جانور از هم پاشیده میشد و قطعات آن پراکنده و گاهی فسیل میشدند. بازسازی این عناصر معمولاً به پیدا شدنِ یک فسیل کاملاً مفصلبندیشده و دستنخورده در یک سایتِ حفظشدگی استثنایی بستگی دارد.[۲۶] چنین اکتشافاتی به نوبهٔ خود دیرینهشناسان را قادر میسازند تا از سایر قطعاتِ مشابه، مانند آنهایی که با نام مایخانلا (Maikhanella) برچسبگذاری شدهاند، رمزگشایی کنند.[۳۶]
بسیاری از اسکلریتها از نوعی هستند که «سلواسکلریت» (Coelosclerite) نامیده میشود؛ این نوع دارای یک صدف کانیسازیشده در اطرافِ فضایی است که در اصل با بافت آلی پُر شده بود، و هیچ نشانهای از رشد برافزایشی (Accretionary growth) در آنها دیده نمیشود. مشخص نیست که آیا سلواسکلریتها در گروههای مختلف جانوری به شکلِ فرگشتِ مستقل به وجود آمدهاند یا اینکه از یک نیای مشترک به ارث رسیدهاند.[۳] هالکیرییدها سلواسکلریتهایی به شکل فلس یا خار تولید میکردند، و نمونههای کامل نشان میدهند که این جانوران لیسهشکل بوده و علاوه بر اسکلریتها، دارای صفحات صدفیِ کلاهمانندی در هر دو انتهای بدن خود بودهاند.[۳][۳۴] شانسلورییدها (Chancelloriids) سلواسکلریتهای مرکبِ ستارهایشکل تولید میکردند. شناخته شده است که آنها جانورانی شبیه به کاکتوس بودهاند و از نظر ساختار داخلی همانند اسفنجها توصیف شدهاند،[۳] هرچند ممکن است ارتباط نزدیکتری با هالکیرییدها داشته باشند.[۳۷]

برخی اسکلریتها به جای کلسیم کربنات با کلسیم فسفات کانیسازی شدهاند.[۳] توموتییدها (Tommotiids) طیف گستردهای از اشکال اسکلریت و ساختارهای داخلی را دارا هستند و ممکن است در واقع نشاندهندهٔ مجموعهای چندتباری از تبارها باشند؛ به عبارت دیگر، آنها احتمالاً اسکلریتومهای فسفاتی را بهطور مستقل تکامل دادهاند نه اینکه آن را از یک نیای مشترک به ارث برده باشند. از سوی دیگر، آنها ممکن است ارتباط نزدیکی با اجداد بازوپایان امروزی داشته باشند؛ جانورانی که در نگاه اول شبیه به نرمتنان دوکفهای به نظر میرسند، اما بازوپایان روی ساقههای گوشتی میایستند و آناتومی داخلیِ متفاوتی دارند.[۳۸][۳۹] برخی اسکلریتها و قطعات کوچکِ «آوارمانند» به عنوان بقایای خارپوستان در نظر گرفته میشوند.[۴۰] سایر اسکلریتهای فسفاتی شامل اشیاء دندانمانند، قلابشکل و صفحهمانند میشوند که بیشترشان منشأ ناشناختهای دارند. با این حال، میدانیم که برخی از آنها، از جمله میکرودیکتیون، توسط لوبوپودها (Lobopods) تولید شدهاند؛ جانورانی که شبیه به کرمهای پادار بودند و گمان میرود نزدیک به اجداد بندپایان باشند.[۳]
صدفهای تککفهای (Univalved) و دوکفهای نسبتاً رایج هستند. تصور میشود که برخی از پوستههای کلاهشکل تنها اسکلریتِ پوشانندهٔ جانوران سازندهشان بودهاند،[۲۶] در حالی که میدانیم برخی دیگر قطعاتی از یک سیستم زرهی پیچیدهتر، مانند آنچه در هالکیریا دیده میشود، بودهاند.[۳۴] گمان میرود هلسیونلیدها نرمتنان اولیهای با صدفهای تاحدودی حلزونمانند بودهاند. برخی از آنها دارای «لولههای تخلیهٔ» افقی در لبههای مقعرِ صدف خود هستند، و دربارهٔ اینکه آیا این لولهها به سمت جلو بودهاند یا به سمت عقب، بحث وجود دارد.[۱۹][۴۱] هیولیتها صدفهای مخروطی کوچکی بر جای گذاشتند.[۴۰] این جانوران ممکن است از نرمتنان یا کرمهای بادامزمینیِ کرممانند بوده باشند. سایر صدفهای تککفهایِ متعلق به نرمتنان در کانادا یافت شدهاند.[۴۰] برخی صدفهای دوکفهای در حالی یافت شدهاند که هر دو قسمت آنها هنوز به هم متصل بودهاند، و شامل بازوپایان و نرمتنان دوکفهای میشوند.[۴۰] سنگوارههایی نیز یافت شدهاند که شبیه به سرپوشها («دریچهها» یی) هستند که حلزونها برای بستن دهانهٔ زرهِ خود استفاده میکنند؛ این فسیلها به هیولیتها نسبت داده شدهاند، یعنی جانوران کوچکی که صدفهای مخروطی داشتند و احتمالاً نرمتن یا مانند کرمهای بادامزمینی بودهاند.[۴۰]
بندپایان کوچکی با صدفهای دوکفهایمانند در بسترهای کامبرین پیشین در چین کشف شدهاند،[۴۲] و سایر فسیلها (مانند Mongolitubulus henrikseni) خارهایی را نشان میدهند که از کاسهپشتهای بندپایان دوکفهای جدا شدهاند.[۴۳]
فرمهای پس از کامبرین
سنگوارههای کوچک صدفدارِ پس از دورهٔ کامبرین شروع به دربرگرفتنِ گروههای مدرنتر و قابلتشخیصتری میکنند. تا اواسط دوره اردویسین، اکثریت این سنگوارهها صرفاً نشاندهندهٔ لاروِ نرمتنان، و اکثراً شکمپایان هستند.[۴۴]
پانویس
- ↑ Geyer, Gerd; Landing, Ed (2016). "The Precambrian–Phanerozoic and Ediacaran–Cambrian boundaries: A historical approach to a dilemma". Geological Society, London, Special Publications. 448 (1): 311–349. Bibcode:2017GSLSP.448..311G. doi:10.1144/SP448.10. S2CID 133538050.
- ↑ Matthews, S. C. & Missarzhevsky, V. V. (1975). "Small Shelly Fossils of Late Precambrian and Early Cambrian Age: a Review of Recent Work". Journal of the Geological Society. 131 (3): 289–304. Bibcode:1975JGSoc.131..289M. doi:10.1144/gsjgs.131.3.0289. S2CID 140660306. Retrieved 2008-07-18.
- 1 2 3 4 5 6 7 8 9 10 11 12 13 14 15 16 17 18 19 20 21 22 Bengtson، Stefan (۲۰۰۴). «Early skeletal fossils» (PDF). Paleontological Society Papers. ۱۰: ۶۷–۷۸.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - 1 2 Dzik، J. (۱۹۹۴). «Evolution of "small shelly fossils" assemblages of the early Paleozoic» (PDF). Acta Palaeontologica Polonica. ۳۹ (۳): ۲۴۷–۳۱۳.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Steiner, M.; Li, G.; Qian, Y.; Zhu, M.; Erdtmann, B-D. (October 2007). "Neoproterozoic to Early Cambrian small shelly fossil assemblages and a revised biostratigraphic correlation of the Yangtze Platform (China)". Palaeogeography, Palaeoclimatology, Palaeoecology. 254 (1–2): 67–99. Bibcode:2007PPP...254...67S. doi:10.1016/j.palaeo.2007.03.046.
- ↑ Cloud, P.E. (1948). "Some problems and patterns of evolution exemplified by fossil invertebrates". Evolution. 2 (4): 322–350. doi:10.2307/2405523. JSTOR 2405523. PMID 18122310. and Cloud, P. E. (1968). "Pre-metazoan evolution and the origins of the Metazoa.". In Drake, E. T. (ed.). Evolution and Environment. New Haven, Conn.: Yale University Press. pp. 1–72.
- ↑ Eldredge, N. & Gould, S. J. "Punctuated equilibria: An alternative to phyletic gradualism.". In Schopf, T. J. M. (ed.). Models in Paleobiology. San Francisco, CA.: Freeman, Cooper & Co. pp. 82–115.
- ↑ Durham, J. W. (1971). "The fossil record and the origin of the Deuterostomata". Proceedings of the North American Paleontological Convention, Part H: 1104–1132. and Glaessner, M.F. (1972). "Precambrian palaeozoology". In Jones, J. B.; McGowran, B. (eds.). Stratigraphic Problems of the Later Precambrian and Early Cambrian. Vol. 1. University of Adelaide. pp. 43–52.
- ↑ Skovsted, C.B. (April 2006). "Small shelly fossils from the basal Emigrant Formation (Cambrian, uppermost Dyeran Stage) of Split Mountain, Nevada". Canadian Journal of Earth Sciences. 43 (4): 487–496. Bibcode:2006CaJES..43..487S. doi:10.1139/E05-119.
- ↑ e.g. Porter, S.M. (May 2004). "Halkieriids in Middle Cambrian Phosphatic Limestones from Australia". Journal of Paleontology. 78 (3): 574–590. Bibcode:2004JPal...78..574P. CiteSeerX 10.1.1.573.6134. doi:10.1666/0022-3360(2004)078<0574:HIMCPL>2.0.CO;2. S2CID 131557288.
- 1 2 Maloof, A. C.; Porter, S. M.; Moore, J. L.; Dudas, F. O.; Bowring, S. A.; Higgins, J. A.; Fike, D. A.; Eddy, M. P. (2010). "The earliest Cambrian record of animals and ocean geochemical change". Geological Society of America Bulletin. 122 (11–12): 1731–1774. Bibcode:2010GSAB..122.1731M. doi:10.1130/B30346.1.
- 1 2 3 4 5 Dzik، J. (۲۰۰۷). «The Verdun Syndrome: simultaneous origin of protective armour and infaunal shelters at the Precambrian–Cambrian transition» (PDF). The Rise and Fall of the Ediacaran Biota. Geological Society. صص. ۴۰۵–۴۱۴. doi:10.1144/SP286.30. شابک ۹۷۸-۱-۸۶۲۳۹-۲۳۳-۵. دریافتشده در ۲۰۰۸-۰۸-۰۱.
{{cite book}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Porter، S.M. (۲۰۰۴). «Closing the Phosphatization Window: Testing for the Influence of Taphonomic Megabias on the Pattern of Early Cambrian Metazoan Evolution». PALAIOS. ۱۹ (۲): ۱۷۸–۱۸۳. doi:10.1669/0883-1351(2004)019<0178:CTPWTF>2.0.CO;2.
{{cite journal}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - ↑ Porter, S.M. (May 2004). "Halkieriids in Middle Cambrian Phosphatic Limestones from Australia". Journal of Paleontology. 78 (3): 574–590. Bibcode:2004JPal...78..574P. CiteSeerX 10.1.1.573.6134. doi:10.1666/0022-3360(2004)078<0574:HIMCPL>2.0.CO;2. ISSN 0022-3360. S2CID 131557288.
- ↑ Porter, S. (2007). "Seawater Chemistry and Early Carbonate Biomineralization". Science. 316 (5829): 1302. Bibcode:2007Sci...316.1302P. doi:10.1126/science.1137284. PMID 17540895. S2CID 27418253.
- ↑ Retallack, G.J. (2007). "Growth, decay and burial compaction of Dickinsonia, an iconic Ediacaran fossil" (PDF). Alcheringa: An Australasian Journal of Palaeontology. 31 (3): 215–240. Bibcode:2007Alch...31..215R. doi:10.1080/03115510701484705. S2CID 17181699. Retrieved 2007-11-24.
- ↑ Conway Morris, S. & Peel, J.S. (June 1990). "Articulated halkieriids from the Lower Cambrian of north Greenland". Nature. 345 (6278): 802–805. Bibcode:1990Natur.345..802M. doi:10.1038/345802a0. S2CID 4324153.
- ↑ Fedonkin، M.A.؛ Simonetta، A.؛ Ivantsov، A.Y. (۲۰۰۷). «New data on Kimberella, the Vendian mollusc-like organism (White sea region, Russia): palaeoecological and evolutionary implications». The Rise and Fall of the Ediacaran Biota. Geological Society. صص. ۱۵۷–۱۷۹. doi:10.1144/SP286.12. شابک ۹۷۸-۱-۸۶۲۳۹-۲۳۳-۵.
{{cite book}}: نگهداری یادکرد:تاریخ بهطور خودکار ترجمهشده (رده) - 1 2 Runnegar, B. & Pojeta, J. (1974). "Molluscan phylogeny: the paleontological viewpoint". Science. 186 (4161): 311–7. Bibcode:1974Sci...186..311R. doi:10.1126/science.186.4161.311. PMID 17839855. S2CID 46429653.
- 1 2 Fedonkin, M. A. (2003). "The origin of the Metazoa in the light of the Proterozoic fossil record" (PDF). Paleontological Research. 7 (1): 9–41. Bibcode:2003PalRe...7....9F. doi:10.2517/prpsj.7.9. S2CID 55178329. Archived from the original (PDF) on 2009-02-26. Retrieved 2008-08-24.
- ↑ Signor, P.W. & McMenamin, M.A.S. (1988). "The Early Cambrian worm tube Onuphionella from California and Nevada". Journal of Paleontology. 62 (2): 233–240. Bibcode:1988JPal...62..233S. doi:10.1017/S0022336000029863. JSTOR 1305228. S2CID 133260258.
- ↑ Cohen, B.L. (2005). "Not armour, but biomechanics, ecological opportunity and increased fecundity as keys to the origin and expansion of the mineralized benthic metazoan fauna" (PDF). Biological Journal of the Linnean Society. 85 (4): 483–490. doi:10.1111/j.1095-8312.2005.00507.x. Retrieved 2008-08-01.
- ↑ Hua, H.; Pratt, B.R.; Zhang, L.U.Y.I. (2003). "Borings in Cloudina Shells: Complex Predator-Prey Dynamics in the Terminal Neoproterozoic". PALAIOS. 18 (4–5): 454. Bibcode:2003Palai..18..454H. doi:10.1669/0883-1351(2003)018<0454:BICSCP>2.0.CO;2. ISSN 0883-1351. S2CID 131590949.
- 1 2 Bengtson, S.; Zhao, Y. (1992-07-17). "Predatorial Borings in Late Precambrian Mineralized Exoskeletons". Science. 257 (5068): 367–9. Bibcode:1992Sci...257..367B. doi:10.1126/science.257.5068.367. PMID 17832833. S2CID 6710335.
- ↑ Craske, A.J. & Jefferies, R.P.S. (1989). "A new mitrate from the Upper Ordovician of Norway, and a new approach to subdividing a plesion". Palaeontology. 32: 69–99.
- 1 2 3 4 5 6 Budd, Graham E. (2003). "The Cambrian Fossil Record and the Origin of the Phyla". Integrative and Comparative Biology. 43 (1): 157–165. doi:10.1093/icb/43.1.157. PMID 21680420.
- ↑ Grant, S.W. (1990). "Shell structure and distribution of Cloudina, a potential index fossil for the terminal Proterozoic". American Journal of Science. 290-A (290–A): 261–294. PMID 11538690. Archived from the original on 22 مه 2011. Retrieved 2008-07-19.
- ↑ Germs, G. J. (October 1972). "New shelly fossils from Nama Group, South West Africa". American Journal of Science. 272 (8): 752–761. Bibcode:1972AmJS..272..752G. doi:10.2475/ajs.272.8.752.
- ↑ Chen, Z.; Bengtson, S.; Zhou, C. -M.; Hua, H.; Yue, Z. (2007). "Tube structure and original composition of Sinotubulites: shelly fossils from the late Neoproterozoic in southern Shaanxi, China". Lethaia. 41: 37. doi:10.1111/j.1502-3931.2007.00040.x.
- ↑ Wood, R.A.; Grotzinger, J.P.; Dickson, J.A.D. (28 June 2002). "Proterozoic Modular Biomineralized Metazoan from the Nama Group, Namibia". Science. 296 (5577): 2383–6. Bibcode:2002Sci...296.2383W. doi:10.1126/science.1071599. PMID 12089440. S2CID 9515357.
- ↑ Brasier, M.D.; Green, O.; Shields, G. (April 1997). "Ediacarian sponge spicule clusters from southwestern Mongolia and the origins of the Cambrian fauna". Geology. 25 (4): 303–306. Bibcode:1997Geo....25..303B. doi:10.1130/0091-7613(1997)025<0303:ESSCFS>2.3.CO;2. Retrieved 2008-07-19.
- ↑ Gehling, J.G. & Rigby, J.K. (March 1996). "Long-Expected Sponges from the Neoproterozoic Ediacara Fauna of South Australia". Journal of Paleontology. 70 (2): 185–195. Bibcode:1996JPal...70..185G. doi:10.1017/S0022336000023283. JSTOR 1306383. S2CID 130802211.
- ↑ Grotzinger, J.P.; Watters, W.A.; Knoll, A.H. (2000). "Calcified metazoans in thrombolite-stromatolite reefs of the terminal Proterozoic Nama Group, Namibia". Paleobiology. 26 (3): 334–359. Bibcode:2000Pbio...26..334G. doi:10.1666/0094-8373(2000)026<0334:CMITSR>2.0.CO;2. ISSN 0094-8373. S2CID 52231115. Retrieved 2008-07-19.
- 1 2 3 Conway Morris, S.; Peel, J. S (1995). "Articulated Halkieriids from the Lower Cambrian of North Greenland and Their Role in Early Protostome Evolution". Philosophical Transactions of the Royal Society B. 347 (1321): 305–358. Bibcode:1995RSPTB.347..305C. doi:10.1098/rstb.1995.0029.
- ↑ Conway Morris, S. (1997). "The Cuticular Structure of the 495-Myr-Old Type Species of the Fossil Worm Palaeoscolex, P. Piscatorum (?Priapulida)". Zoological Journal of the Linnean Society. 495 (119): 69–82. doi:10.1006/zjls.1996.0065.
- ↑ Bengtson, S. (1992). "The Cap-Shaped Cambrian Fossil Maikhanella and the Relationship Between Coeloscleritophorans and Molluscs". Lethaia. 25 (4): 401–420. Bibcode:1992Letha..25..401B. doi:10.1111/j.1502-3931.1992.tb01644.x.
- ↑ Porter, S.M (2008). "Skeletal microstructure indicates Chancelloriids and Halkieriids are closely related" (PDF). Palaeontology. 51 (4): 865–879. Bibcode:2008Palgy..51..865P. doi:10.1111/j.1475-4983.2008.00792.x. Retrieved 2008-08-07.
- ↑ Holmer, L.E.; Skovsted, C.B; Brock, G.A.; Valentine, J.L.; Paterson, J. R. (June 2008). "The Early Cambrian tommotiid Micrina, a sessile bivalved stem group brachiopod". Biology Letters. 4 (6): 724–8. doi:10.1098/rsbl.2008.0277. PMC 2614141. PMID 18577500.
- ↑ Skovsted, C. B; Brock, G. A.; Paterson, J. R.; Holmer, L. E.; Budd, G. E. (February 2008). "The scleritome of Eccentrotheca from the Lower Cambrian of South Australia: Lophophorate affinities and implications for tommotiid phylogeny". Geology. 36 (2): 171–174. Bibcode:2008Geo....36..171S. doi:10.1130/G24385A.1. Retrieved 2008-07-23.
- 1 2 3 4 5 Landing, E.; Geyer, G.; Bartowski, K.E. (March 2002). "Latest Early Cambrian Small Shelly Fossils, Trilobites, and Hatch Hill Dysaerobic Interval on the Québec Continental Slope". Journal of Paleontology. 76 (2): 287–305. Bibcode:2002JPal...76..287L. doi:10.1666/0022-3360(2002)076<0287:LECSSF>2.0.CO;2. ISSN 0022-3360. Retrieved 2008-07-30.
- ↑ Peel, J.S. (1991). "Functional morphology of the Class Helcionelloida nov. , and the early evolution of the Mollusca". In Simonetta, A.M.; Conway Morris, S (eds.). The Early Evolution of Metazoa and the Significance of Problematic Taxa. Cambridge University Press. pp. 157–177. ISBN 978-0-521-40242-2.
- ↑ Yuan, X.; Xiao, S.; Parsley, R. L.; Zhou, C.; Chen, Z.; Hu, J. (April 2002). "Towering sponges in an Early Cambrian Lagerstätte: Disparity between nonbilaterian and bilaterian epifaunal tierers at the Neoproterozoic-Cambrian transition". Geology. 30 (4): 363–366. Bibcode:2002Geo....30..363Y. doi:10.1130/0091-7613(2002)030<0363:TSIAEC>2.0.CO;2. ISSN 0091-7613.
- ↑ Skovsted, C. (2005). "A carapace of the bradoriid arthropod Mongolitubulus from the Early Cambrian of Greenland". GFF. 127 (3): 217. Bibcode:2005GFF...127..217S. doi:10.1080/11035890501273217. S2CID 129309039.
- ↑ Dzik, J. 1994. Evolution of "small shelly fossils" assemblages of the early Paleozoic. Acta Palaeontologica Polonica, 39, 247–313.
پیوندهای به بیرون
- انقراضهای کامبرین
- بیمهرگان کامبرین