رویداد اکسیژنی پیشینزیستی نو
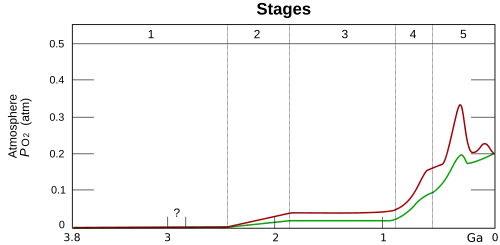
- مرحلهٔ ۱ (۳٫۸۵–۲٫۴۵ میلیارد سال پیش): عملاً هیچ O2ای در جو وجود نداشت. اقیانوسها نیز عمدتاً بدون اکسیژن (آنُکسیک) بودند؛ هرچند ممکن است در اقیانوسهای کمعمق مقداری O2 وجود داشته باشد.
- مرحلهٔ ۲ (۲٫۴۵–۱٫۸۵ میلیارد سال پیش): O2 تولید شد و میزان آن به ۰٫۰۲ تا ۰٫۰۴ اتمسفر رسید، اما این اکسیژن در اقیانوسها و سنگهای بستر دریا جذب شد. (رویداد بزرگ اکسیژنی)
- مرحلهٔ ۳ (۱٫۸۵–۰٫۸۵ میلیارد سال پیش): O2 شروع به خارج شدن به صورت گاز از اقیانوسها کرد، اما توسط سطح خشکیها جذب شد. تغییر چشمگیری در سطح اکسیژن رخ نداد.
- مراحل ۴ و ۵ (۰٫۸۵ میلیارد سال پیش تا امروز): سایر مخازن O2 پر شدند و گاز در جو انباشته شد.[۱] مرحلهٔ ۴ با نام «رویداد اکسیژنیشدن نئوپروتروزوییک» شناخته میشود.
رویداد اکسیژنی پیشینزیستی نو (NOE)(به انگلیسی: Neoproterozoic oxygenation event) که با عنوان دومین رویداد بزرگ اکسیژنی نیز شناخته میشود، یک بازهٔ زمانی زمینشناختی در حدود ۸۵۰ تا ۵۴۰ میلیون سال پیش در دوران نئوپروتروزوییک بود که طی آن غلظت اکسیژن در جو زمین و اقیانوسها بهطور چشمگیری افزایش یافت.[۲] این رویداد پس از پایان میلیارد سال خستهکننده، دورهای از وضعیت یوکسینیک با اکسیژن جوی بسیار اندک که از دورهٔ سیدرین در دوران پیشینزیستی دیرینه تا دورهٔ تونین در نئوپروتروزوییک امتداد داشت، رخ داد. غلظت اکسیژن جو از کمتر از ۰٫۱٪ اتمسفر در بیشتر بخشهای پروتروزوییک آغازین و میانی، به بیش از ۱۳٪ اتمسفر در نئوپروتروزوییک آغازین، طی بازهٔ ۹۰۰ تا ۸۱۵ میلیون سال پیش، افزایش یافت و احتمالاً در طول یخبندان استورتین–یخبندان مارینو در کریوژنین حتی به حدود ۵۰٪ اتمسفر نیز رسید.[۳][۴]
رویداد بزرگ اکسیژنی پیشینزیستی نو پس از رویداد بزرگ اکسیژنی (GOE) در مرز نخستزیستی نو–پیشینزیستی دیرینه، دومین افزایش عمده غلظت اکسیژن جوی و اقیانوسی در تاریخ زمینشناسی اکسیژن زمین بود. برخلاف رویداد بزرگ اکسیژنی، مشخص نیست که رویداد بزرگ اکسیژنی پیشینزیستی نو یک رویداد همزمان و جهانی بوده یا مجموعهای از دورههای اکسیژنیشدن منطقهای و ناهمدوره که چراییهای مستقلی داشتهاند.[۵]
شواهد اکسیژنیشدن
ایزوتوپهای کربن
از حدود ۸۵۰ تا ۷۲۰ میلیون سال پیش، در بازهای که تقریباً با تونین پسین، یعنی فاصلهٔ زمانی میان پایان میلیارد سال خستهکننده و آغاز «زمین گوی برفی» در کریوژنین، مطابقت دارد، رسوبات دریایی یک ناهنجاری مثبت بسیار چشمگیر در ایزوتوپهای کربن ثبت کردهاند. تصور میشود این مقادیر بالای δ13C با تابش تکاملی پلانکتونهای یوکاریوتی و افزایش دفن مواد آلی مرتبط باشد؛ عواملی که به نوبهٔ خود نشاندهندهٔ جهشی در تولید اکسیژن طی این بازه هستند.[۶] در طول کریوژنین نیز ناهنجاریهای مثبت دیگری در ایزوتوپهای کربن رخ داد.[۷] اگرچه چندین ناهنجاری منفی در ایزوتوپهای کربن، مرتبط با دورههای گرمشدن، از تونین پسین تا مرز پروتروزوییک–فانروزوییک شناخته شده است، سوابق ایزوتوپی کربن در مجموع در سراسر نئوپروتروزوییک روند مثبت قابلتوجهی را حفظ میکنند.[۲]
ایزوتوپهای نیتروژن
دادههای δ15N مربوط به رسوبات دریایی ۷۵۰ تا ۵۸۰ میلیون ساله از چهار حوضهٔ مختلف نئوپروتروزوییک، نسبتهای ایزوتوپی نیتروژنی مشابهی با اقیانوسهای امروزی نشان میدهند؛ بهطوری که مد آن +۴٪ و دامنهٔ آن از ۴−٪ تا ۱۱+٪ است. در مرز کریوژنین–ادیاکاران تغییر چشمگیری مشاهده نمیشود؛ موضوعی که نشان میدهد اکسیژن احتمالاً از همان ۷۵۰ میلیون سال پیش، در دورهٔ تونین، در سراسر اقیانوس جهانی وجود داشته است.[۸]
ایزوتوپهای گوگرد
مقادیر δ34S سولفات آب دریا که در بیشتر نئوپروتروزوییک بهتدریج افزایش یافتند و در دورههای یخچالی با افتهای عمده همراه بودند،[۹] در ایدیاکارن یک افزایش مثبت چشمگیر را نشان میدهند که با کاهش δ34S پیریتی همراه بوده است. نرخ بالای تفکیک ایزوتوپی میان سولفات و سولفید نشاندهندهٔ افزایش دسترسی به سولفات در ستون آب است که خود بیانگر افزایش واکنش پیریت با اکسیژن است.[۱۰] افزون بر این، شواهد ژنتیکی از وقوع یک تابش تکاملی در باکتریهای غیرفتوسنتزیِ کاهندهٔ سولفید در نئوپروتروزوییک حکایت دارد. چنین باکتریهایی از طریق نامتناسبسازی باکتریایی گوگرد، سولفید دریایی را بیشازپیش از ایزوتوپهای سنگین گوگرد تهی میکنند.[۱۱] از آنجا که این باکتریها برای بقا به مقادیر قابلتوجهی اکسیژن نیاز دارند، تصور میشود که یک رویداد اکسیژنیشدن در نئوپروتروزوییک که غلظت اکسیژن را به بیش از ۵ تا ۱۸ درصد سطح امروزی رسانده باشد، پیششرطی ضروری برای گوناگونی این ریزسازوارهها بوده است.[۱۲]
ایزوتوپهای استرانسیم
اگر نرخ هوازدگی به درون اقیانوسها و گاززدایی دیاکسید کربن ثابت بماند یا افزایش یابد، δ13C میتواند تغییرات در بهرهوری خالص اولیه و اکسیژنیشدن را بهطور قابلاعتمادی نشان دهد؛ زیرا کاهش هر یک از این دو نرخ میتواند از طریق مصرف ترجیحی مداوم کربن-۱۲ توسط جوامع موجود، همزمان با کاهش ذخیرهٔ کربن در دسترس، باعث یک ناهنجاری مثبت δ13C شود، بیآنکه افزایش بهرهوری اولیه و تولید اکسیژن را نشان دهد.[۶] نسبت استرانسیم-۸۷ به استرانسیم-۸۶ بهعنوان شاخصی برای تعیین سهم نسبی هوازدگی قارهای در تأمین مواد مغذی اقیانوس به کار میرود؛[۲] افزایش این نسبت، که در سراسر نئوپروتروزوییک و تا کامبرین مشاهده میشود و در پایان کامبرین به اوج میرسد، نشاندهندهٔ افزایش هوازدگی قارهای است و شواهد حاصل از نسبتهای ایزوتوپی کربن دربارهٔ اکسیژنیشدن شدید در این بازهٔ زمانی را تقویت میکند.[۱۳]
ایزوتوپهای کروم
اکسایش سطحی Cr(III) به Cr(VI) موجب تفکیک ایزوتوپی کروم میشود. Cr(VI) که معمولاً در محیط به صورت کرومات یا دیکرومات وجود دارد، مقادیر بالاتری از δ53Cr، یعنی نسبت کروم-۵۳ به کروم-۵۲، دارد؛ در حالی که کاهش باکتریایی Cr(VI) به Cr(III) با ناهنجاریهای منفی ایزوتوپ کروم همراه است. پس از انتقال کروم اکسیدشده به اقیانوس از طریق رودخانهها، واکنشی که Cr(VI) را دوباره به Cr(III) کاهش میدهد و سپس آهن فرو را به آهن فریک اکسید میکند، در بهداماندازی Cr(VI) بسیار کارآمد است. رسوب Cr(III) همراه با اکسیهیدروکسید آهن فریک نیز چنین نقشی دارد؛ بنابراین نسبتهای ایزوتوپی کروم در رسوباتی که سرشار از آهن فریک هستند، بهطور دقیق نسبت ایزوتوپی کروم آب دریا را در زمان رسوبگذاری بازتاب میدهند. از آنجا که اکسایش کارآمد Cr(III) به Cr(VI) تنها در حضور کاتالیزور دیاکسید منگنز امکانپذیر است و این ماده فقط در شرایط فوگاسیتهٔ بالای اکسیژن پایدار و فراوان است، یک ناهنجاری مثبت δ53Cr نشاندهندهٔ افزایش غلظت اکسیژن جو است. سازند آهن نواری (BIF) که در نئوپروتروزوییک نهشته شدهاند، بهطور پیوسته مقادیر بسیار مثبت δ53Cr، از ۰٫۹٪ تا ۴٫۹٪، نشان میدهند که بیانگر اکسیژنیشدن جو در این دوران است.[۱۴][۶] چرخهٔ اکسایشی کروم تقریباً از ۰٫۸ میلیارد سال پیش آغاز شد که نشان میدهد افزایش سطح اکسیژن بسیار پیش از یخچالزاییهای کریوژنین آغاز شده بود.[۱۵] ایزوتوپهای کروم همچنین نشان میدهند که طی فاصلهٔ بینیخچالی کریوژنین، میان یخچالزاییهای استورتی و مارینویی، اکسیژنیشدن اقیانوس و جو آهسته و محدود بود؛ این بازه دورهای آرام در رویداد اکسیژنی پیشینزیستی نو محسوب میشود.[۱۶]
ایزوتوپهای مولیبدن
مقادیر δ98Mo در ایدیاکارن پسین اندکی بیشتر از کریوژنین یا ایدیاکارن آغازین و میانی بودند. این شاخص ایزوتوپی نشان میدهد که میزان اکسیژنیشدن اقیانوس در ایدیاکارن پسین با میزان اکسیژنیشدن در مزوزوئیک و در جریان رویدادهای بیاکسیژنی اقیانوسی قابل مقایسه بوده است.[۱۷]
ایزوتوپهای اورانیوم
مقادیر بسیار پایین δ238U، که معمولاً بهعنوان شاخص ایزوتوپی تغییرات اکسیژنیشدن آب دریا به کار میرود، در بخش بزرگی از نئوپروتروزوییک بهعنوان نشانهٔ اکسیژنیشدن تدریجی تفسیر شدهاند؛ فرایندی که با گسترشهای موقتی و گذرای آبهای آنوکسیک و یوکسینیک همراه بوده است.[۱۸] در ایدیاکارن آغازین، تغییر در ایزوتوپهای اورانیوم همزمان با غنیشدن در ایزوتوپهای سبک کربن رخ داد.[۱۹]
علتها
افزایش تثبیت نیتروژن
در دوران میلیارد سال خستهکننده، بهرهوری در اقیانوس باز در مقایسه با نئوپروتروزوییک و فانروزوییک بسیار پایین بود؛ زیرا باکتریهای تثبیتکنندهٔ نیتروژن پلانکتونی وجود نداشتند. تصور میشود تکامل و گسترش باکتریهای تثبیتکنندهٔ نیتروژن و پیکوسیانوباکتریهای غیرتثبیتکنندهٔ نیتروژن که قادر به اشغال زیستگاههای پلانکتونی دریایی بودند، و تغییرات متعاقب آن در چرخهٔ نیتروژن طی کریوژنین، یکی از عوامل افزایش سریع اکسیژن و حذف دیاکسید کربن از جو بوده باشد. این فرایند همچنین به توضیح شکلگیری یخچالزاییهای بسیار شدیدِ شاخص این دوره از نئوپروتروزوییک کمک میکند.[۲۰]
افزایش طول روز
کاهش سرعت چرخش زمین و افزایش متناظر طول روز، بهعنوان یکی از علل احتمالی رویداد اکسیژنی پیشینزیستی نو پیشنهاد شده است. این فرضیه بر پایهٔ یافتههای آزمایشگاهی است که نشان میدهند بهرهوری سیانوباکتریها در دورههای طولانیترِ نور روزِ پیوسته، در مقایسه با دورههای کوتاهتری که بیشتر با تاریکی قطع میشوند، بالاتر است.[۲۱] بین ۶۵۰ تا ۵۰۰ میلیون سال پیش، سرعت چرخش زمین بهطور چشمگیری کاهش یافت که با افزایش اکسیژن جو همزمان است.[۲۲]
دفن کربن آلی
در نئوپروتروزوییک، دفن کربن آلی در دریاچههای بزرگ با آبهای کفِ آنوکسیک، در مقیاسی عظیم رخ داد. هنگامی که کربن در سنگهای رسوبی محبوس شد، دیگر امکان اکسید شدن آن وجود نداشت و در نتیجه اکسیژن جو میتوانست انباشته شود.[۲۳]
حذف فسفر
افزایش گوناگونی یوکاریوتها بهعنوان یکی از عوامل افزایش اکسیژنیشدن اعماق اقیانوس، از طریق حذف فسفر از اقیانوس عمیق، پیشنهاد شده است. تکامل جانداران پرسلولی بزرگ موجب افزایش مقدار مواد آلی شد که به بستر دریا فرومیریختند (برف دریایی). این فرایند، همراه با تکامل جانداران کفزی پالیدهخوار (برای مثال قیفیتاژکداران و اسفنجهای ابتدایی مانند اوتاویا)، احتمالاً باعث شد نیاز به اکسیژن در بخشهای پایینتر ستون آب متمرکز شود. در نتیجه، یک بازخورد مثبت شکل گرفت که طی آن فسفر از اقیانوس حذف شد، بهرهوری کاهش یافت و نیاز به اکسیژن کمتر شد؛ این امر نیز به افزایش اکسیژنیشدن آبهای اعماق اقیانوس انجامید. افزایش اکسیژنیشدن اقیانوسها امکان پراکنش بیشتر یوکاریوتها را فراهم کرد و احتمالاً خود بهعنوان یک حلقهٔ بازخورد مثبت، سرعت اکسیژنیشدن را افزایش داد.[۲۴]
پیامدها
یخچالزایی
افزایش سریع ترسیب کربن در نتیجهٔ افزایش نرخ فتوسنتز جهانی توسط سیانوباکتریها و فتواتوتروفهای یوکاریوتی (مانند جلبکهای سبز و قرمز)، که همزمان با افزایش هوازدگی سیلیکاتی بازالتهای سیلابی قارهای ناشی از تجزیهٔ ابرقارهٔ رودینیا رخ داد،[۲۵] احتمالاً یکی از عوامل آغازگر یخبندان استورتین و یخبندان مارینو در کریوژنین، یعنی دورهٔ میانی نئوپروتروزوییک، بوده است.[۲۰]
تنوع زیستی
در دورهٔ تونین، ممکن است نخستین جانداران پرسلولی بسیار ابتدایی در «واحههای اکسیژن» در اعماق اقیانوس تکامل یافته و گوناگون شده باشند؛ محیطهایی که در مراحل اولیهٔ تکامل یوکاریوتها همچون گهوارههای تکاملی عمل میکردند.[۲۶] بااینحال، تداوم شرایط آنوکسیک و یوکسینیک در تونین پسین، باوجود برخی افزایشها در میزان اکسیژن، سبب شد تنوع کلی یوکاریوتها همچنان پایین بماند.[۲۷] در طول دورهٔ ادیاکاران، اقیانوسها بهتدریج اکسیژنیتر شدند،[۲۸] و بازهٔ زمانی بلافاصله پس از یخبندان گاسکیرز شواهدی از افزایش چشمگیر میزان اکسیژن دریایی را نشان میدهد.[۲۹] برخی پژوهشگران تنوع سریع حیات پرسلولی در این دورهٔ زمینشناختی را به افزایش میزان اکسیژن نسبت دادهاند،[۳۰] و این افزایش امکان داد یوکاریوتهای پرسلولیِ شاخص زیواگان ادیاکاران که برای تنفس به اکسیژن نیاز داشتند، بهطور گسترده در محیطهای مختلف پراکنده شوند.[۳۱][۳۲][۳۳] حیات پرسلولی ابتدا به آبهای عمیقتر و سردتری محدود بود که بیشترین مقدار اکسیژن محلول را داشتند، اما با افزایش سطح جهانی اکسیژن، بهتدریج به نواحی گرمتر اقیانوس نیز گسترش یافت.[۳۴]
جستارهای وابسته
منابع
- ↑ Holland, Heinrich D. (19 May 2006). "The oxygenation of the atmosphere and oceans". Philosophical Transactions of the Royal Society: Biological Sciences. 361 (1470): 903–915. doi:10.1098/rstb.2006.1838. PMC 1578726. PMID 16754606.
- 1 2 3 Och, Lawrence M.; Shields-Zhou, Graham A. (January 2012). "The Neoproterozoic oxygenation event: Environmental perturbations and biogeochemical cycling". Earth-Science Reviews. 110 (1–4): 26–57. Bibcode:2012ESRv..110...26O. doi:10.1016/j.earscirev.2011.09.004. Retrieved 10 November 2022.
- ↑ Stockey, Richard G.; Cole, Devon B.; Farrell, Una C.; et al. (2024-07-02). "Sustained increases in atmospheric oxygen and marine productivity in the Neoproterozoic and Palaeozoic eras". Nature Geoscience. 17. Nature Portfolio: 667–674. doi:10.1038/s41561-024-01479-1. Retrieved 2026-07-17.
- ↑ Krause, Alexander J.; Mills, Benjamin J. W.; Merdith, Andrew S.; Lenton, Timothy M.; Poulton, Simon W. (2022-10-14). "Extreme variability in atmospheric oxygen levels in the late Precambrian". Science Advances. 8 (41). American Association for the Advancement of Science. doi:10.1126/sciadv.abm819. Retrieved 2026-07-17.
- ↑ Stern, Robert J.; Mukherjee, Sumit K.; Miller, Nathan R.; Ali, Kamal; Johnson, Peter R. (December 2013). "~750 Ma banded iron formation from the Arabian-Nubian Shield—Implications for understanding neoproterozoic tectonics, volcanism, and climate change". Precambrian Research. 239: 79–94. Bibcode:2013PreR..239...79S. doi:10.1016/j.precamres.2013.07.015. Retrieved 20 December 2022.
- 1 2 3 Shields-Zhou, Graham A.; Och, Lawrence M. (March 2011). "The case for a Neoproterozoic Oxygenation Event: Geochemical evidence and biological consequences" (PDF). GSA Today. 21 (3): 4–11. Bibcode:2011GSAT...21c...4S. doi:10.1130/GSATG102A.1. Retrieved 10 November 2022.
- ↑ Riding, Robert (17 November 2006). "Cyanobacterial calcification, carbon dioxide concentrating mechanisms, and Proterozoic–Cambrian changes in atmospheric composition". Geobiology. 4 (4): 299–316. Bibcode:2006Gbio....4..299R. doi:10.1111/j.1472-4669.2006.00087.x. S2CID 131564268. Retrieved 10 November 2022.
- ↑ Ader, Magali; Sansjofre, Pierre; Halverson, Galen P.; Busigny, Vincent; Trindade, Ricardo I. F.; Kunzmann, Marcus; Nogueira, Afonso C. R. (15 June 2014). "Ocean redox structure across the Late Neoproterozoic Oxygenation Event: A nitrogen isotope perspective". Earth and Planetary Science Letters. 396: 1–13. Bibcode:2014E&PSL.396....1A. doi:10.1016/j.epsl.2014.03.042. Retrieved 10 November 2022.
- ↑ Hurtgen, Matthew T.; Arthur, Michael A.; Halverson, Galen P. (1 January 2005). "Neoproterozoic sulfur isotopes, the evolution of microbial sulfur species, and the burial efficiency of sulfide as sedimentary pyrite". Geology. 33 (1): 41–44. Bibcode:2005Geo....33...41H. doi:10.1130/G20923.1. Retrieved 10 November 2022.
- ↑ Halverson, Galen P.; Hurtgen, Matthew T. (15 November 2007). "Ediacaran growth of the marine sulfate reservoir". Earth and Planetary Science Letters. 263 (1–2): 32–44. Bibcode:2007E&PSL.263...32H. doi:10.1016/j.epsl.2007.08.022. Retrieved 10 November 2022.
- ↑ Fike, D. A.; Grotzinger, J. P.; Pratt, L. M.; Summons, R. E. (7 December 2006). "Oxidation of the Ediacaran Ocean". Nature. 444 (7120): 744–747. Bibcode:2006Natur.444..744F. doi:10.1038/nature05345. PMID 17151665. S2CID 4337003. Retrieved 10 November 2022.
- ↑ Canfield, Donald Eugene; Teske, Andreas (11 July 1996). "Late Proterozoic rise in atmospheric oxygen concentration inferred from phylogenetic and sulphur-isotope studies". Nature. 382 (6587): 127–132. Bibcode:1996Natur.382..127C. doi:10.1038/382127a0. PMID 11536736. S2CID 4360682. Retrieved 10 November 2022.
- ↑ Kennedy, Martin J.; Droser, Mary L.; Mayer, Lawrence M.; Pevear, David; Mrofka, David (10 March 2006). "Late Precambrian Oxygenation; Inception of the Clay Mineral Factory". Science. 311 (5766): 1446–1449. Bibcode:2006Sci...311.1446K. doi:10.1126/science.1118929. PMID 16456036. S2CID 45140929. Retrieved 10 November 2022.
- ↑ Frei, Robert; Gaucher, Claudio; Poulton, Simon W.; Canfield, Donald Eugene (10 September 2009). "Fluctuations in Precambrian atmospheric oxygenation recorded by chromium isotopes". Nature. 461 (7261): 250–253. Bibcode:2009Natur.461..250F. doi:10.1038/nature08266. PMID 19741707. S2CID 4373201. Retrieved 10 November 2022.
- ↑ Casado, Juan (17 October 2021). "A Review of the Neoproterozoic Global Glaciations and a Biotic Cause of Them". Earth Systems and Environment. 5 (4): 811–824. Bibcode:2021ESE.....5..811C. doi:10.1007/s41748-021-00258-x.
- ↑ Xu, Lingang; Frank, Anja B.; Lehmann, Bernd; Zhu, Jianming; Mao, Jingwen; Ju, Yongze; Frei, Robert (21 October 2019). "Subtle Cr isotope signals track the variably anoxic Cryogenian interglacial period with voluminous manganese accumulation and decrease in biodiversity". Scientific Reports. 9 (1): 15056. Bibcode:2019NatSR...915056X. doi:10.1038/s41598-019-51495-0. PMC 6803686. PMID 31636318.
- ↑ Tan, Zhaozhao; Wu, Jinxiang; Jia, Wanglu; Li, Jie; Kendall, Brian; Song, Jianzhong; Peng, Ping'an (20 April 2023). "Molybdenum isotope evidence from restricted-basin mudstones for an intermediate extent of oxygenation in the late Ediacaran ocean". Chemical Geology. 623 121410. Bibcode:2023ChGeo.623l1410T. doi:10.1016/j.chemgeo.2023.121410. ISSN 0009-2541. Retrieved 28 September 2023.
- ↑ Clarkson, Matthew O.; Sweere, Tim C.; Chiu, Chun Fung; Hennekam, Rick; Bowyer, Tim; Wood, Rachel A. (February 2023). "Environmental controls on very high δ238U values in reducing sediments: Implications for Neoproterozoic seawater records". Earth-Science Reviews. 237 104306. doi:10.1016/j.earscirev.2022.104306. hdl:20.500.11850/594625. Retrieved 17 June 2023.
- ↑ Chen, Bo; Hu, Chunlin; Mills, Benjamin J. W.; He, Tianchen; Andersen, Morten B.; Chen, Xi; Liu, Pengju; Lu, Miao; Newton, Robert J.; Poulton, Simon W.; Shields, Graham A.; Zhu, Maoyan (1 January 2022). "A short-lived oxidation event during the early Ediacaran and delayed oxygenation of the Proterozoic ocean". Earth and Planetary Science Letters. 577 117274. Bibcode:2022E&PSL.57717274C. doi:10.1016/j.epsl.2021.117274. Retrieved 17 June 2023.
- 1 2 Sánchez-Baracaldo, Patricia; Ridgwell, Andy; Raven, John A. (17 March 2014). "A Neoproterozoic Transition in the Marine Nitrogen Cycle". Current Biology. 24 (6): 652–657. Bibcode:2014CBio...24..652S. doi:10.1016/j.cub.2014.01.041. PMID 24583016. S2CID 16756351.
- ↑ Klatt, J. M.; Chennu, A.; Arbic, B. K.; Biddanda, B. A.; Dick, G. J. (2 August 2021). "Possible link between Earth's rotation rate and oxygenation". Nature Geoscience. 14 (8): 564–570. Bibcode:2021NatGe..14..564K. doi:10.1038/s41561-021-00784-3. S2CID 236780731.
- ↑ Geological evidence reveals a staircase pattern in Earth’s rotational deceleration evolution
- ↑ Spinks, Samuel C.; Parnell, John; Bowden, Stephen A.; Taylor, Ross A.D.; Maclean, Màiri E. (December 2014). "Enhanced organic carbon burial in large Proterozoic lakes: Implications for atmospheric oxygenation". Precambrian Research (in English). 255: 202–215. Bibcode:2014PreR..255..202S. doi:10.1016/j.precamres.2014.09.026. Retrieved 18 July 2024 – via Elsevier Science Direct.
- ↑ Lenton, Timothy M.; Boyle, Richard A.; Poulton, Simon W.; Shields-Zhou, Graham A.; Butterfield, Nicholas J. (9 March 2014). "Co-evolution of eukaryotes and ocean oxygenation in the Neoproterozoic era". Nature Geoscience. 7 (4): 257–265. Bibcode:2014NatGe...7..257L. doi:10.1038/ngeo2108. hdl:10871/15316. Retrieved 10 November 2022.
- ↑ Cox, Grant M.; Halverson, Galen P.; Stevenson, Ross K.; Vokaty, Michelle; Poirier, André; Kunzmann, Marcus; Li, Zheng-Xiang; Denyszyn, Steven W.; Strauss, Justin V.; Macdonald, Francis A. (15 July 2016). "Continental flood basalt weathering as a trigger for Neoproterozoic Snowball Earth". Earth and Planetary Science Letters. 446: 89–99. Bibcode:2016E&PSL.446...89C. doi:10.1016/j.epsl.2016.04.016.
- ↑ Wang, Haiyang; Liu, Aoran; Li, Chao; Feng, Qinglai; Tang, Shida; Cheng, Meng; Algeo, Thomas J. (April 2021). "A benthic oxygen oasis in the early Neoproterozoic ocean". Precambrian Research. 355 106085: 1–11. Bibcode:2021PreR..35506085W. doi:10.1016/j.precamres.2020.106085. Retrieved 29 April 2023.
- ↑ Stacey, Jack; Hood, Ashleigh v.S.; Wallace, Malcolm W. (October 2023). "Persistent late Tonian shallow marine anoxia and euxinia". Precambrian Research (in English). 397 107207. Bibcode:2023PreR..39707207S. doi:10.1016/j.precamres.2023.107207.
- ↑ Álvaro, J. Javier; Shields-Zhou, Graham A.; Ahlberg, Per; Jensen, Sören; Palacios, Teodoro (23 May 2015). "Ediacaran–Cambrian phosphorites from the western margins of Gondwana and Baltica". Sedimentology. 63 (2): 350–377. doi:10.1111/sed.12217. S2CID 128529800. Retrieved 10 November 2022.
- ↑ Macdonald, Francis A.; Strauss, Justin V.; Sperling, Erik A.; Halverson, Galen P.; Narbonne, Guy M.; Johnston, David T.; Kunzmann, Marcus; Schrag, Daniel P.; Higgins, John A. (20 December 2013). "The stratigraphic relationship between the Shuram carbon isotope excursion, the oxygenation of Neoproterozoic oceans, and the first appearance of the Ediacara biota and bilaterian trace fossils in northwestern Canada". Chemical Geology. 362: 250–272. Bibcode:2013ChGeo.362..250M. doi:10.1016/j.chemgeo.2013.05.032. S2CID 10374332. Retrieved 10 November 2022.
- ↑ Fan, Haifeng; Zhu, Xiangkun; Wen, Hanjie; Yan, Bin; Li, Jin; Feng, Lianjun (1 September 2014). "Oxygenation of Ediacaran Ocean recorded by iron isotopes". Geochimica et Cosmochimica Acta. 140: 80–94. Bibcode:2014GeCoA.140...80F. doi:10.1016/j.gca.2014.05.029. Retrieved 10 November 2022.
- ↑ Canfield, Donald Eugene; Poulton, Simon W.; Narbonne, Guy M. (5 January 2007). "Late-Neoproterozoic Deep-Ocean Oxygenation and the Rise of Animal Life". Science. 315 (5808): 92–95. Bibcode:2007Sci...315...92C. doi:10.1126/science.1135013. PMID 17158290. S2CID 24761414.
- ↑ Evans, Scott D.; Diamond, Charles W.; Droser, Mary L.; Lyons, Timothy W. (13 July 2018). "Dynamic oxygen and coupled biological and ecological innovation during the second wave of the Ediacara Biota". Emerging Topics in Life Sciences. 2 (2): 223–233. Bibcode:2018ETLS....2..223E. doi:10.1042/ETLS20170148. PMID 32412611. S2CID 134889828. Retrieved 10 November 2022.
- ↑ Pehr, Kelden; Love, Gordon D.; Kuznetsov, Anton; Podkovyrov, Victor; Junium, Christopher K.; Shumlyanskyy, Leonid; Sokur, Tetyana; Bekker, Andrey (4 May 2018). "Ediacara biota flourished in oligotrophic and bacterially dominated marine environments across Baltica". Nature Communications. 9 (1): 1807. Bibcode:2018NatCo...9.1807P. doi:10.1038/s41467-018-04195-8. PMC 5935690. PMID 29728614.
- ↑ Boag, Thomas H.; Stockey, Richard G.; Elder, Leanne E.; Hull, Pincelli M.; Sperling, Erik A. (12 December 2018). "Oxygen, temperature and the deep-marine stenothermal cradle of Ediacaran evolution". Proceedings of the Royal Society B: Biological Sciences. 285 (1893): 1–10. Bibcode:2018PBioS.28581724B. doi:10.1098/rspb.2018.1724. PMC 6304043. PMID 30963899.
- پیشینزیستی نو
- سرچشمه زندگی
- اکسیژن
- رویدادهای تاریخ زمینشناختی زمین
- فرگشت زیستکره
- فرضیههای هواشناسی