میلیارد سال خستهکننده
میلیارد سال خستهکننده (انگلیسی: Boring Billion)، که با نامهای پروتروزوئیک میانه و قرون وسطای زمین نیز شناخته میشود، یک دوره زمینشناسی غیررسمی است که بین ۱٫۸ تا ۰٫۸ میلیارد سال پیش در اواسط ابد پروتروزوئیک (از استاترین تا دوره تونین) رخ داد. این دوران با ثبات نسبی تکتونیکی، سکون اقلیمی و کندیِ فرگشت زیستی مشخص میشود. با وجود اینکه این بازه در بین دو رویداد اکسیژنی شدن متفاوت (رویداد بزرگ اکسیژنی و رویداد اکسیژنی شدن نئوپروتروزوئیک) و دو رویداد یخبندان جهانی (یخبندان هورونی و یخبندانهای کریوژنین) قرار گرفته است، اما در خود این میلیارد سال خستهکننده، سطح اکسیژن بسیار پایین بود (هیپوکسی) و هیچ شواهد زمینشناختی مبنی بر وقوع یخبندان در آن وجود ندارد.
اقیانوسها در طول این میلیارد سال خستهکننده احتمالاً کماکسیژن، سرشار از سولفید و فاقد مواد مغذیِ کافی بودهاند (یعنی شرایط یوکسینیک). این اقیانوسها عمدتاً زیستگاه باکتریهای ارغوانی بودند؛ نوعی باکتری فتوسنتزکننده مبتنی بر باکتریوکلروفیل که به جای آب، از سولفید هیدروژن (H2S) برای تثبیت کربن استفاده میکردند و به جای اکسیژن، گوگرد را به عنوان محصول جانبی تولید مینمودند. این وضعیت به عنوان اقیانوس کنفیلد شناخته میشود و چنین ترکیباتی احتمالاً باعث شده بود که رنگ اقیانوسها به جای آبی یا سبزِ امروزی، ترکیبی از رنگهای تیره و شیری-فیروزهای باشد. (در نقطه مقابل، در فاز بسیار قدیمیتر «زمین ارغوانی» در ابد آرکئن، فتوسنتز اولیه و بدون تولید اکسیژن عمدتاً توسط کلنیهای آرکیا انجام میشد. این کلنیها با استفاده از پمپهای پروتونی مبتنی بر رتینال که نور سبز را جذب میکردند، بهطور مستقیم آدنوزین تریفسفات میساختند و رنگ اقیانوسها در آن زمان به احتمال زیاد سرخابی-ارغوانی بود.)
با وجود چنین شرایط نامساعدی، یوکاریوتها احتمالاً در همان اوایل میلیارد سال خستهکننده از طریق همزیستزایی فرگشت یافتند و سازگاریهای جدیدِ متعددی از جمله اندامکهای مختلف، چندسلولی بودن و احتمالاً تولید مثل جنسی را توسعه دادند. در پایان این دوره زمانی، آنها به انواع جلبکها، قارچها، آغازیان و اجداد اولیه جانوران تنوع پیدا کردند.[۱] چنین پیشرفتهایی احتمالاً پیشنیازهای مهمی برای تابش فرگشتیِ بزرگمقیاس در حیات پیچیدهی درشتنمود بودهاند که بعدها در انفجار آوالونِ دوره ادیاکاران و به دنبال آن در انفجار کامبرینِ دوران فانروزوئیک رخ داد. با این حال، سیانوباکتریهای پروکاریوت شکل غالب حیاتِ خودپرورد در این دوره زمانی بودند و احتمالاً پایهای برای یک شبکه غذاییِ کمانرژی با تعداد اندکی از آغازیان به عنوان شکارچی رأس هرم غذایی محسوب میشدند. خشکیها نیز در حاشیه ساحل و سواحل رودخانهها احتمالاً توسط سیانوباکتریهای به ساحل راندهشده و نیا-گلسنگهای یوکاریوتی اشغال شده بودند؛ گلسنگهایی که احتمالاً به دلیل مقاومت بیشتر در برابر محیطهای خشک و تشعشعات مرگبار خورشیدی (زیرا در آن زمان لایه اوزونِ محافظ هنوز شکل نگرفته بود)، موفقیت بیشتری برای زندگی در خشکی داشتند.
توصیف
در سال ۱۹۹۵، راجر بیوک، دیویس دز ماری و اندرو نول، زمینشناسانی بودند که فقدان آشکار رویدادهای بزرگِ زیستی، زمینشناختی و اقلیمی در دوران پیشینزیستی میانه (۱٫۶ تا ۱ میلیارد سال پیش) را بررسی کرده و آن را به عنوان «کسلکنندهترین زمان در تاریخ زمین» توصیف نمودند.[۲] اصطلاح «میلیارد سال خستهکننده» توسط دیرینهشناسی به نام مارتین برازیر برای اشاره به بازه زمانی بین حدود ۲ تا ۱ میلیارد سال پیش ابداع شد که با رکود ژئوشیمیایی و توقف یخبندانها مشخص میشود.[۳] در سال ۲۰۱۳، گرانت یانگِ ژئوشیمیدان از اصطلاح «میلیارد سالِ سترون» (Barren Billion) برای اشاره به دورهای از توقفِ آشکارِ یخبندان و فقدانِ نوسانات ایزوتوپی کربن از ۱٫۸ تا ۰٫۸ میلیارد سال پیش استفاده کرد.[۴] در سال ۲۰۱۴، پیتر کاوود و کریس هاکسورث (زمینشناسان)، زمانِ بین ۱٫۷ تا ۰٫۷۵ میلیارد سال پیش را به دلیل نبود شواهدی از حرکت تکتونیکی، «قرون وسطای زمین» نامیدند.[۵]
امروزه عمدتاً از اصطلاح میلیارد سال خستهکننده برای اشاره به بازه زمانی ۱٫۸ تا ۰٫۸ میلیارد سال پیش استفاده میشود که درون ابد پروتروزوئیک، و بهطور خاص در دوران مزوپروتروزوئیک جای میگیرد. با این حال، برخی دیگر استدلال کردهاند که این دوره باید از حدود ۲٫۰ تا ۱٫۰ میلیارد سال پیش در نظر گرفته شود و به نوساناتِ موجود در سابقه ایزوتوپ کربن مرتبط باشد.[۶][۷] میلیارد سال خستهکننده با رکود زمینشناختی، اقلیمی و بهطور عمده فرگشتی، همراه با فراوانیِ پایینِ مواد مغذی مشخص میشود.[۸][۹][۱۰]
در زمانهای منتهی به میلیارد سال خستهکننده، زمین به دلیل تکامل سیانوباکتریهای اکسیژنساز، رویداد بزرگ اکسیژنی را تجربه کرد و پیامدهای آن شامل یخبندان هورونی (زمین گوی برفی)، تشکیل لایه اوزونِ مسدودکننده اشعه فرابنفش و اکسایش (اکسیداسیون) چندین فلز بود.[۱۱] تصور میشود سطح اکسیژن در طول میلیارد سال خستهکننده بهطور قابلتوجهی پایینتر از زمان رویداد بزرگ اکسیژنی بوده باشد، که شاید تنها بین ۰٫۱٪ تا ۱۰٪ سطوح کنونی بود.[۱۲] این دوره با تجزیه و فروپاشی ابرقاره رودینیا در دوره تونین (۱۰۰۰ تا ۷۲۰ میلیون سال پیش)، رویدادِ اکسیژنی شدنِ دوم، و پیدایشِ یک رویدادِ زمین گویبرفیِ دیگر در دوره کریوژنین به پایان رسید.[۵][۱۳]
سکون تکتونیکی

روند فرگشت زیستکره، جو و آبکره زمین مدتهاست که به چرخه ابرقارهها مرتبط دانسته میشود؛ چرخهای که در آن قارهها به هم میپیوندند و سپس از هم جدا میشوند. میلیارد سال خستهکننده شاهدِ فرگشتِ دو ابرقاره بود: کلمبیا (یا نونا) و رودینیا.[۱۰][۱۴]
ابرقاره کلمبیا بین ۲٫۰ تا ۱٫۷ میلیارد سال پیش شکل گرفت و حداقل تا ۱٫۳ میلیارد سال پیش دستنخورده باقی ماند. شواهد زمینشناختی و دیرینهمغناطیسشناسی نشان میدهد که کلمبیا تغییرات جزئیِ اندکی را پشت سر گذاشت تا در بازه ۱٫۱ تا ۰٫۹ میلیارد سال پیش، ابرقاره رودینیا را تشکیل دهد. بازسازیهای دیرینهجغرافیایی پیشنهاد میکنند که این مجموعه قارهای در مناطق آبوهوایی استوایی و معتدل قرار داشته است و شواهد اندکی (یا هیچگونه شواهدی) مبنی بر وجود قطعات قارهای در مناطق قطبی یافت نشده است.[۱۴]
به دلیل فقدان شواهدی مبنی بر انباشت رسوبات (در حاشیههای غیرفعالِ قارهای) که معمولاً به دنبالِ شکافت یا ریفتزایی رخ میدهد،[۱۵] این ابرقاره احتمالاً متلاشی نشد و صرفاً مجموعهای به همپیوسته از پیشقارهها و کراتونها بود. هیچ شواهدی از شکافت تکتونیکی تا پیش از زمان شکلگیری رودینیا (در ۱٫۲۵ میلیارد سال پیش در لورنتیای شمالی، و ۱ میلیارد سال پیش در شرق بالتیکا و جنوب سیبری) وجود ندارد.[۱۰] فروپاشی تا ۰٫۷۵ میلیارد سال پیش رخ نداد، که وقوع آن نشانه پایان یافتن میلیارد سال خستهکننده است.[۵] این سکونِ تکتونیکی ممکن است با وضعیتِ شیمیِ اقیانوسها و اتمسفر مرتبط بوده باشد.[۱۰][۸]
ممکن است در آن زمان، سستکره (استنوسفر)—لایه نیمهجامدِ گوشته زمین که صفحات تکتونیکی اساساً روی آن شناور بوده و حرکت میکنند—بسیار داغتر از آن بوده باشد که بتواند از الگوهای تکتونیک صفحهایِ امروزی پشتیبانی کند. در نتیجه، به جای بازیافتِ مداوم و شدیدِ صفحات در مناطق فرورانش، این صفحات میلیاردها سال به هم متصل ماندند تا اینکه گوشته به اندازه کافی خنک شد. آغازِ الگوهای جدید تکتونیک صفحهای احتمالاً با خنک شدن و ضخیم شدنِ پوسته سرعت گرفت؛ فرایندی که پس از شروع، فرورانش صفحات را بهطور غیرعادی قدرتمند کرد و در اواخر میلیارد سال خستهکننده به وقوع پیوست.[۵]
با این وجود، رویدادهای عظیمِ ماگمایی همچنان در جریان بودند، مانند تشکیلِ استان ماسگریو در مرکز استرالیا با وسعت ۲۲۰٬۰۰۰-کیلومتر-مربع (۸۵٬۰۰۰-مایل-مربع) (از طریق ستونهای ماگمایی) بین ۱٫۲۲ تا ۱٫۱۲ میلیارد سال پیش،[۱۶] و تشکیلِ بوم آذرین بزرگ مکنزی در کانادا با وسعت ۲٬۷۰۰٬۰۰۰ کیلومتر مربع (۱٬۰۰۰٬۰۰۰ مایل مربع) در ۱٫۲۷ میلیارد سال پیش.[۱۷] تکتونیک صفحهای نیز هنوز به اندازهای فعال بود که کوهزایی کند و در این دوران، چندین کوهزایی از جمله کوهزایی گرنویل به وقوع پیوستند.[۱۸]
ثبات اقلیمی
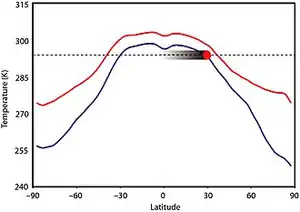
شواهد اندکی از نوساناتِ اقلیمیِ چشمگیر در این دوره زمانی وجود دارد.[۴][۱۹] اقلیم زمین به احتمال زیاد توسط درخشندگی خورشید تعیین نمیشد، زیرا درخشندگی خورشید در آن زمان ۵ تا ۱۸ درصد کمتر از امروز بود، اما با این وجود هیچ شواهدی نیز مبنی بر سردتر بودنِ اقلیم زمین در آن دوره به دست نیامده است.[۲۰][۲۱] در واقع، به نظر میرسد میلیارد سال خستهکننده هیچ اثری از یخبندانهای طولانیمدت به همراه نداشته باشد؛ پدیدهای که بهطور معمول با تناوب منظمی در سایر دورههای تاریخِ زمینشناختیِ زمین دیده میشود.[۲۱] مقادیر بالای CO2 نمیتوانستند عامل و محرکِ اصلیِ گرمایش باشند، زیرا برای جلوگیری از تشکیل یخ، سطح این گاز باید ۳۰ تا ۱۰۰ برابر بیشتر از سطوح پیش از انقلاب صنعتی میبود[۲۰] که این امر به نوبه خود منجر به اسیدی شدنِ شدیدِ اقیانوسها میشد؛[۲۱] پدیدهای که باز هم اتفاق نیفتاد. سطوح CO2 مزوپروتروزوئیک ممکن است با دوران فانروزوئیک قابل مقایسه بوده باشد (شاید ۷ تا ۱۰ برابر بیشتر از سطوح امروزی).[۲۲] نخستین شواهد یخیِ متعلق به این بازه زمانی، در سال ۲۰۲۰ از سازند دایبِگ در گروه توریدون واقع در اسکاتلند (با قدمت ۱ میلیارد سال) گزارش شد. در این مکان، تشکیلات سنگافت به احتمال قوی توسط بقایای حاصل از یخرفت ایجاد شدهاند؛ این منطقه که در آن زمان در محدوده جغرافیایی بین عرضهای ۳۵ تا ۵۰ درجه جنوبی قرار داشت، دریاچهای (احتمالاً کوهستانی) بود که تصور میشود در زمستانها یخ میبست و در تابستان ذوب میشد، و انتقال یخرفتها در طول ذوبهای بهاری انجام میگرفت.[۲۳]
فراوانی بیشترِ سایرِ گازهای گلخانهای—یعنی متان تولید شده توسط پروکاریوتها—ممکن است کمبودِ مقادیر CO2 را جبران کرده باشد؛ بدین معنا که جهانی عمدتاً عاری از یخ، با دستیابی به غلظت ۱۴۰ پیپیام (ppm) از متان اتمسفری حفظ میشد.[۲۲][۲۰] پروکاریوتهای متانزا به تنهایی نمیتوانستند این مقدار متان را تولید کنند، که این مسئله نشان میدهد گاز گلخانهای دیگری، احتمالاً دی نیتروژن مونوکسید (گاز خنده)، به مقدار زیادی (شاید تا ۳ ppm، معادل ۱۰ برابر سطوح امروزی) در اتمسفر وجود داشته است. بر اساس غلظتهای فرضی این گازهای گلخانهای، دمای خط استوا در طول دوران مزوپروتروزوئیک ممکن است بین ۲۹۵–۳۰۰ کلوین (۲۲–۲۷ درجه سلسیوس؛ ۷۱–۸۰ درجه فارنهایت)، در مناطق گرمسیری ۲۹۰ کلوین (۱۷ درجه سلسیوس؛ ۶۲ درجه فارنهایت)، در عرضهای ۶۰ درجه معادل ۲۶۵–۲۸۰ کلوین (−۸–۷ درجه سلسیوس؛ ۱۷–۴۴ درجه فارنهایت)، و در قطبها ۲۵۰–۲۷۵ کلوین (−۲۳–۲ درجه سلسیوس؛ −۱۰–۳۵ درجه فارنهایت) بوده باشد؛[۲۴] همچنین میانگین دمای جهانی حدود ۱۹ درجه سلسیوس (۶۶ درجه فارنهایت) تخمین زده میشود که ۴ درجه سانتیگراد (۷٫۲ درجه فارنهایت) گرمتر از زمینِ امروزی است. دما در قطبها در فصل زمستان به زیر نقطه انجماد میرسید که امکان تشکیل موقت یخهای دریایی و بارش برف را فراهم میآورد، اما به احتمال قوی لایههای یخی دائمی و پایداری وجود نداشتند.[۹]
همچنین پیشنهاد شده است که از آنجایی که شدت پرتوهای کیهانی همبستگی مثبتی با پوشش ابرها دارد، و پوشش ابرها با بازتاباندن نور خورشید به فضا باعث کاهش دمای جهانی میشود، کاهشِ نرخِ برخوردِ این پرتوها در این زمان (به دلیل کاهش سرعت ستارهزایی در کهکشان) باعث کاهش پوشش ابر شده، از وقوع یخبندانها جلوگیری کرده، و اقلیمی گرم را حفظ نموده است.[۲۱][۲۵] به علاوه، ترکیبی از شدت هوازدگی (که با اکسیداسیون فلزاتِ در معرض هوا، میزان CO2 را کاهش میداد)، خنک شدن گوشته و کاهشِ میزان حرارت زمینگرمایی و آتشفشانی، در تقابل با افزایشِ شدت تابش و گرمای خورشیدی، احتمالاً به تعادلی رسیده بودند که مانع از تشکیل یخ میشد.[۴]
از سوی دیگر، تحرکات یخچالی مربوط به بیش از یک میلیارد سال پیش ممکن است بقایای چندانی برای امروز به جا نگذاشته باشند، و نبودِ آشکارِ شواهدِ یخبندان، میتواند بیشتر ناشی از ناقص بودنِ سوابق فسیلی و زمینشناختی باشد تا عدم وقوع آنها. علاوه بر این، سطوح پایینِ اکسیژن و شدت خورشیدی ممکن است مانع از تشکیل لایه اوزون شده باشد، که عدم وجود آن میتوانست از به دام افتادنِ گازهای گلخانهای در اتمسفر و گرم شدن زمین از طریق اثر گلخانهای جلوگیری کند و در نتیجه موجب یخبندان شود.[۲۶][۲۷][۲۸] گرچه برای حفظ لایه اوزون به مقادیر زیادی از اکسیژن نیاز نیست و سطوح اکسیژن در میلیارد سال خستهکننده ممکن است برای این منظور کافی بوده باشد،[۲۹] اما زمین به احتمال قوی بسیار بیشتر از امروز تحت بمباران پرتوهای فرابنفش (UV) قرار داشته است.[۳۰]
ترکیب اقیانوسی
به نظر میرسد غلظت مواد مغذی کلیدی مانند مولیبدن، آهن، نیتروژن و فسفر که برای حیات پیچیده ضروری پنداشته میشوند، در اقیانوسها بسیار پایین بوده است. این امر تا حد زیادی به دلیل کمبود اکسیژن و در نتیجه نبودِ شرایطِ اکسیداسیونِ لازم برای پیشبردِ این چرخههای ژئوشیمیایی رخ داد.[۳۱][۳۲][۳۳] با این حال، این مواد مغذی میتوانستند در محیطهای خشکیمانند، از جمله دریاچهها یا محیطهای نزدیک به ساحل که به روانآبهای قارهای نزدیکتر بودند، فراوانتر باشند.[۳۴]
بهطور کلی، اقیانوسها احتمالاً دارای یک لایه سطحیِ اکسیژندار، یک لایه میانیِ سرشار از سولفید،[۳۵][۳۶][۳۷] و یک لایه پایینیِ زیر-اکسیژنی (سوباکسیک) بودهاند.[۳۸][۳۹] تسلطِ این ترکیب سولفیدی ممکن است باعث شده باشد رنگ اقیانوسها به جای آبی، سیاه و شیری-فیروزهای رنگ باشد.[۴۰]
اکسیژن
سوابق زمینشناختیِ زمین حاکی از وقوع دو رویداد مرتبط با افزایش چشمگیر سطح اکسیژن است: رویداد اول بین ۲٫۴ تا ۲٫۱ میلیارد سال پیش رخ داد که با نام رویداد بزرگ اکسیژنی (GOE) شناخته میشود، و رویداد دوم در حدود ۰٫۸ میلیارد سال پیش رخ داد که به نام رویداد اکسیژنی شدن نئوپروتروزوئیک (NOE) معروف است.[۴۱] تفسیر رایج این است که بازه زمانی بین این دو رویداد، دورانی میانی (یعنی میلیارد سال خستهکننده) بوده که سطوح پایینی از اکسیژن (همراه با نوسانات جزئی) داشته است و این امر منجر به شکلگیری نواحی گستردهای از آبهای بیاکسیژن گردید.[۳۶] با این حال، پژوهشهای جدیدتر نشان دادهاند که شواهد مبنی بر افت شدیدِ اکسیژن پس از رویداد بزرگ اکسیژنی همچنان قطعی نیستند، بنابراین میلیارد سال خستهکننده ممکن است صرفاً نشاندهنده تداوم و تثبیتِ سطوح اکسیژن پس از GOE باشد.[۴۲]
اقیانوسها احتمالاً به شدت لایهبندی شده بودند، به طوری که آبهای سطحی اکسیژندار[۳۵][۳۶][۳۷] و آبهای عمیق زیر-اکسیژنی (با کمتر از ۱ میکرومولار اکسیژن) بودند.[۳۹] لایه زیرین به احتمال قوی توسط سطوح پایینتری از هیدروژن (H2) و H2S که از سوی چاههای گرمابیِ اعماق دریا ساطع میشدند، حفظ میگردید؛ ترکیباتی که در غیر این صورت توسط اکسیژن، واکنشِ شیمیاییِ احیا میدادند (یعنی منجر به ایجاد آبهای یوکسینیک میشدند).[۳۸] حتی در کمعمقترین آبها نیز، مقادیر قابلتوجهِ اکسیژن احتمالاً تنها به مناطق نزدیک ساحل محدود میشد.[۴۳] فرایند تجزیه مواد آلی تهنشینشده نیز اکسیژنِ آبهای عمیق را مصرف میکرد.[۴۴][۳۶]
افت ناگهانی اکسیژن (O2) پس از رویداد بزرگ اکسیژنی—که بر اساس سطوح δ13C نشان میدهد اتلافی معادل با ۱۰ تا ۲۰ برابر حجم کنونی اکسیژن جو بوده است—به عنوان رویداد لوماگوندی-جاتولی شناخته میشود و برجستهترین رویداد مرتبط با ایزوتوپهای کربن در تاریخ زمین است.[۴۵][۴۶][۴۷] در این زمان سطح اکسیژن ممکن است به کمتر از ۰٫۱٪ تا ۱٪ از سطوح امروزی رسیده باشد،[۴۸] که این اتفاق به طرز مؤثری روند فرگشتِ حیاتِ پیچیده را در طول میلیارد سال خستهکننده متوقف کرد.[۴۱][۳۷] با این حال، پیشنهاد شده است که یک رویدادِ اکسیژنی شدنِ مزوپروتروزوئیک (MOE) رخ داده است که طی آن، در مقاطع زمانی مختلفی بین ۱٫۵۹ تا ۱٫۳۶ میلیارد سال پیش، سطح اکسیژن بهطور گذرا به حدود ۴٪ از سطح کنونیِ اتمسفر (PAL) رسید.[۴۹] بهویژه، برخی شواهد به دست آمده از سازند گائویوژوانگ به یک افزایش اکسیژن در حدود ۱٫۵۷ میلیارد سال پیش اشاره دارند،[۵۰] در حالی که سازند ولکری در گروه روپر واقع در قلمرو شمالیِ کشور استرالیا،[۵۱] سازند کالتاسی (روسی: Калтасинская свита) در ولگا-اورالِ روسیه،[۴۳] و سازند شیامالینگ در بخش شمالیِ کراتون چین شمالی[۵۲][۵۳] گویای یک اکسیژنی شدنِ محسوس در حدود ۱٫۴ میلیارد سال پیش هستند، هرچند که مشخص نیست این نوسانات تا چه حد بازتابدهنده سطوح اکسیژنِ جهانی بودهاند.[۵۱] برآوردهای انجامشده از تجزیه و تحلیل گازها نشان میدهد که میزان اکسیژن موجود در جو حدود ۳٫۷٪ از مقادیر مدرنِ امروزی بوده است.[۵۴] شرایط اکسیژنی احتمالاً در زمان رویداد NOE حاکم شد که این تغییر باعث تکثیر و برتریِ فعالیت جانداران هوازی نسبت به جانداران بیهوازی گردید،[۳۵][۳۶][۴۴] اما شرایط گستردهیِ زیر-اکسیژنی و بیاکسیژنی احتمالاً تا حدود ۰٫۵۵ میلیارد سال پیش ادامه داشت که همزمان با ظهور زیواگان ادیاکاران و انفجار کامبرین است.[۵۵][۵۶]
گوگرد
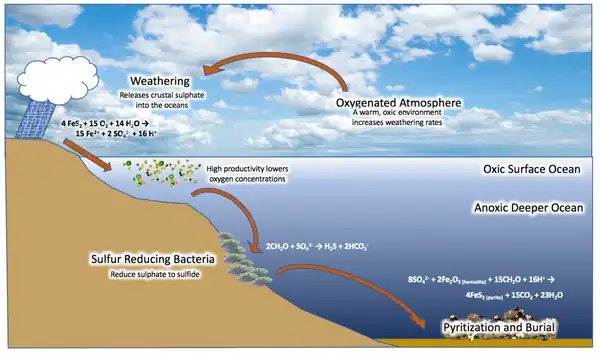
در سال ۱۹۹۸، زمینشناسی به نام دونالد کنفیلد فرضیهای را مطرح کرد که امروزه به عنوان فرضیه اقیانوس کنفیلد شناخته میشود.[۳۵] کنفیلد استدلال کرد که افزایشِ سطح اکسیژن در جو هنگامِ وقوعِ رویداد بزرگ اکسیژنی، باعث ایجاد واکنش و اکسید شدنِ ذخایر قارهای پیریت آهن (FeS2) شد که به عنوانِ یک محصول جانبی، سولفات (SO42−) تولید کرد و به داخل دریاها انتقال یافت.[۵۷] سپس باکتریهای کاهنده سولفات این ترکیبات را به سولفید هیدروژن (H2S) تبدیل کردند و در نتیجه اقیانوس به یک لایه سطحی که تا حدودی اکسیژندار بود، و یک لایه زیرینِ سولفیدی تقسیم شد؛ باکتریهای فتوسنتزکنندهی بیاکسیژنزا در مرزِ این دو لایه زندگی میکردند، H2S را متابولیزه کرده و گوگرد را به عنوان ماده زائد تولید میکردند. این فرایند شرایط یوکسینیکِ گستردهای را در آبهای میانی پدید آورد؛ یعنی یک وضعیت بیاکسیژنی با غلظت بالای گوگرد که به وسیله همین باکتریها حفظ میشد.[۵۸][۴۴][۳۷] بسیاری از رسوبات متعلق به میلیارد سال خستهکننده حاوی نسبتهای ایزوتوپی جیوهای هستند که مختصِ شرایط یوکسینیکِ منطقه نورگیرِ اقیانوس است.[۵۹] بررسیهای ژئوشیمیاییِ سیستماتیکتر درباره دوران مزوپروتروزوئیک میانی نشان میدهد که اقیانوسها بیشتر غنی از آهن بودهاند و تنها لایه نازکی از آبهای سطحی حاوی اکسیژنِ ضعیف بودهاند،[۶۰] و شرایط یوکسینیک احتمالاً تنها در نواحی نسبتاً کوچکی—شاید کمتر از ۷٪ از وسعت کف اقیانوسها—رخ میداده است.[۶۱] غلظتهای بسیار پایین مولیبدن در دوران مزوپروتروزوئیک را میتوان حتی با چنین وسعت پایینی از محیطهای یوکسینیک در بستر اقیانوسها توجیه نمود.[۳۶] گستره آبهای یوکسینیک به طور مداوم منبسط و منقبض میشدند، به طوری که گاهی به منطقه نورگیر میرسیدند و در مواقع دیگر به درونِ آبهای عمیقتر پسزده میشدند.[۶۲] شواهد به دست آمده از حوضه مکآرتور در شمال استرالیا نشان میدهد که محیطهای درونقارهای بهطور متناوب دارای مقادیر پایینی از سولفید بودهاند.[۶۳]
آهن
در میان سنگهایی که قدمتشان به میلیارد سال خستهکننده بازمیگردد، کمبود محسوسی از سازندهای آهن نواری به چشم میخورد. این سازندها به احتمال زیاد در اثر واکنشِ آهنِ موجود در ستونهای بالاییِ آب (که منبع آن اعماق اقیانوس بود) با اکسیژن، و تهنشین شدنِ متعاقبِ آن به وجود میآیند. به نظر میرسد تشکیل این سازندها در سراسر جهان از حدود ۱٫۸۵ میلیارد سال پیش متوقف شده باشد. کنفیلد استدلال کرد که وجودِ یونِ SO2–
4 اقیانوسی باعث احیای تمامِ آهنِ موجود در اعماقِ بیاکسیژنِ دریا شده است.[۳۵] این آهن میتوانست به دست باکتریهای بیاکسیژنزا متابولیزه شده باشد.[۶۴] همچنین پیشنهاد شده است که برخورد شهابسنگ در حوضه سادبری در حدود ۱٫۸۵ میلیارد سال پیش، به دلیل ایجادِ سونامیهای عظیم، برهمکنش میانِ آبِ بخارشدهی دریا با اتمسفر اکسیژندار، حفرهزایی اقیانوسی، و روانآبهای گستردهی ناشی از تخریب حاشیههای قارهای به درون دریا، باعثِ مخلوط شدنِ شدیدِ اقیانوسهای لایهبندیشدهی پیشین شد. آبهای عمیقِ زیر-اکسیژنیِ حاصل از این اختلاط (که ناشی از ترکیب شدن آب سطحیِ اکسیژندار با آبهای عمیقِ بیاکسیژن پیشین بود) آهنهای موجود در اعماق را اکسید کرده و مانع از انتقال و تهنشین شدن آنها در حاشیههای قارهای شدند.[۳۸]
با این وجود، آبهای غنی از آهن همچنان وجود داشتند، مانند سازند شیامالینگ با قدمت ۱٫۴ میلیارد سال در شمال چین، که احتمالاً از چاههای گرمابی واقع در اعماق آب تغذیه میشد. شرایط غنی از آهن در این منطقه همچنین نشاندهنده وجودِ آبهای کفِ بیاکسیژن (آنوکسیک) است، زیرا غلبه شرایطِ اکسیژنی میتوانست تمامی این آهنها را اکسید کند.[۶۴]
اشکال حیات
فراوانی اندک مواد مغذی ممکن است زمینهساز فتوسیمبیوز (photosymbiosis)—روابطی که در آن یک موجود زنده قادر به فتوسنتز است و موجود دیگر از مواد زائدِ آن تغذیه و متابولیسم میکند—در میان پروکاریوتها (باکتریها و آرکیا) و همچنین ظهور یوکاریوتها شده باشد. باکتریها، آرکیا و یوکاریوتها سه دامنه اصلی حیات هستند که بالاترین طبقهبندی آرایهشناختی محسوب میشوند. یوکاریوتها به وسیله داشتن یک هسته و اندامکهای متصل به غشا از پروکاریوتها متمایز میشوند، و تقریباً تمام موجوداتِ پرسلولی در دسته یوکاریوتها جای میگیرند.[۶۵]
پروکاریوتها

پروکاریوتها در سرتاسر میلیارد سال خستهکننده شکل غالبِ حیات به شمار میرفتند.[۱۱][۶۶][۳۵] ریزفسیلها (میکروفسیلها) حاکی از حضور سیانوباکتریها، باکتریهای گوگردی سبز و گوگردی ارغوانی، آرکیاهای تولیدکننده متان، باکتریهای متابولیزهکننده سولفات، آرکیاها یا باکتریهای متابولیزهکننده متان، باکتریهای متابولیزهکننده آهن، باکتریهای متابولیزهکننده نیتروژن (باکتریهای نیتراتزدا) و باکتریهای فتوسنتزکنندهی بیاکسیژنزا هستند.[۶۷]
تصور میشود که سیانوباکتریهای بیاکسیژنزا اصلیترین موجوداتِ فتوسنتزکننده در آن دوران بودهاند که از H2S فراوانِ موجود در اقیانوسها تغذیه میکردند. در آبهای غنی از آهن، سیانوباکتریها ممکن بود دچار مسمومیت با آهن شوند، بهویژه در آبهای دور از ساحل که آبهای عمیقِ غنی از آهن با آبهای سطحی ترکیب میشدند، و در نتیجه، عرصه رقابت را به باکتریهای دیگری واگذار میکردند که قادر به متابولیزه کردنِ همزمانِ آهن و H2S بودند. با این وجود، اثرات مسمومیتِ آهن میتوانست به واسطه آبهای غنی از سیلیس یا از طریق فرایند زیستکانیسازی آهن در درونِ خودِ سلول، کاهش یابد.[۶۷]
تبارهای پلانکتونیِ تکسلولیِ متعلق به سیانوباکتریها در اواسط دوران پیشینزیستی میانه در آبهای شیرین فرگشت یافتند و در طول دوران پیشینزیستی نو، اجدادِ ساکن در آبشیرین و همچنین اجدادِ کفزیِ دریایی، زمینهساز شکلگیری سیانوباکتریهای پلانکتونیِ دریایی (اعم از گونههای تثبیتکننده و غیرتثبیتکننده نیتروژن) شدند که این امر به اکسیژنی شدنِ اقیانوسهای دوران پرکامبرین کمک شایانی کرد.[۶۸][۶۹]
تحقیقات آزمایشگاهی بر روی سیانوباکتریها نشان داده است که آنزیم نیتروژناز، که وظیفه تثبیت نیتروژن اتمسفری را برعهده دارد، در زمانی که سطح اکسیژن بیش از ۱۰٪ از میزانِ فعلیِ جو باشد، متوقف شده و از کار میافتد. فقدان نیتروژن در اثرِ افزایش اکسیژن، به احتمال زیاد یک چرخه بازخورد منفی ایجاد کرد که در آن سطح اکسیژن اتمسفری در مرز ۲٪ تثبیت شد. این چرخه در حدود ۶۰۰ میلیون سال پیش، همگام با انتشارِ اکسیژن توسط گیاهان خشکیزی، شروع به تغییر کرد. تا ۴۰۸ میلیون سال پیش، سیانوباکتریهای تثبیتکننده نیتروژن، سلولهای ویژهای به نام هتروسیست را تکامل بخشیده بودند تا آنزیم نیتروژناز خود را از مواجهه با اکسیژن در امان نگه دارند.[۷۰][۷۱]
یوکاریوتها
یوکاریوتها احتمالاً در همان اوایلِ میلیارد سال خستهکننده ظهور پیدا کردند،[۱] که همزمان با شکلگیری و به هم پیوستنِ ابرقاره کلمبیا بود که به طریقی توانست سطوح اکسیژن اقیانوسی را افزایش دهد.[۱۳] اگرچه ادعاهایی مبنی بر وجود یوکاریوتها در اوایل ۲٫۱ میلیارد سال پیش مطرح شده است، اما این سوابق سوالبرانگیز تلقی میشوند. قدیمیترین و قطعیترین بقایای یوکاریوتی به حدود ۱٫۸ تا ۱٫۶ میلیارد سال پیش در چین بازمیگردد.[۷۲] در ادامه و پس از این زمان، فرگشت یوکاریوتها روندی بسیار کند داشت،[۱۱] که احتمالاً دلیل آن به شرایط یوکسینیکِ اقیانوس کنفیلد و فقدان فلزات و مواد مغذی کلیدی مرتبط است[۵][۱] که از فرگشتِ گونههای حیاتِ بزرگ، پیچیده و با نیازمندیهای بالای انرژی جلوگیری میکردند.[۲۶] شرایط یوکسینیک همچنین باعثِ کاهشِ انحلالپذیریِ آهن[۳۵] و مولیبدن میشد،[۷۳] که هر دو جزو فلزاتِ ضروری در فرایند تثبیت نیتروژن هستند. کمبودِ نیتروژنِ محلول، وضعیت رقابت را به نفع پروکاریوتها تغییر میداد، چراکه آنها قادر به متابولیزه کردن نیتروژنِ گازی بودند.[۷۴] یک فرضیه جایگزین برای توجیهِ عدم تنوعیابی در میان یوکاریوتها، این محدودیت را بیش از آنکه به گردنِ سطوح پایین اکسیژن بیندازد، به دماهای بالای زمین در طول میلیارد سال خستهکننده مرتبط میداند و استدلال میکند این واقعیت که رویدادهای اکسیژنیِ پیش از دورانِ اواخر نئوپروتروزوئیک نتوانستند موتور فرگشت یوکاریوتی را روشن کنند، نشان میدهد که اکسیژن عامل بازدارندهی اصلی در این مسیر نبوده است.[۷۵]
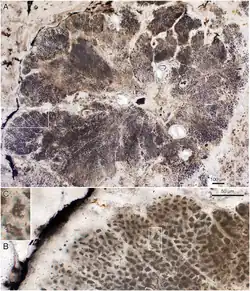
با این وجود، به نظر میرسد تنوعیابی و گسترش گروه تاجِ درشتاندامگانِ (ماکروارگانیسمهای) یوکاریوتی بین ۱٫۶ تا ۱ میلیارد سال پیش آغاز شده باشد که ظاهراً با افزایش غلظت مواد مغذی کلیدی همزمانی دارد.[۱] بر اساس تجزیه و تحلیل ساعت مولکولی، گیاهان در حدود ۱٫۶ میلیارد سال پیش از جانوران و قارچها منشعب شدند؛ جدا شدن شاخه جانوران و قارچها حدود ۱٫۵ میلیارد سال پیش رخ داد؛ اسفنجها در حدود ۱٫۳۵ میلیارد سال پیش از سایر جانوران جدا شدند؛[۷۷] پیدایش شاخه دوسوئیان و گزندهتباران (به ترتیب جانورانِ دارای تقارن دوجانبه و فاقد آن) در حدود ۱٫۳ میلیارد سال پیش اتفاق افتاد؛ و سرانجام، دوسوئیان و قارچهای چتری (دو بخش اصلی از زیرفرمانروی دوهستگان (Dikarya)) در ۰٫۹۷ میلیارد سال پیش پدیدار گشتند.[۷۷] البته نویسندگان این مقاله تصریح کردهاند که تخمینهای زمانیِ آنها با اجماع علمیِ رایج همخوانی ندارد.
فسیلهای بهدستآمده از اواخر دوران پالئوپروتروزوئیک و اوایل مزوپروتروزوئیک در حوضه رسوبی ویندیان واقع در هند،[۷۸] گروه رویانگ در شمال چین،[۷۹][۸۰][۸۱] و سازند کوتویکان در سپر آنابارِ سیبری،[۸۲] و مناطق دیگر، همگی حاکی از نرخ بالای تنوعیابیِ یوکاریوتها (بر اساس استانداردهای پیش از ادیاکاران) در بازه ۱٫۷ تا ۱٫۴ میلیارد سال پیش هستند،[۸۳] اگرچه بخش عمدهای از این تنوع متعلق به گونهها و کلادهای ناشناختهای از یوکاریوتهاست که امروزه منقرض شدهاند.[۸۲] قدیمیترین تشکهای (حصیرهای) جلبک قرمزِ شناختهشده به ۱٫۶ میلیارد سال پیش تعلق دارند.[۷۶] کهنترین قارچِ کشفشده به ۱٫۰۱–۰٫۸۹ میلیارد سال پیش در شمال کانادا بازمیگردد.[۸۴] تصور میشود یوکاریوتهای چندسلولی، که احتمالاً از بازماندگانِ تودههای کلونیمانندِ تکسلولی منشأ گرفتهاند، در بازه ۲ تا ۱٫۴ میلیارد سال پیش تکامل یافته باشند.[۸۵][۸۶] همچنین، احتمالاً یوکاریوتهای چندسلولیِ اولیه بیشتر در تشکهای استروماتولیت تجمع پیدا میکردند.[۱۳]
جلبک قرمز با نام علمی بانگیومورفا (Bangiomorpha) قدیمیترین شکل حیات شناختهشده با قابلیت تولید مثل جنسی و تقسیم میوز است،[۸۷] که تا ۱٫۰۴۷ میلیارد سال پیش فرگشت یافت.[۸۸] بر همین اساس، این سازگاریهای تکاملی میبایست بین ۲ تا ۱٫۴ میلیارد سال پیش پدید آمده باشند.[۱] از طرف دیگر، با توجه به اینکه فرایند میوز در همه یوکاریوتها با استفاده از پروتئینهای یکسانی انجام میشود، این ویژگیها ممکن است مدتها پیش از آخرین نیای مشترک یوکاریوتها شکل گرفته باشند؛ به طوری که زمان آغازین آنها شاید تا دوره فرضیِ دنیای آرانای به عقب بازگردد.[۸۹]
اندامکهای سلولی احتمالاً از سیانوباکتریهای آزاد-زی منشأ گرفتهاند (نظریه همزیستزایی)[۹۰][۹۱][۱] که این امر شاید پس از فرگشتِ فرایند فاگوسیتوز (بلعیدن سلولهای دیگر) و از بین رفتن دیواره سلولیِ سفت و سخت که تنها برای تولید مثل غیرجنسی ضروری بود، به وقوع پیوسته باشد.[۱۱] میتوکندریها پیش از این در زمان رویداد بزرگ اکسیژنی تکامل یافته بودند، اما تصور میشود که پیدایش پلاستیدهایی که در گیاهان اولیه (Archaeplastida) برای فتوسنتز استفاده میشدند، به حدود ۱٫۶ تا ۱٫۵ میلیارد سال پیش برگردد.[۷۷] هیستونها نیز به احتمال زیاد در طول میلیارد سال خستهکننده ظاهر شدند تا به سازماندهی و بستهبندیِ مقادیرِ رو به افزایشِ دیانای در سلولهای یوکاریوتی، و تبدیل آنها به نوکلئوزومها کمک کنند.[۱۱] هیدروژنوزومها که در فعالیتهای بیهوازی مورد استفاده قرار میگیرند، ممکن است در همین زمان از یکی از انواع آرکیاها منشأ گرفته باشند.[۹۲][۹۰]
با توجه به چنین نقاط عطفِ فرگشتی که به واسطه یوکاریوتها محقق گردید، این دوره زمانی را میتوان به عنوان یک پیشدرآمدِ مهم و ضروری برای انفجار کامبرین در حدود ۰٫۵۴ میلیارد سال پیش، و همچنین تکاملِ گونههای نسبتاً بزرگ و پیچیده حیات در نظر گرفت.[۱۱]
بومشناسی
به دلیلِ به حاشیه رانده شدنِ ذراتِ بزرگِ غذایی نظیر جلبکها، در مقابلِ برتری و غلبه سیانوباکتریها و پروکاریوتهایی که انرژی چندانی به سطوح غذایی (تروفیک)ِ بالاتر منتقل نمیکردند، به احتمال زیاد یک شبکه غذایی پیچیده نتوانست در این دوره شکل بگیرد و در نتیجه حیاتِ گونههای بزرگتر با نیازهای انرژیِ بالا مجالِ تکامل نیافتند. چنین شبکه غذاییِ سادهای احتمالاً تنها قادر بود تعدادِ اندکی از آغازیان را در جایگاهِ بهاصطلاح شکارچی رأس هرم غذایی پشتیبانی کند.[۶۶]
آکریتارکهای یوکاریوتی و فتوسنتزکنندهی اکسیژنساز (که احتمالاً نوعی ریزجلبک بودهاند) در آبهای سطحیِ دوران مزوپروتروزوئیک سکونت داشتند.[۹۳] محدودیت جمعیتیِ آنها احتمالاً بیشتر به دلیل محدودیتهای تغذیهای و دسترسی به مواد مغذی بوده است تا शिकार شدن؛ چرا که گزارش شده است برخی از گونههای آنها برای صدها میلیون سال دوام آوردهاند. اما پس از ۱ میلیارد سال پیش، مدت زمان بقای این گونهها به حدود ۱۰۰ میلیون سال کاهش یافت، که این امر ممکن است ناشی از افزایش گیاهخواری توسط آغازیانِ اولیه باشد. این شواهد با افتِ چشمگیرِ بقای گونهها به بازههای ۱۰ میلیون ساله—درست پس از انفجار کامبرین و گسترشِ ناگهانی حیوانات گیاهخوار—کاملاً مطابقت دارد.[۹۴]
غلظتهای نسبتاً پایین مولیبدن در اقیانوسها در طول میلیارد سال خستهکننده به عنوان یکی از عوامل بازدارندهی اصلی مطرح شده است که جمعیت میکروارگانیسمهای تثبیتکننده نیتروژن را در آبهای آزاد اقیانوسی پایین نگه میداشت (زیرا این موجودات برای تولید نیتروژنازها به مولیبدن نیاز دارند). با این حال، محیطهای آب شیرین و نواحی ساحلیِ نزدیک به رودخانهها که منابع غنی از مولیبدن محلول را فراهم میآوردند، احتمالاً همچنان میزبان جوامع قابلتوجهی از گونههای تثبیتکننده نیتروژن بودهاند. نرخ پایین تثبیت نیتروژن—که این روند تنها در دوران کریوژنین و با تکاملِ تثبیتکنندگان نیتروژنِ پلانکتونی دگرگون شد—بدین معنا بود که آمونیوم آزاد در سراسر این بازه زمانی مادهای بسیار کمیاب بوده و این معضل به شدت مسیر تکامل و تنوعبخشیِ زیواگانِ چندسلولی را محدود میکرده است.[۹۵]
حیات در خشکی
برخی از کهنترین شواهد مرتبط با استقرار پروکاریوتها در خشکی، به دورهای پیش از ۳ میلیارد سال پیش بازمیگردد،[۹۶] که این قدمت ممکن است حتی تا ۳٫۵ میلیارد سال پیش نیز عقب برود.[۹۷] در طول میلیارد سال خستهکننده، سطح خشکیها احتمالاً عمدتاً توسط تشکهای سیانوباکتریایی پوشیده شده بود.[۹۸][۹۹][۱۰۰][۱۰۱] گرد و غبار میتوانست حجم فراوانی از مواد مغذی و همچنین ابزاری برای جابهجایی و پراکنده شدنِ میکروبهای سطحزی فراهم کند، اگرچه جوامع میکروبی میتوانستند در غارها، دریاچهها و رودخانههای آب شیرین نیز شکل بگیرند.[۳۰][۱۰۲] تا ۱٫۲ میلیارد سال پیش، جوامع میکروبی ممکن است آنقدر فراوان شده باشند که روی فرایند هوازدگی، فرسایش، رسوبگذاری و چرخههای مختلف ژئوشیمیایی تأثیر گذاشته باشند،[۹۹] و گستردگی چشمگیر این تشکهای میکروبی نشاندهنده فراوانیِ پوسته زیستی خاک است.[۳۰]
قدیمیترین یوکاریوتهای خشکیزی ممکن است گلسنگهای قارچی در حدود ۱٫۳ میلیارد سال پیش بوده باشند،[۱۰۳] که از تشکهای میکروبی تغذیه میکردند.[۳۰] ریزفسیلهای فراوانِ یوکاریوتیِ به دست آمده از محیط آب شیرینِ گروه توریدون در اسکاتلند، حاکی از غلبه یوکاریوتها در زیستگاههای غیردریایی تا ۱ میلیارد سال پیش است،[۱۰۴] که این امر احتمالاً به دلیل افزایش دسترسی به مواد مغذی در مناطق نزدیکتر به قارهها و روانآبهای قارهای بوده است.[۳۴] این گلسنگها شاید بعدها به نحوی مسیر را برای استقرار گیاهان در خشکی، در ۰٫۷۵ میلیارد سال پیش هموار کرده باشند.[۱۰۳] به نظر میرسد افزایش عظیمی در زیستتوده (بیومس) فتوسنتزکنندهی زمینی در حدود ۰٫۸۵ میلیارد سال پیش رخ داده باشد؛ این موضوع با شواهدی از شارش وسیع کربن از منابع زمینی تایید میشود. این اتفاق احتمالاً سطح اکسیژن را به حدی افزایش داد که توانست گسترش گونههای یوکاریوتِ چندسلولی را در محیطهای خشکی پشتیبانی کند.[۱۰۵]
جستارهای وابسته
- پرکامبرین
- زیواگان ادیاکاران
- زیواگان فرانسویلین
- حوضه لآتالانت
- زمین گوی برفی
- رآکتورهای هستهای طبیعی در منطقهای که امروزه اوکلو در گابن نامیده میشود، در این دوره فعال بودند.
منابع
- 1 2 3 4 5 6 Mukherjee, I.; Large, R. R.; Corkrey, R.; Danyushevsky, L. V. (2018). "The Boring Billion, a slingshot for Complex Life on Earth". Scientific Reports. 8 (4432): 4432. Bibcode:2018NatSR...8.4432M. doi:10.1038/s41598-018-22695-x. PMC 5849639. PMID 29535324.
- ↑ Buick, R.; Des Marais, D. J.; Knoll, A. H. (1995). "Stable isotopic compositions of carbonates from the Mesoproterozoic Bangemall group, northwestern Australia". Chemical Geology. 123 (1–4): 153–171. Bibcode:1995ChGeo.123..153B. doi:10.1016/0009-2541(95)00049-R. PMID 11540130.
- ↑ Brasier, M. (2012). Secret Chambers: The Inside Story of Cells and Complex Life. Oxford University Press. p. 211. ISBN 978-0-19-964400-1.
- 1 2 3 Young, Grant M. (2013). "Precambrian supercontinents, glaciations, atmospheric oxygenation, metazoan evolution and an impact that may have changed the second half of Earth history". Geoscience Frontiers. 4 (3): 247–261. Bibcode:2013GeoFr...4..247Y. doi:10.1016/j.gsf.2012.07.003.
- 1 2 3 4 5 Cawood, Peter A.; Hawkesworth, Chris J. (1 June 2014). "Earth's middle age". Geology (in English). 42 (6): 503–506. Bibcode:2014Geo....42..503C. doi:10.1130/G35402.1. hdl:10023/4569. ISSN 0091-7613.
- ↑ Crockford, Peter W.; Sugiyama, Ichiko; Kipp, Michael A.; Hao, Jihua; Nelson, Lyle L.; Hemingway, Jordon D.; Wimmer, Sabine; Fakhraee, Mojtaba (2026-04-17). "Revisiting the greatness of Earth's great oxidation". Communications Earth & Environment (in English). 7 (1): 348. doi:10.1038/s43247-026-03518-8. ISSN 2662-4435.
- ↑ Crockford, Peter W.; Kunzmann, Marcus; Bekker, Andrey; Hayles, Justin; Bao, Huiming; Halverson, Galen P.; Peng, Yongbo; Bui, Thi H.; Cox, Grant M.; Gibson, Timothy M.; Wörndle, Sarah; Rainbird, Robert; Lepland, Aivo; Swanson-Hysell, Nicholas L.; Master, Sharad (2019-05-20). "Claypool continued: Extending the isotopic record of sedimentary sulfate". Chemical Geology. 513: 200–225. doi:10.1016/j.chemgeo.2019.02.030. ISSN 0009-2541.
- 1 2 Holland, Heinrich D. (2006-06-29). "The oxygenation of the atmosphere and oceans". Philosophical Transactions of the Royal Society of London B: Biological Sciences (in English). 361 (1470): 903–915. doi:10.1098/rstb.2006.1838. ISSN 0962-8436. PMC 1578726. PMID 16754606.
- 1 2 Peng, L.; Yonggang, L.; Yongyun, H.; Yun, Y.; Pisarevsky, S. A. (2019). "Warm Climate in the "Boring Billion" Era". Acta Geologica Sinica. 93 (S3): 40–43. Bibcode:2019AcGlS..93R..40L. doi:10.1111/1755-6724.14239.
- 1 2 3 4 Roberts, N. M. W. (2013). "The boring billion? – Lid tectonics, continental growth and environmental change associated with the Columbia supercontinent". Geoscience Frontiers. Thematic Section: Antarctica – A window to the far off land. 4 (6): 681–691. Bibcode:2013GeoFr...4..681R. doi:10.1016/j.gsf.2013.05.004.
- 1 2 3 4 5 6 Lenton, T.; Watson, A. (2011). "The not-so-boring billion". Revolutions that made the Earth. pp. 242–261. doi:10.1093/acprof:oso/9780199587049.003.0013. ISBN 978-0-19-958704-9.
- ↑ Planavsky, Noah J.; Cole, Devon B.; Isson, Terry T.; Reinhard, Christopher T.; Crockford, Peter W.; Sheldon, Nathan D.; Lyons, Timothy W. (9 August 2018). "A case for low atmospheric oxygen levels during Earth's middle history". Emerging Topics in Life Sciences. 2 (2): 149–159. doi:10.1042/etls20170161. ISSN 2397-8554. PMID 32412619. S2CID 210099422.
- 1 2 3 Brooke, J. L. (2014). Climate Change and the Course of Global History: A Rough Journey. Cambridge University Press. pp. 40–42. ISBN 978-0-521-87164-8.
- 1 2 Evans, D. A. D. (2013). "Reconstructing pre-Pangean supercontinents". Geological Society of America Bulletin. 125 (11–12): 1735–1751. Bibcode:2013GSAB..125.1735E. doi:10.1130/b30950.1.
- ↑ Bradley, Dwight C. (2008-12-01). "Passive margins through earth history". Earth-Science Reviews. 91 (1–4): 1–26. Bibcode:2008ESRv...91....1B. doi:10.1016/j.earscirev.2008.08.001.
- ↑ Gorczyk, W.; Smithies, H.; Korhonen, F.; Howard, H.; de Gromard, R. Q. (2015). "Ultra-hot Mesoproterozoic evolution of intracontinental central Australia". Geoscience Frontiers. 6 (1): 23–37. Bibcode:2015GeoFr...6...23G. doi:10.1016/j.gsf.2014.03.001.
- ↑ Bryan, S. E.; Ferrari, L. (2013). "Large igneous provinces and silicic large igneous provinces: Progress in our understanding over the last 25 years". GSA Bulletin. 125 (7–8): 1055. Bibcode:2013GSAB..125.1053B. doi:10.1130/B30820.1.
- ↑ Tollo, R. P.; Corriveau, L.; McLelland, J.; Bartholomew, M. J. (2004). "Proterozoic tectonic evolution of the Grenville orogen in North America: An introduction". In Tollo, R. P.; Corriveau, L.; McLelland, J.; Bartholomew, M. J. (eds.). Proterozoic tectonic evolution of the Grenville orogen in North America. Geological Society of America Memoir. Vol. 197. pp. 1–18. ISBN 978-0-8137-1197-3.
- ↑ Brasier, M.D. (1998). "A billion years of environmental stability and the emergence of eukaryotes: New data from northern Australia". Geology. 26 (6): 555–558. Bibcode:1998Geo....26..555B. doi:10.1130/0091-7613(1998)026<0555:ABYOES>2.3.CO;2. PMID 11541449.
- 1 2 3 Fiorella, R.; Sheldon, N. (2017). "Equable end Mesoproterozoic climate in the absence of high CO2". Geology. 45 (3): 231–234. Bibcode:2017Geo....45..231F. doi:10.1130/G38682.1.
- 1 2 3 4 Veizer, J. (2005). "Celestial Climate Driver: A Perspective from Four Billion Years of the Carbon Cycle". Geoscience Canada. 32 (1). ISSN 1911-4850.
- 1 2 Kah, L. C.; Riding, R. (2007). "Mesoproterozoic carbon dioxide levels inferred from calcified cyanobacteria". Geology. 35 (9): 799–802. Bibcode:2007Geo....35..799K. doi:10.1130/G23680A.1. S2CID 129389459.
- ↑ Hartley, A.; Kurjanski, B.; Pugsley, J.; Armstrong, J. (2020). "Ice-rafting in lakes in the early Neoproterozoic: dropstones in the Diabaig Formation, Torridon Group, NW Scotland". Scottish Journal of Geology. 56 (1): 47–53. Bibcode:2020ScJG...56...47H. doi:10.1144/sjg2019-017. hdl:2164/15493. S2CID 214436923.
- ↑ Hren, M. T.; Sheldon, N. D. (2020). "Terrestrial microbialites provide constraints on the mesoproterozoic atmosphere". The Depositional Record. 6 (1): 4–20. Bibcode:2020DepRe...6....4H. doi:10.1002/dep2.79. hdl:2027.42/154283.
- ↑ Shaviv, Nir J. (2003). "The spiral structure of the Milky Way, cosmic rays, and ice age epochs on Earth". New Astronomy. 8 (1): 39–77. arXiv:astro-ph/0209252. Bibcode:2003NewA....8...39S. doi:10.1016/S1384-1076(02)00193-8. S2CID 879406.
- 1 2 Planavsky, Noah J.; Reinhard, Christopher T.; Wang, Xiangli; Thomson, Danielle; McGoldrick, Peter; Rainbird, Robert H.; Johnson, Thomas; Fischer, Woodward W.; Lyons, Timothy W. (31 اکتبر 2014). "Low Mid-Proterozoic atmospheric oxygen levels and the delayed rise of animals" (PDF). Science (in English). 346 (6209): 635–638. Bibcode:2014Sci...346..635P. doi:10.1126/science.1258410. ISSN 0036-8075. PMID 25359975. S2CID 37395258.
- ↑ Eyles, N. (2008). "Glacio-epochs and the supercontinent cycle after ~ 3.0 Ga: Tectonic boundary conditions for glaciation". Palaeogeography, Palaeoclimatology, Palaeoecology. 258 (1–2): 89–129. Bibcode:2008PPP...258...89E. doi:10.1016/j.palaeo.2007.09.021.
- ↑ Kasting, J. F.; Ono, S. (2006). "Palaeoclimates: the first two billion years". Philosophical Transactions of the Royal Society of London B: Biological Sciences. 361 (1470): 917–929. doi:10.1098/rstb.2006.1839. ISSN 0962-8436. PMC 1868609. PMID 16754607.
- ↑ Catling, D. C.; Kasting, J. F. (2017). Atmospheric Evolution on Inhabited and Lifeless Worlds. Cambridge University Press. p. 291. ISBN 978-1-316-82452-8.
- 1 2 3 4 Beraldi-Campesi, H. (2013). "Early life on land and the first terrestrial ecosystems". Ecological Processes. 2 (1): 1–17. Bibcode:2013EcoPr...2....1B. doi:10.1186/2192-1709-2-1.
- ↑ Anbar, A. D.; Knoll, A. H. (2002). "Proterozoic Ocean Chemistry and Evolution: A Bioinorganic Bridge?". Science. 297 (5584): 1137–1142. Bibcode:2002Sci...297.1137A. CiteSeerX 10.1.1.615.3041. doi:10.1126/science.1069651. ISSN 0036-8075. PMID 12183619. S2CID 5578019.
- ↑ Fennel, K.; Follows, M; Falkowski, P. G. (2005). "The co-evolution of the nitrogen, carbon and oxygen cycles in the Proterozoic ocean". American Journal of Science. 305 (6–8): 526–545. Bibcode:2005AmJS..305..526F. doi:10.2475/ajs.305.6-8.526. ISSN 0002-9599.
- ↑ Kipp, M. A.; Stüeken, E. E. (2017). "Biomass recycling and Earth's early phosphorus cycle". Science Advances. 3 (11) eaao4795. Bibcode:2017SciA....3O4795K. doi:10.1126/sciadv.aao4795. PMC 5706743. PMID 29202032.
- 1 2 Parnell, J.; Sprinks, S.; Andrews, S.; Thayalan, W.; Bowden, S. (2015). "High Molybdenum availability for evolution in a Mesoproterozoic lacustrine environment". Nature Communications. 6 (6996): 6996. Bibcode:2015NatCo...6.6996P. doi:10.1038/ncomms7996. hdl:2164/5221. PMID 25988499.
- 1 2 3 4 5 6 7 Canfield, D. E. (1998). "A new model for Proterozoic ocean chemistry". Nature. 396 (6710): 450–453. Bibcode:1998Natur.396..450C. doi:10.1038/24839. ISSN 0028-0836. S2CID 4414140.
- 1 2 3 4 5 6 Lyons, Timothy W.; Reinhard, Christopher T.; Planavsky, Noah J. (2014). "The rise of oxygen in Earth's early ocean and atmosphere". Nature. 506 (7488): 307–315. Bibcode:2014Natur.506..307L. doi:10.1038/nature13068. PMID 24553238. S2CID 4443958.
- 1 2 3 4 Large, R.; Halpin, J. A.; Danyushevsky, L. V. (2014). "Trace element content of sedimentary pyrite as a new proxy for deep-time ocean–atmosphere evolution". Earth and Planetary Science Letters. 389: 209–220. Bibcode:2014E&PSL.389..209L. doi:10.1016/j.epsl.2013.12.020.
- 1 2 3 Slack, J. F.; Cannon, W. F. (2009). "Extraterrestrial demise of banded iron formations 1.85 billion years ago". Geology. 37 (11): 1011–1014. Bibcode:2009Geo....37.1011S. doi:10.1130/G30259A.1.
- 1 2 De Baar, H. J. W.; German, C. R.; Elderfield, H; van Gaans, P. (1988). "Rare earth element distributions in anoxic waters of the Cariaco Trench". Geochimica et Cosmochimica Acta. 52 (5): 1203–1219. Bibcode:1988GeCoA..52.1203D. doi:10.1016/0016-7037(88)90275-X.
- ↑ Gallardo, V. A.; Espinoza, C. (2008). "The evolution of ocean color". In Hoover, Richard B; Levin, Gilbert V; Rozanov, Alexei Y; Davies, Paul C (eds.). Instruments, Methods, and Missions for Astrobiology XI (PDF). Proceedings of the SPIE. Vol. 7097. pp. 1–7. Bibcode:2008SPIE.7097E..0GG. doi:10.1117/12.794742. S2CID 53984439. Archived from the original on 2017-08-09. Retrieved 2019-12-03.
- 1 2 Qiu, Jane (2014). "Oxygen fluctuations stalled life on Earth". Nature. doi:10.1038/nature.2014.15529. S2CID 131404410. Retrieved 24 فوریه 2017.
- ↑ Crockford, Peter W.; Sugiyama, Ichiko; Kipp, Michael A.; Hao, Jihua; Nelson, Lyle L.; Hemingway, Jordon D.; Wimmer, Sabine; Fakhraee, Mojtaba (2026-04-17). "Revisiting the greatness of Earth's great oxidation". Communications Earth & Environment (in English). 7 (1): 348. doi:10.1038/s43247-026-03518-8. ISSN 2662-4435.
- 1 2 Doyle, Katherine A.; Poulton, Simon W.; Newton, Robert J.; Podkovyrov, Victor N.; Bekker, Andrey (October 2018). "Shallow water anoxia in the Mesoproterozoic ocean: Evidence from the Bashkir Meganticlinorium, Southern Urals". Precambrian Research. 317: 196–210. Bibcode:2018PreR..317..196D. doi:10.1016/j.precamres.2018.09.001. S2CID 134378820. Retrieved 17 December 2022.
- 1 2 3 Johnston, D. T. (2009). "Anoxygenic photosynthesis modulated Proterozoic oxygen and sustained Earth's middle age". Proceedings of the National Academy of Sciences of the United States of America. 106 (40): 16925–16929. Bibcode:2009PNAS..10616925J. doi:10.1073/pnas.0909248106. PMC 2753640. PMID 19805080.
- ↑ Partin, C. A.; Bekker, A.; Planavsky, N. J.; Scott, C. T.; Gill, B. C.; Li, C.; Podkovyrov, V.; Maslov, A.; Konhauser, K. O. (1 مه 2013). "Large-scale fluctuations in Precambrian atmospheric and oceanic oxygen levels from the record of U in shales". Earth and Planetary Science Letters. 369–370: 284–293. Bibcode:2013E&PSL.369..284P. doi:10.1016/j.epsl.2013.03.031.
- ↑ Bekker, A.; Holland, H. D. (1 فوریه 2012). "Oxygen overshoot and recovery during the early Paleoproterozoic". Earth and Planetary Science Letters. 317–318: 295–304. Bibcode:2012E&PSL.317..295B. doi:10.1016/j.epsl.2011.12.012.
- ↑ Schröder, S.; Bekker, A.; Beukes, N. J.; Strauss, H.; Van Niekerk, H. S. (1 آوریل 2008). "Rise in seawater sulphate concentration associated with the Paleoproterozoic positive carbon isotope excursion: evidence from sulphate evaporites in the ~2.2–2.1 Gyr shallow-marine Lucknow Formation, South Africa". Terra Nova (in English). 20 (2): 108–117. Bibcode:2008TeNov..20..108S. doi:10.1111/j.1365-3121.2008.00795.x. ISSN 1365-3121.
- ↑ Hardisty, Dalton S.; Lu, Zunli; Bekker, Andrey; Diamond, Charles W.; Gill, Benjamin C.; Jiang, Ganqing; Kah, Linda C.; Knoll, Andrew H.; Lloyd, Sean J.; Osburn, Magdalena R.; Planavsky, Noah J.; Wang, Chunjiang; Zhou, Xiaoli; Lyons, Timothy W. (1 April 2017). "Perspectives on Proterozoic surface ocean redox from iodine contents in ancient and recent carbonate". Earth and Planetary Science Letters. 463: 159–170. Bibcode:2017E&PSL.463..159H. doi:10.1016/j.epsl.2017.01.032. hdl:1912/8872. S2CID 13136821.
- ↑ Zhang, Shuichang; Wang, Huajian; Wang, Xiaomei; Ye, Yuntao (25 October 2021). "The Mesoproterozoic Oxygenation Event". Science China Earth Sciences. 64 (12): 2043–2068. Bibcode:2021ScChD..64.2043Z. doi:10.1007/s11430-020-9825-x. S2CID 239891560. Retrieved 9 May 2023.
- ↑ Ye, Yuntao; Wang, Huajian; Wang, Xiaomei; Li, Jie; Wu, Chaodong; Zhang, Shuichang (1 May 2023). "Regional and global proxies for varying ocean redox conditions at ∼1.57 Ga: A causal connection with volcanism-induced weathering". Geosystems and Geoenvironment. 2 (2) 100173. Bibcode:2023GsGe....200173Y. doi:10.1016/j.geogeo.2022.100173. ISSN 2772-8838.
- 1 2 Mukherjee, Indrani; Large, Ross R. (August 2016). "Pyrite trace element chemistry of the Velkerri Formation, Roper Group, McArthur Basin: Evidence for atmospheric oxygenation during the Boring Billion". Precambrian Research. 281: 13–26. Bibcode:2016PreR..281...13M. doi:10.1016/j.precamres.2016.05.003. Retrieved 8 November 2022.
- ↑ He, Yuting; Zhu, Xiyan; Qiu, Yifan; Pang, Lanyin; Zhao, Taiping (December 2022). "Extreme climate changes influenced early life evolution at ~ 1.4 Ga: Implications from shales of the Xiamaling Formation, northern North China Craton". Precambrian Research. 383 106901. Bibcode:2022PreR..38306901H. doi:10.1016/j.precamres.2022.106901. S2CID 253787177. Retrieved 17 December 2022.
- ↑ Liu, Anqi; Tang, Dongjie; Shi, Xiaoying; Zhou, Xiqiang; Zhou, Limin; Shang, Mohan; Li, Yang; Fang, Hao (1 June 2020). "Mesoproterozoic oxygenated deep seawater recorded by early diagenetic carbonate concretions from the Member IV of the Xiamaling Formation, North China". Precambrian Research. 341 105667. Bibcode:2020PreR..34105667L. doi:10.1016/j.precamres.2020.105667. ISSN 0301-9268. S2CID 212948463. Retrieved 11 September 2023.
- ↑ Breathing life into the boring billion: Direct constraints from 1.4 Ga fluid inclusions reveal a fair climate and oxygenated atmosphere
- ↑ Kah, L. C.; Lyons, T. W.; Frank, T. D. (2004). "Low marine sulphate and protracted oxygenation of the Proterozoic biosphere". Nature. 438 (7010): 834–838. Bibcode:2004Natur.431..834K. doi:10.1038/nature02974. PMID 15483609. S2CID 4404486.
- ↑ Och, L. M.; Shields-Zhou, G. A. (2012). "The Neoproterozoic oxygenation event: Environmental perturbations and biogeochemical cycling". Earth-Science Reviews. 110 (1–4): 26–57. Bibcode:2012ESRv..110...26O. doi:10.1016/j.earscirev.2011.09.004.
- ↑ Lyons, Timothy W.; Reinhard, Christopher T. (2009). "An early productive ocean unfit for aerobics". Proceedings of the National Academy of Sciences of the United States of America. 106 (43): 18045–18046. Bibcode:2009PNAS..10618045L. doi:10.1073/pnas.0910345106. ISSN 0027-8424. PMC 2775325. PMID 19846788.
- ↑ Boenigk, J.; Wodniok, S.; Glücksman, E. (2015). Biodiversity and Earth History. Springer. pp. 58–59. ISBN 978-3-662-46394-9.
- ↑ Zheng, Wang; Gilleaudeau, Geoffrey J.; Kah, Linda C.; Anbar, Ariel D. (16 October 2018). "Mercury isotope signatures record photic zone euxinia in the Mesoproterozoic ocean". Proceedings of the National Academy of Sciences of the United States of America (in English). 115 (42): 10594–10599. Bibcode:2018PNAS..11510594Z. doi:10.1073/pnas.1721733115. ISSN 0027-8424. PMC 6196510. PMID 30275325.
- ↑ Planavsky, Noah J.; McGoldrick, Peter; Scott, Clinton T.; Li, Chao; Reinhard, Christopher T.; Kelly, Amy E.; Chu, Xuelei; Bekker, Andrey; Love, Gordon D.; Lyons, Timothy W. (September 2011). "Widespread iron-rich conditions in the mid-Proterozoic ocean". Nature (in English). 477 (7365): 448–451. Bibcode:2011Natur.477..448P. doi:10.1038/nature10327. ISSN 1476-4687. PMID 21900895. S2CID 205225926.
- ↑ Gilleaudeau, Geoffrey J.; Romaniello, Stephen J.; Luo, Genming; Kaufman, Alan J.; Zhang, Feifei; Klaebe, Robert M.; Kah, Linda C.; Azmy, Karem; Bartley, Julie K.; Zheng, Wang; Knoll, Andrew H.; Anbar, Ariel D. (2019-09-01). "Uranium isotope evidence for limited euxinia in mid-Proterozoic oceans". Earth and Planetary Science Letters (in English). 521: 150–157. Bibcode:2019E&PSL.521..150G. doi:10.1016/j.epsl.2019.06.012. ISSN 0012-821X. S2CID 198401867.
- ↑ Wu, Yaowei; Tian, Hui; Yin, Runsheng; Chen, Di; Grasby, Stephen E.; Shen, Jun; Li, Tengfei; Ji, Sui; Peng, Ping'an (15 August 2023). "Highly fractionated Hg isotope evidence for dynamic euxinia in shallow waters of the Mesoproterozoic ocean". Earth and Planetary Science Letters. 616 118211. Bibcode:2023E&PSL.61618211W. doi:10.1016/j.epsl.2023.118211. S2CID 259004695. Retrieved 3 July 2023.
- ↑ Spinks, Samuel C.; Schmid, Susanne; Pagès, Anais (December 2016). "Delayed euxinia in Paleoproterozoic intracontinental seas: Vital havens for the evolution of eukaryotes?". Precambrian Research (in English). 287: 108–114. Bibcode:2016PreR..287..108S. doi:10.1016/j.precamres.2016.11.002. Retrieved 19 May 2024 – via Elsevier Science Direct.
- 1 2 Canfield, D. E.; Zhang, S.; Wang, H.; Wang, X.; Zhao, W.; Su, J.; Bjerrum, C. J.; Haxen, E. R.; Hammarlund, E. U. (2018). "A Mesoproterozoic iron formation". Proceedings of the National Academy of Sciences. 115 (17): 3895–3904. Bibcode:2018PNAS..115E3895C. doi:10.1073/pnas.1720529115. PMC 5924912. PMID 29632173.
- ↑ Brasier, M. D.; Lindsay, J. F. (1998). "A billion years of environmental stability and the emergence of eukaryotes: new data from northern Australia". Geology. 26 (6): 555–558. Bibcode:1998Geo....26..555B. doi:10.1130/0091-7613(1998)026<0555:ABYOES>2.3.CO;2. PMID 11541449.
- 1 2 Gueneli, N.; McKenna, A. M.; Ohkouchi, N.; Boreham, C. J.; Beghin, J.; Javaux, E. J.; Brocks, J. J. (2018). "1.1-billion-year-old porphyrins establish a marine ecosystem dominated by bacterial primary producers". Proceedings of the National Academy of Sciences. 115 (30): 6978–6986. Bibcode:2018PNAS..115E6978G. doi:10.1073/pnas.1803866115. PMC 6064987. PMID 29987033.
- 1 2 Javaux, E. J.; Lepot, K. (2018). "The Paleoproterozoic fossil record: Implications for the evolution of the biosphere during Earth's middle-age". Earth-Science Reviews. 176: 68–86. Bibcode:2018ESRv..176...68J. doi:10.1016/j.earscirev.2017.10.001. hdl:20.500.12210/62416.
- ↑ Sánchez-Baracaldo, P. (2015). "Origin of marine planktonic cyanobacteria". Scientific Reports. 5 17418. Bibcode:2015NatSR...517418S. doi:10.1038/srep17418. PMC 4665016. PMID 26621203.
- ↑ Schirrmeister, Bettina E.; Sanchez-Baracaldo, Patricia; Wacey, David (2016). "Cyanobacterial evolution during the Precambrian". International Journal of Astrobiology (in English). 15 (3): 187–204. Bibcode:2016IJAsB..15..187S. doi:10.1017/S1473550415000579. hdl:1983/c2004035-45db-4e13-a7cb-66287018c588.
- ↑ Early life on Earth limited by enzyme | UCL News
- ↑ Allen, John F.; Thake, Brenda; Martin, William F. (2019). "Nitrogenase Inhibition Limited Oxygenation of Earth's Proterozoic Atmosphere". Trends in Plant Science (in English). 24 (11): 1022–1031. Bibcode:2019TPS....24.1022A. doi:10.1016/j.tplants.2019.07.007. PMID 31447302.
- ↑ Fakhraee, Mojtaba; Tarhan, Lidya G.; Reinhard, Christopher T.; Crowe, Sean A.; Lyons, Timothy W.; Planavsky, Noah J. (May 2023). "Earth's surface oxygenation and the rise of eukaryotic life: Relationships to the Lomagundi positive carbon isotope excursion revisited". Earth-Science Reviews (in English). 240 104398. Bibcode:2023ESRv..24004398F. doi:10.1016/j.earscirev.2023.104398. S2CID 257761993.
- ↑ Reinhard, C. T.; Planavsky, N. J.; Robbins, L. J.; Partin, C. A.; Gill, B. C.; Lalonde, S. V.; Bekker, A.; Konhauser, K. O.; Lyons, T. W. (2013). "Proterozoic ocean redox and biogeochemical stasis". Proceedings of the National Academy of Sciences. 110 (14): 5357–5362. Bibcode:2013PNAS..110.5357R. doi:10.1073/pnas.1208622110. ISSN 0027-8424. PMC 3619314. PMID 23515332.
- ↑ Anbar, A. D. (2002). "Proterozoic ocean chemistry and evolution: a bioinorganic bridge". Science. 297 (5584): 1137–1142. Bibcode:2002Sci...297.1137A. doi:10.1126/science.1069651. PMID 12183619. S2CID 5578019.
- ↑ Zhang, Fenglian; Wang, Huaijan; Ye, Yuntao; Liu, Yuke; Lyu, Yitong; Deng, Yan; Lyu, Dan; Wang, Xiaomei; Wu, Huaichun; Deng, Shenghui; Zhang, Shuichang (15 August 2022). "Did high temperature rather than low O2 hinder the evolution of eukaryotes in the Precambrian?". Precambrian Research. 378 106755. Bibcode:2022PreR..37806755Z. doi:10.1016/j.precamres.2022.106755. S2CID 249584466. Retrieved 29 April 2023.
- 1 2 Bengtson, S.; Sallstedt, T.; Belivanova, V.; Whitehouse, M. (2017). "Three-dimensional preservation of cellular and subcellular structures suggests 1.6 billion-year-old crown-group red algae". PLOS Biology. 15 (3) e2000735. doi:10.1371/journal.pbio.2000735. PMC 5349422. PMID 28291791.
- 1 2 3 Hedges, S. B.; Blair, J. E.; Venturi, M. L.; Shoe, J. L. (2004). "A molecular timescale of eukaryote evolution and the rise of complex multicellular life". BMC Evolutionary Biology. 4 (2): 2. doi:10.1186/1471-2148-4-2. PMC 341452. PMID 15005799.
- ↑ Bengtson, S.; Belivanova, V.; Rasmussen, B.; Whitehouse, M. (2009). "The controversial "Cambrian" fossils of the Vindhyan are real but more than a billion years older". Proceedings of the National Academy of Sciences of the United States of America. 106 (19): 7729–7734. Bibcode:2009PNAS..106.7729B. doi:10.1073/pnas.0812460106. PMC 2683128. PMID 19416859.
- ↑ Leiming, Yin; Bian, Lizeng; Xunlai, Yuan (October 2004). "Discovery of branched tubular algae and microscopic tubes with annular-helical thickening from the Mesoproterozoic Ruyang Group of Shanxi, North China". Science China Earth Sciences. 47 (10): 880–885. doi:10.1360/02yd0356. S2CID 129336775. Retrieved 13 October 2022.
- ↑ Pang, Ke; Tang, Qing; Yuan, Xun-Lai; Wan, Bin; Xiao, Shuhai (September 2015). "A biomechanical analysis of the early eukaryotic fossil Valeria and new occurrence of organic-walled microfossils from the Paleo-Mesoproterozoic Ruyang Group". Palaeoworld. 24 (3): 251–262. doi:10.1016/j.palwor.2015.04.002.
- ↑ Leiming, Yin; Xunlai, Yuan; Fanwei, Meng; Jie, Hu (7 November 2005). "Protists of the Upper Mesoproterozoic Ruyang Group in Shanxi Province, China". Precambrian Research. 141 (1–2): 49–66. Bibcode:2005PreR..141...49L. doi:10.1016/j.precamres.2005.08.001. Retrieved 13 October 2022.
- 1 2 Vorob'eva, Natalya G.; Sergeev, Vladimir N.; Petrov, Peter Y. (January 2015). "Kotuikan Formation assemblage: A diverse organic-walled microbiota in the Mesoproterozoic Anabar succession, northern Siberia". Precambrian Research. 256: 201–222. Bibcode:2015PreR..256..201V. doi:10.1016/j.precamres.2014.11.011. Retrieved 15 October 2022.
- ↑ Agić, Heda; Moczydłowska, Małgorzata; Yin, Leiming (August 2017). "Diversity of organic-walled microfossils from the early Mesoproterozoic Ruyang Group, North China Craton – A window into the early eukaryote evolution". Precambrian Research. 297: 101–130. Bibcode:2017PreR..297..101A. doi:10.1016/j.precamres.2017.04.042. Retrieved 13 October 2022.
- ↑ Loron, C. C.; François, C.; Rainbird, R. H.; Turner, E. C.; Borensztajn, S.; Javaux, E. J. (2019). "Early fungi from the Proterozoic era in Arctic Canada". Nature. 70 (7760): 232–235. Bibcode:2019Natur.570..232L. doi:10.1038/s41586-019-1217-0. PMID 31118507. S2CID 162180486.
- ↑ Cooper, G. M. (2000). "The Origin and Evolution of Cells". The Cell: A Molecular Approach (2nd ed.). Sinauer Associates.
- ↑ Niklas, K. J. (2014). "The evolutionary-developmental origins of multicellularity". American Journal of Botany. 101 (1): 6–25. doi:10.3732/ajb.1300314. PMID 24363320.
- ↑ Bernstein, H.; Bernstein, C.; Michod, R. E. (2012). "DNA Repair as the Primary Adaptive Function of Sex in Bacteria and Eukaryotes". In Kimura, S.; Shimizu, S. (eds.). DNA Repair: New Research. Nova Biomedical. pp. 1–49. ISBN 978-1-62100-756-2. Archived from the original on 29 اکتبر 2013.
- ↑ Gibson, Timothy M.; Shih, Patrick M.; Cumming, Vivien M.; Fischer, Woodward W.; Crockford, Peter W.; Hodgskiss, Malcolm S.W.; Wörndle, Sarah; Creaser, Robert A.; Rainbird, Robert H.; Skulski, Thomas M.; Halverson, Galen P. (2017-12-08). "Precise age of Bangiomorpha pubescens dates the origin of eukaryotic photosynthesis". Geology. 46 (2): 135–138. doi:10.1130/g39829.1. ISSN 0091-7613.
- ↑ Egel, R.; Penny, D. (2007). "On the Origin of Meiosis in Eukaryotic Evolution: Coevolution of Meiosis and Mitosis from Feeble Beginnings". Genome Dynamics and Stability. 3 (249–288): 249–288. doi:10.1007/7050_2007_036. ISBN 978-3-540-68983-6.
- 1 2 Martin, W.; Müller, M. (1998). "The hydrogen hypothesis for the first eukaryote". Nature. 392 (6671): 37–41. Bibcode:1998Natur.392...37M. doi:10.1038/32096. ISSN 0028-0836. PMID 9510246. S2CID 338885.
- ↑ Timmis, J. N.; Ayliffe, Michael A.; Huang, C. Y.; Martin, W. (2004). "Endosymbiotic gene transfer: organelle genomes forge eukaryotic chromosomes". Nature Reviews Genetics. 5 (2): 123–135. doi:10.1038/nrg1271. PMID 14735123. S2CID 2385111.
- ↑ Mentel, Marek; Martin, William (27 اوت 2008). "Energy metabolism among eukaryotic anaerobes in light of Proterozoic ocean chemistry". Philosophical Transactions of the Royal Society of London B: Biological Sciences (in English). 363 (1504): 2717–2729. doi:10.1098/rstb.2008.0031. ISSN 0962-8436. PMC 2606767. PMID 18468979.
- ↑ Moczydlowska, M.; Landing, E.; Zang, W.; Palacios, T. (2011). "Proterozoic phytoplankton and timing of Chlorophyte algae origins". Palaeontology. 54 (4): 721–733. Bibcode:2011Palgy..54..721M. doi:10.1111/j.1475-4983.2011.01054.x.
- ↑ Stanley, S. M. (2008). "Predation defeats competition on the seafloor". Paleobiology. 31 (1): 12. Bibcode:2008Pbio...34....1S. doi:10.1666/07026.1. S2CID 83713101.
- ↑ Sánchez-Baracaldo, Patricia; Ridgwell, Andy; Raven, John A. (17 March 2014). "A Neoproterozoic Transition in the Marine Nitrogen Cycle". Current Biology. 24 (6): 652–657. Bibcode:2014CBio...24..652S. doi:10.1016/j.cub.2014.01.041. PMID 24583016. S2CID 16756351.
- ↑ Homann, M.; et al. (2018). "Microbial life and biogeochemical cycling on land 3,220 million years ago" (PDF). Nature Geoscience. 11 (9): 665–671. Bibcode:2018NatGe..11..665H. doi:10.1038/s41561-018-0190-9. S2CID 134935568.
- ↑ Baumgartner, R. J.; van Kranendonk, M. J.; et al. (2019). "Nano−porous pyrite and organic matter in 3.5-billion-year-old stromatolites record primordial life" (PDF). Geology. 47 (11): 1039–1043. Bibcode:2019Geo....47.1039B. doi:10.1130/G46365.1. S2CID 204258554.
- ↑ Watanabe, Yumiko; Martini, Jacques E. J.; Ohmoto, Hiroshi (30 نوامبر 2000). "Geochemical evidence for terrestrial ecosystems 2.6 billion years ago". Nature. 408 (6812): 574–578. Bibcode:2000Natur.408..574W. doi:10.1038/35046052. ISSN 0028-0836. PMID 11117742. S2CID 4427507.
- 1 2 Horodyski, R. J.; Knauth, L. P. (1994). "Life on land in the precambrian". Science. 263 (5146): 494–498. Bibcode:1994Sci...263..494H. doi:10.1126/science.263.5146.494. ISSN 0036-8075. PMID 17754880. S2CID 37687767.
- ↑ Retallack, Gregory J.; Mindszenty, Andrea (1 آوریل 1994). "Well preserved late Precambrian Paleosols from Northwest Scotland". Journal of Sedimentary Research (in English). 64 (2a): 264–281. doi:10.1306/D4267D7A-2B26-11D7-8648000102C1865D. ISSN 1527-1404.
- ↑ Horodyski, R. J.; Knauth, L. P. (1994). "Life on land in the precambrian". Science. 263 (5146): 494–498. Bibcode:1994Sci...263..494H. doi:10.1126/science.263.5146.494. ISSN 0036-8075. PMID 17754880. S2CID 37687767.
- ↑ Prave, Anthony Robert (2002). "Life on land in the Proterozoic: Evidence from the Torridonian rocks of northwest Scotland". Geology. 30 (9): 811. Bibcode:2002Geo....30..811P. doi:10.1130/0091-7613(2002)030<0811:LOLITP>2.0.CO;2. Archived from the original on 7 مارس 2016. Retrieved 5 مارس 2016.
- 1 2 Heckman, D. S.; Geiser, D. M.; Eidell, B. R.; Stauffer, R. L.; Kardos, N. L.; Hedges, S. B. (2001). "Molecular Evidence for the Early Colonization of Land by Fungi and Plants". Science. 293 (5532): 494–498. Bibcode:1994Sci...263..494H. doi:10.1126/science.263.5146.494. PMID 17754880. S2CID 37687767.
- ↑ Strother, P. K.; Battison, L.; Brasier, M. D.; Wellman, C. H. (2011). "Earth's earliest non-marine eukaryotes". Nature. 473 (7348): 505–509. Bibcode:2011Natur.473..505S. doi:10.1038/nature09943. PMID 21490597. S2CID 4418860.
- ↑ Knauth, L. P. (2009). "The late Precambrian greening of the Earth". Nature. 460 (7256): 728–732. Bibcode:2009Natur.460..728K. doi:10.1038/nature08213. PMID 19587681. S2CID 4398942.
- اخترزیستشناسی
- پیشینزیستی
- زمینساخت صفحهای
- دورههای زمینشناسی
- علم در ۱۹۹۵ (میلادی)