مجموعه فسیلی
در باستانشناسی و دیرینهشناسی، یک مجموعه فسیلی (faunal assemblage) گروهی از سنگوارههای جانوری است که با هم در یک چینه مشخص یافت میشوند.[۱] در یک نهشتهٔ تغییرشکلنیافته، سنگوارهها بر اساس چینه و با پیروی از قوانین یکنواختگرایی[۲] و قانون برهمچینی[۳] سازماندهی میشوند، که بیان میکنند پدیدههای طبیعی قابل مشاهدهٔ امروزی (مانند مرگ، پوسیدگی یا حمل پس از مرگ) در مورد ثبت دیرینهشناسی نیز صدق میکنند و اینکه قدیمیترین چینه در پایین یک نهشتهٔ دیرینهشناسی قرار خواهد گرفت.
اصل توالی زیستی در زیستچینهشناسی برای تعیین هر واحد زیستچینهای یا زیستزون به کار میرود. واحد زیستچینهای یک بخش از چینههای زمینشناسی است که بر اساس سنگوارههای شاخص یا مجموعهٔ فسیلی مشخصهاش تعریف میشود. مجموعههای فسیلی همچنین در نهشتههای باستانشناسی تحلیل میشوند، جایی که علاوه بر فرآیندهای بومشناختی و دیرینهشناسی تدفینی طبیعی، تحت تأثیر فعالیتهای فرهنگی نیز قرار میگیرند.
دیرینهشناسی تدفینی
دیرینهشناسی تدفینی (Taphonomy) از یونانی به عنوان «قوانین تدفین» (taphos + nomos) ترجمه میشود.[۴] از مرگ تا کشف، فرآیندهای زیادی میتوانند بر دفن و حفظ یک مجموعهٔ فسیلی تأثیر بگذارند، از جمله پوسیدگی، حمل، زیستآشفتگی، زیستچینهنگاری (تغییرات فیزیکی ناشی از رسوبگذاری)،[۴] و دیاژنز (فرآیندی که طی آن مواد آلی به کانی تبدیل میشوند).[۵] بر اساس این عوامل حفظشدگی، اسکلتها و بخشهای سخت بیشترین احتمال حفظشدگی در مجموعههای فسیلی را دارند.[۱] فرآیندهای تدفینی میتوانند باعث «اتلاف اطلاعات» قابل توجهی شوند.[۶]
در اغلب موارد، اگر جانوری بمیرد، ابتدا گوشت آن پوسیده میشود و استخوانهایش در معرض فرآیندهای تدفینی قرار میگیرند.[۷] حفظشدگی به ترکیب کانیشناسی بستگی دارد و با تراکم استخوان و همچنین ترکیب رسوب متغیر است. برای نمونه، محیطهای خشک یا بسیار شور استخوانها را بهتر از محیطهای اسیدی مرطوب حفظ میکنند.[۸] دیگر محیطهایی که احتمال بیشتری برای حفظ بقایای جانوری دارند، شامل لغزشهای رسوبی در دریاچهها، گودالهای فروکش،[۹] یا غارها میشوند.[۱۰] در این موارد، مجموعههای فسیلی ممکن است نشاندهندهٔ انباشت بلندمدت باشند و نه رویدادهای یکباره.
مجموعههای زیستی در برابر مجموعههای مرگی
مجموعههای زیستی و مرگی در دیرینهشناسی و باستانشناسی بهطور متفاوتی تعریف میشوند.
دیرینهشناسی
یک مجموعهٔ زیستی (life assemblage) به مجموعهٔ فسیلی گفته میشود که از یک جامعهٔ زیستی واحد تشکیل شده و در محیطی که در آن میزیسته، حفظ شده است.[۱] در مقابل، یک مجموعهٔ مرگی (death assemblage) از گونههایی تشکیل شده که در محلی که نهشته شدهاند زندگی نمیکردهاند و به صورت ثانویه وارد ثبت دیرینهشناسی شدهاند.[۱] یک مجموعهٔ مخلوط (mixed assemblage) شامل هر دو نوع سنگوارهٔ جابهجانشده و جابهجانشده است.[۱]
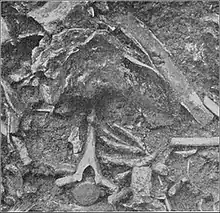
میانگینگیری زمانی[الف] پدیدهای است که در آن رویدادهای زمینشناسی بر اساس تجمیع شواهد سنگوارهای موجود، همزمان به نظر میرسند.[۱۱] میانگینگیری زمانی زمانی رخ میدهد که مجموعههای فسیلی در میان چینههای زمانی مختلف مخلوط شوند و در مجموعههای فسیلی مختلف متفاوت است.[۵] برای مجموعههای زیستی که در آن یک جامعه بهطور کامل توسط یک رویداد ناگهانی مانند طوفان یا زمینلغزه درجا دفن شده است، میانگینگیری زمانی بر تفسیر تأثیر نمیگذارد.[۵] با این حال، بیشتر مجموعههای فسیلی، مجموعههای مخلوط یا مرگی هستند که تحت تأثیر فرآیندهای تدفینی قرار گرفتهاند که تحلیل و تفسیر دیرینهشناسی را تحت تأثیر قرار میدهند. اگرچه تاریخگذاری رادیوکربن پرهزینه است و برای نمونههای قدیمیتر از ۵۰٬۰۰۰ سال ممکن نیست، اما زمانی که بتوان تکتک استخوانها را تاریخگذاری کرد، پژوهشگران میتوانند از مشکلات مرتبط با میانگینگیری زمانی اجتناب کنند.
یک مجموعهٔ فسیلی که اغلب در دیرینهشناسی و دیرینهاقلیمشناسی استفاده میشود، استفاده از مجموعههای روزنهداران (foraminifera) به عنوان نمایندهای از اقلیم و سطح دریاهای گذشته است.[۱۲] روزنهداران میکروارگانیسمهای دریایی هستند که در بیشتر نقاط اقیانوس جهان فراوانند و شاخصهای دمای اقیانوس، شوری، شدت بالاآمدگی آب، تولید اولیه و موارد دیگر محسوب میشوند.[۱۳]
فرگشت انسانتباران را نیز میتوان در کنار مجموعههای فسیلی در حال تغییر دنبال کرد. برای نمونه، در شرق آفریقا، یک گروه متمایز از گونههای جانوری، عمدتاً گرازسانان و فیلریختان، مشخصهٔ سنگوارههای حفظشده از ۳٫۵ تا ۴٫۵ میلیون سال پیش است.[۱۴] این مجموعهٔ فسیلی بهطور مؤثری برای تطابق زمانی سایتهای اولیهٔ انسانتبار در شرق آفریقا استفاده شده است.
مجموعههای فسیلی در تعیین الگوهای جستجوی غذای انسانتباران مفید هستند. یکی از این مجموعهها در لانگ رونگرین در تایلند نشاندهندهٔ یک گروه شکارچی-گردآورنده بود که در یافتن غذا بسیار انعطافپذیر عمل میکرد. آنها برای تأمین بخش گوشتی رژیم غذایی خود به شدت به لاکپشتهای دریایی و خشکی وابسته بودند، زمانی که شکار شکارچیان بزرگ غیرقابل پیشبینی بود. این مجموعه همچنین نشان میداد که دیرینهمحیط خشکتر و خنکتر از امروز بوده است، زیرا بهطور مشخصی استخوانهای خوک در آن وجود نداشت.[۱۵]
باستانشناسی
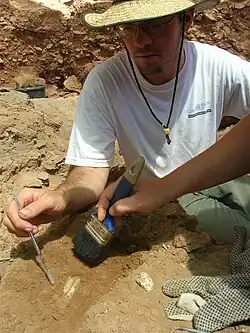
در باستانشناسی، یک مجموعهٔ زیستی به عنوان جامعهٔ جانوری تعریف میشود که همزمان و هممکان با جمعیت انسانی که نهشتهٔ باستانی را ایجاد کرده، میزیسته است.[۱۶] از سوی دیگر، یک مجموعهٔ مرگی مجموعهای است که توسط مردم استفاده شده و در یک محوطهٔ باستانی حفظ شده است.
اگر از تعریف دیرینهشناسی مجموعهٔ مرگی استفاده کنیم، در باستانشناسی، مجموعهٔ فسیلی ذاتاً یک مجموعهٔ مرگی است، زیرا باستانشناسان فرض میکنند که انسانها جانوران یافتشده درون نهشتهها را کشتهاند. تغییرات تدفینی ایجادشده توسط فرآیندهای فرهنگی به دو دسته تقسیم میشوند: دستهٔ اول آنهایی که باستانشناس نمیتواند کنترل کند و دستهٔ دوم پیامد مستقیم روشهای باستانشناس است. نهشتههای باستانی همیشه تحت تأثیر فرآیندهای فرهنگی قرار دارند و بنابراین نشاندهندهٔ فعالیتهای انسانی هستند، نه یک جامعهٔ بومشناختی کامل.[۱۶] این فعالیتهای انسانی ممکن است شامل شکار معیشتی، کشاورزی، استفادهٔ آیینی و موارد دیگر باشد.
یک نمونه از معایب تدفینی در مجموعههای فسیلی باستانشناسی، تأثیر سگهای اهلی بر مجموعهها است.[۱۷] از طریق لاشهخواری یا تغذیهٔ مستقیم توسط همراهان انسانیشان، سگها و دیگر سگسانان میتوانند چنان آسیب شدیدی به استخوانها وارد کنند که شناسایی توسط باستانشناسان غیرممکن شود. این امر باعث بروز مشکلاتی در تفسیر محوطه میشود.
جستارهای وابسته
یادداشتها
منابع
- Dawson, Peter Colin (1993) From death assemblage to fossil assemblage understanding the nature of intra-site and inter-site variability in faunal assemblages National Library of Canada, Ottawa, شابک ۰−۳۱۵−۷۸۴۱۵−۶
- Rogers, Alan R. (2000). "On Equifinality in Faunal Analysis". American Antiquity. 65 (4): 709–723. doi:10.2307/2694423. JSTOR 2694423.
- Crabtree, Pam J. (2005) Exploring Prehistory: How archaeology reveals our past McGraw-Hill, Boston p. 450, شابک ۰−۰۷−۲۹۷۸۱۴−۷
- 1 2 3 4 5 Raup, David M.; Stanley, Steven M. (1978). Principles of paleontology (2. ed.). San Francisco: Freeman. ISBN 978-0-7167-0022-7.
- ↑ Romano, Marco (2015). "Reviewing the term uniformitarianism in modern Earth sciences". Earth-Science Reviews. 148: 65–76. Bibcode:2015ESRv..148...65R. doi:10.1016/j.earscirev.2015.05.010. ISSN 0012-8252.
- ↑ Donovan, Stephen K. (2021). "Chapter 6: The Law of Superposition". Hands-on palaeontology: a practical manual. Edinburgh, Scotland; London: Dunedin. ISBN 978-1-78046-097-0. OCLC 1119471437.
- 1 2 Martin, Ronald E. (1999). Taphonomy: a process approach. Cambridge paleobiology series. Cambridge: Cambridge university press. ISBN 978-0-521-59171-3.
- 1 2 3 4 Briggs, Derek E. G.; Crowther, Peter R., eds. (2007). Palaeobiology II. Malden, Mass.: Blackwell. ISBN 978-0-632-05149-6.
- ↑ Behrensmeyer, Anna K.; Kidwell, Susan M. (1985). "Taphonomy's Contributions to Paleobiology". Paleobiology. 11 (1): 105–119. Bibcode:1985Pbio...11..105.. doi:10.1017/S009483730001143X. ISSN 0094-8373. JSTOR 2400427.
- ↑ Madgwick, Richard; Mulville, Jacqui (2015-01-01). "Reconstructing depositional histories through bone taphonomy: extending the potential of faunal data". Journal of Archaeological Science. 53: 255–263. Bibcode:2015JArSc..53..255M. doi:10.1016/j.jas.2014.10.015. ISSN 0305-4403.
- ↑ Dirrigl, Frank Joseph; Jung, Hanna; Otken, Robert; Parsons, Jason (2020-02-20). "Bone chemical composition changes in bird bones from laboratory exposure to saline lake conditions". Archaeological and Anthropological Sciences (in English). 12 (3): 76. Bibcode:2020ArAnS..12...76D. doi:10.1007/s12520-020-01019-z. ISSN 1866-9565.
- ↑ Ferguson, David K; Knobloch, Erwin (June 1998). "A fresh look at the rich assemblage from the Pliocene sink-hole of Willershausen, Germany". Review of Palaeobotany and Palynology. 101 (1–4): 271–286. Bibcode:1998RPaPa.101..271F. doi:10.1016/s0034-6667(97)00078-x. ISSN 0034-6667.
- ↑ Jass, Christopher N.; George, Christian O. (April 2010). "An assessment of the contribution of fossil cave deposits to the Quaternary paleontological record". Quaternary International. 217 (1–2): 105–116. Bibcode:2010QuInt.217..105J. doi:10.1016/j.quaint.2009.11.008. ISSN 1040-6182.
- ↑ Kowalewski, Michał (1996). "Time-Averaging, Overcompleteness, and the Geological Record". The Journal of Geology (in English). 104 (3): 317–326. Bibcode:1996JG....104..317K. doi:10.1086/629827. ISSN 0022-1376.
- ↑ Cosentino, C.; Molisso, F.; Scopelliti, G.; Caruso, A.; Insinga, D.D.; Lubritto, C.; Pepe, F.; Sacchi, M. (May 2017). "Benthic foraminifera as indicators of relative sea-level fluctuations: Paleoenvironmental and paleoclimatic reconstruction of a Holocene marine succession (Calabria, south-eastern Tyrrhenian Sea)". Quaternary International. 439: 79–101. Bibcode:2017QuInt.439...79C. doi:10.1016/j.quaint.2016.10.012. ISSN 1040-6182.
- ↑ Saraswat, R. (2015). "Non-destructive foraminiferal paleoclimatic proxies: A brief insight". Proc. Indian Natl. Sci. Acad. (in English). 81 (2). doi:10.16943/ptinsa/2015/v81i2/48094.
- ↑ Kullmer, Ottmar; Sandrock, Oliver; Viola, Thomas Bence; Hujer, Wolfgang; Said, Hasen; Seidler, Horst (2008). "Suids, Elephantoids, Paleochronology, and Paleoecology of the Pliocene Hominid Site Galili, Somali Region, Ethiopia". PALAIOS. 23 (7/8): 452–464. Bibcode:2008Palai..23..452K. doi:10.2110/palo.2007.p07-028r. ISSN 0883-1351. JSTOR 27670529.
- ↑ Mudar, Karen; Anderson, Douglas (2007). "New Evidence for Southeast Asian Pleistocene Foraging Economies: Faunal Remains from the Early Levels of Lang Rongrien Rockshelter, Krabi, Thailand". Asian Perspectives. 46 (2): 298–334. doi:10.1353/asi.2007.0013. hdl:10125/17269. JSTOR 42928720.
- 1 2 Reitz, Elizabeth Jean; Wing, Elizabeth S. (2008). Zooarchaeology. Cambridge manuals in archaeology (2nd ed.). Cambridge: Cambridge University Press. ISBN 978-0-521-85726-0.
- ↑ Yravedra, José; Maté-González, Miguel Ángel; Courtenay, Lloyd A.; González-Aguilera, Diego; Fernández, Maximiliano Fernández (2019-11-08). "The use of canid tooth marks on bone for the identification of livestock predation". Scientific Reports (in English). 9 (1): 16301. Bibcode:2019NatSR...916301Y. doi:10.1038/s41598-019-52807-0. ISSN 2045-2322. PMC 6841930. PMID 31705057.
پیوند به بیرون
- "A Marine Faunal Assemblage" بایگانیشده در ۲۰۱۶-۰۳-۱۰ توسط Wayback Machine
- باستانجانورشناسی
- پیشینه فسیلی جانوران
- پیشینه فسیلی
- دیرینجانورشناسی
- زیستچینهشناسی