مجموعه ناما
| مجموعه ناما | |
|---|---|
| ~۵۵۰ – ۵۳۸٫۸ ± ۰٫۲ سال[۱] ۰ ۵۵۰ ۵۳۹ | |
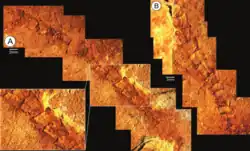 نمونههایی از کلودینا کاریناتا (Cloudina carinata) از سازند تامنژو (Tamengo Formation) در برزیل. |
مجموعه ناما (Nama assemblage) آخرین مجموعه از مجموعههای زیستی دوره ادیاکاران بود. این مجموعه که پس از مجموعههای آوالون و دریای سفید پدیدار شد، بازهٔ زمانیِ حدود ۵۵۰ تا ۵۳۸٫۸ میلیون سال پیش را در بر میگرفت و با «زیستبازهٔ ادیاکاران پایانی» (Terminal Ediacaran biozone) همزمان بود.[۲] ویژگی بارز این مجموعه، یک تغییر و جانشینیِ جانوری همراه با افولِ زیواگانِ پیشینِ دریای سفید بود. این افتِ تنوع زیستی با انقراضهای دستهجمعیِ ائون پیدازیستی مقایسه شده است. دومین افتِ تنوع زیستی در مرز ادیاکاران–کامبرین رخ داد که با رویداد انقراض پایان-ادیاکاران، به حیاتِ مجموعههای ناما پایان داد.[۳][۴][۵]
ریشهشناسی و تعاریف
مجموعههای ادیاکاران پسین | ||||||||||||
−۵۷۵ — – −۵۷۰ — – −۵۶۵ — – −۵۶۰ — – −۵۵۵ — – −۵۵۰ — – −۵۴۵ — – −۵۴۰ — – |
| |||||||||||
| ||||||||||||
مقیاس چینهشناسی بر اساس زیربخشهای ICS و مجموعههای زیستی ادیاکاران محور عمودی: میلیون سال پیش | ||||||||||||
مجموعه ناما بر اساس گروه ناما (Nama Group) در کوههای تساوس (Tsaus Mountains) در نامیبیا نامگذاری شده است؛ منطقهای که سوابق فسیلیِ ارگانیسمهای نرمتن از اواخر دوره ادیاکاران را در خود حفظ کرده است.[۲] زیواگانِ مستقر در سایتهای نامیبیا، با زیواگانِ مشابهی که در جنوب غربی ایالات متحده، جنوب چین و بریتیش کلمبیا یافت شدهاند، در یک گروه قرار میگیرند؛[۷] موضوعی که باعث شد مجموعه ناما نخستین بار در سال ۲۰۰۱ توسط گهلینگ (Gehling) تعریف شود.[۸] این تعریف از یک مجموعهٔ زیستی، معمولاً تمام زیواگانی را که در این چینههای سنگی یافت میشوند در بر میگیرد، که در مورد مجموعه ناما، نشاندهندهٔ یک بازهٔ زمانی بسیار مشخص است.[۲]
تقسیمبندیِ کاملِ زیواگان ادیاکاران به سه مجموعه مجزا، نخستین بار در سال ۲۰۰۳ توسط بن واگونر (Ben Waggoner) و از طریق تحلیل پارسیمونیِ بومزادی (Parsimony analysis of endemicity) مطرح شد. این مطالعه بر دادههای زمانی، دیرینهجغرافیایی و دیرینهمحیطی استوار بود.[۸] همین گروهبندی بعدها از طریق خوشهبندی سلسلهمراتبی و مقیاسگذاری چندبعدیِ غیرمتریک نیز تأیید شد.[۹] روشهای مشابهی که با خوشهبندیِ مبتنی بر تحلیل شبکه تکمیل شدند، سردهها را در جوامع دیرینه (Paleocommunities) دستهبندی کرده و نشانههایی از یک خوشهٔ اضافی (به نام میاهو) را آشکار کردند که با مجموعههای آوالون و دریای سفید همپوشانی داشت. مجموعه ناما نیز در این پژوهشها بهعنوان یک جامعهٔ دیرینه تفسیر و تأیید شد. با گنجاندنِ سازندها در تحلیل شبکه، یک زیستبازهٔ (Biozone) نزدیک و مرتبط در ادیاکاران پایانی شناسایی شد که با زیستبازهٔ پیشینِ ادیاکاران در تضاد بود و شامل سازندهایی با تنوع گونهایِ پایین (عمدتاً متشکل از سردههای ناما) میشد.[۱۰]
تعریفی پیشنهادی از سوی وود (Wood) و همکارانش، مجموعه ناما را بهعنوان یک «فونای فرگشتی» (Evolutionary fauna) توصیف کرده و آن را تنها به گروههای ریختشناختیِ جدید محدود میکند (مانند جانورانِ دارای پوشش آهکی، کلودینیدها و فسیلهای اثریِ پیچیده) و بازماندگانِ فونای پیشین مانند پاراچارنیا (Paracharnia) را از آن مستثنی میسازد. بر اساس این تعریف، مرز پایینیِ این مجموعه با قدیمیترین پیدایشِ کلودینا در سوابق فسیلی همزمان است و این مرز را در ۵۵۰ میلیون سال پیش قرار میدهد. این تعریف، مجموعه ناما را از زیستبازهٔ ادیاکاران پایانی (که هم شامل بازماندگان قدیمی و هم آرایههای جدیدتر است) متمایز میکند.[۲]
دیرینهتاریخ
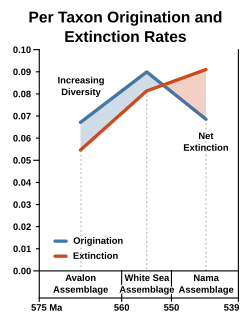
مجموعه ناما در میانِ مجموعهٔ قدیمیترِ دریای سفید و دورهٔ جدیدترِ کامبرین قرار گرفته و با دو رویداد عمدهٔ تغییر و جانشینیِ جانوری محدود شده است که این دو رویداد بهعنوان موجهای انقراض پایان-ادیاکاران در نظر گرفته میشوند.[۲] تنوع سردهها در این دوره نسبت به ادیاکارانِ پیشین و زیواگان فورتونین (Fortunian) در دورههای بعدی بسیار کمتر بود؛ واقعیتی که نشان داده شده مستقل از سوگیری در نمونهبرداری است. با این حال، کاهش در آرایههای زیواگان ادیاکاران با ظهور هوپسزیانِ (Eumetazoa) کفزی و بیحرکت، و پیشرفتهای جدیدی مانند ظهور شکارگری و زیستکانیسازی (تشکیل اسکلت و صدف) همراه بود.[۱۰][۱۱] کاهش دیگری در تنوع زیستی نیز در حدود ۵۴۵ میلیون سال پیش پیشنهاد شده است.[۲]
افول اولیه
استدلال شده است که کاهش تنوع زیستی نسبت به مجموعهٔ پیشینِ دریای سفید، ناشی از کاهش سطح اکسیژن دریاها بوده است که بقای جانورانی با نسبت سطح به حجم بالاتر را تسهیل میکرد.[۴] با این حال، این فرضیه با یافتههایی که نشان میدهد افولِ جانورانِ نرمتن و دارای پوشش سخت هر دو پیش از افت سطح اکسیژن آغاز شده است، به چالش کشیده شد. بر اساس این مدل جایگزین، بیاکسیژنیِ گسترده در آبهای عمیق، تأثیر حداقلی بر فونای ادیاکاران داشته است، زیرا این ارگانیسمها بیشتر در مناطق آبهای کمعمق در محیطهای فلات قاره (مانند گروه ناما) متمرکز بودهاند.[۱۲][۲] در مقابل، این احتمال نیز وجود دارد که تغییرات بومشناختی خود عاملِ کاهش سطح اکسیژن بوده باشند.[۱۳]
زیواگان
ارگانیسمهای نرمتنِ مجموعه ناما (که نسبت به مجموعه دریای سفید رو به افول بودند)، عمدتاً تحت سلطهٔ ارنیتومورفها (Erniettomorpha) قرار داشتند، اگرچه رانجئومورفها (Rangeomorpha)، آربورئومورفها (Arboreomorpha) و دیپلوروزوآ (Dipleurozoa) نیز حضور داشتند.[۲]
در حالی که مجموعههای ادیاکارانِ پسین عمدتاً از نظر زمانی لایهبندی شدهاند، اما بازماندگانی از مجموعههای آوالون و دریای سفید پس از ۵۵۰ میلیون سال پیش نیز وجود داشتند و معمولاً صرفنظر از خویشاوندیِ زیستی، تنها بر اساس تقدم زمانی به مجموعه ناما اختصاص داده میشوند. از جملهٔ این بازماندگان میتوان به هیمالورا (Hiemalora)، چارنیا (Charnia) و آربورئومورفی به نام آربورئا (Arborea) اشاره کرد. با این حال، برخی از تعاریف این ارگانیسمها را از مجموعه ناما مستثنی کرده و این مجموعه را از زیستبازهٔ زمانیِ ادیاکاران پایانی تفکیک میکنند.[۲]
جانورِ کفزی و آهکیِ ناماکالاتوس (Namacalathus) تنها در مجموعه ناما یافت میشود، اگرچه تبار و خویشاوندی آن هنوز مورد مناقشه است.[۲]
ارگانیسمهای لولهای
نخستین ردپاهای کلودینیدهای لولهای (Cloudinidae) در مجموعه ناما ظاهر میشود که شامل نمونههای معدنیسازیشدهٔ کلودینا و نمونههای نرمتنِ کونوتوبوس (Conotubus) است. ارگانیسمهای لولهایِ دیگری نیز در این دوره شناخته شدهاند؛ از جمله ناماکالاتوس، سینوتوبولیتس (Sinotubulites)، کورومبلا (Corumbella) و گائوجیاشانیا (Gaojiashania).[۲]
پانویس
- ↑ Shen, Bing; Dong, Lin; Xiao, Shuhai; Kowalewski, Michal (4 January 2008). "The Avalon explosion: evolution of Ediacara morphospace". Science. 319 (5859): 81–84. Bibcode:2008Sci...319...81S. doi:10.1126/science.1150279. ISSN 1095-9203. PMID 18174439.
- 1 2 3 4 5 6 7 8 9 10 11 Wood, Rachel; Bowyer, Fred T.; Alexander, Ruaridh; Yilales, Mariana; Uahengo, Collen-Issia; Kaputuaza, Kavevaza; Ndeunyema, Junias; Curtis, Andrew (September 2023). "New Ediacaran biota from the oldest Nama Group, Namibia (Tsaus Mountains), and re-definition of the Nama Assemblage". Geological Magazine (in English). 160 (9): 1673–1686. Bibcode:2023GeoM..160.1673W. doi:10.1017/S0016756823000638. hdl:20.500.11820/bc8c23b0-d59c-4230-a45b-db854a8ad0f3. ISSN 0016-7568.
- ↑ Bowyer, Fred T.; Uahengo, Collen-Issia; Kaputuaza, Kavevaza; Ndeunyema, Junias; Yilales, Mariana; Alexander, Ruaridh D.; Curtis, Andrew; Wood, Rachel A. (15 October 2023). "Constraining the onset and environmental setting of metazoan biomineralization: The Ediacaran Nama Group of the Tsaus Mountains, Namibia". Earth and Planetary Science Letters. 620 118336. Bibcode:2023E&PSL.62018336B. doi:10.1016/j.epsl.2023.118336. ISSN 0012-821X.
- 1 2 3 Evans, Scott D.; Tu, Chenyi; Rizzo, Adriana; Surprenant, Rachel L.; Boan, Phillip C.; McCandless, Heather; Marshall, Nathan; Xiao, Shuhai; Droser, Mary L. (15 November 2022). "Environmental drivers of the first major animal extinction across the Ediacaran White Sea-Nama transition". Proceedings of the National Academy of Sciences (in English). 119 (46) e2207475119. Bibcode:2022PNAS..11907475E. doi:10.1073/pnas.2207475119. ISSN 0027-8424. PMC 9674242. PMID 36343248.
- ↑ Bottjer, David J.; Clapham, Matthew E. (2006). Xiao, Shuhai; Kaufman, Alan J. (eds.). Evolutionary Paleoecology of Ediacaran Benthic Marine Animals (in English). Dordrecht: Springer Netherlands. pp. 91–114. doi:10.1007/1-4020-5202-2_4. ISBN 978-1-4020-5202-6.
- ↑ Canfield, Donald Eugene; Knoll, Andrew H.; Poulton, Simon W.; Narbonne, Guy M.; Dunning, Gregory R. (February 2020). "Carbon isotopes in clastic rocks and the Neoproterozoic carbon cycle". American Journal of Science. 320 (2): 97–124. Bibcode:2020AmJS..320...97C. doi:10.2475/02.2020.01. S2CID 214806821. Retrieved 12 March 2023.
- ↑ Hofmann, Hans J.; Mountjoy, Eric W. (2001). "Namacalathus-Cloudina assemblage in Neoproterozoic Miette Group (Byng Formation), British Columbia: Canada's oldest shelly fossils". Geology (in English). 29 (12): 1091. Bibcode:2001Geo....29.1091H. doi:10.1130/0091-7613(2001)029<1091:NCAINM>2.0.CO;2. ISSN 0091-7613.
- 1 2 Waggoner, Ben (1 February 2003). "The Ediacaran Biotas in Space and Time". Integrative and Comparative Biology (in English). 43 (1): 104–113. doi:10.1093/icb/43.1.104. ISSN 1540-7063. PMID 21680415.
- ↑ Boag, Thomas H.; Darroch, Simon A. F.; Laflamme, Marc (November 2016). "Ediacaran distributions in space and time: testing assemblage concepts of earliest macroscopic body fossils". Paleobiology (in English). 42 (4): 574–594. Bibcode:2016Pbio...42..574B. doi:10.1017/pab.2016.20. ISSN 0094-8373.
- 1 2 Muscente, A. D.; Bykova, Natalia; Boag, Thomas H.; Buatois, Luis A.; Mángano, M. Gabriela; Eleish, Ahmed; Prabhu, Anirudh; Pan, Feifei; Meyer, Michael B.; Schiffbauer, James D.; Fox, Peter; Hazen, Robert M.; Knoll, Andrew H. (2019-02-22). "Ediacaran biozones identified with network analysis provide evidence for pulsed extinctions of early complex life". Nature Communications (in English). 10 (1): 911. Bibcode:2019NatCo..10..911M. doi:10.1038/s41467-019-08837-3. ISSN 2041-1723. PMC 6384941. PMID 30796215.
- ↑ Schiffbauer, James D; Huntley, John Warren; O'Neil, Gretchen R.; Darroch, Simon A.F.; Laflamme, Marc; Cai, Yaoping (November 2011). "The Latest Ediacaran Wormworld Fauna: Setting the Ecological Stage for the Cambrian Explosion". Geological Society of America. 26 (11): 4–11.
- ↑ Tostevin, Rosalie; Clarkson, Matthew O.; Gangl, Sophie; Shields, Graham A.; Wood, Rachel A.; Bowyer, Fred; Penny, Amelia M.; Stirling, Claudine H. (2019-01-15). "Uranium isotope evidence for an expansion of anoxia in terminal Ediacaran oceans". Earth and Planetary Science Letters. 506: 104–112. Bibcode:2019E&PSL.506..104T. doi:10.1016/j.epsl.2018.10.045. hdl:20.500.11820/25fe1837-1045-4698-bdb8-4516c7b26a38. ISSN 0012-821X.
- ↑ Lenton, Timothy M.; Daines, Stuart J. (2018). "The effects of marine eukaryote evolution on phosphorus, carbon and oxygen cycling across the Proterozoic–Phanerozoic transition". Emerging Topics in Life Sciences. 2 (2): 267–278. doi:10.1042/ETLS20170156. PMC 7289021. PMID 32412617.
- ادیاکاران