هایمدالآرکئا
| هایمدالآرکئا | |
|---|---|
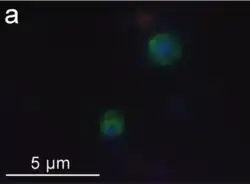 | |
| تصویربرداری CARD-FISH از دریاچه تکیرگیول | |
| ردهبندی علمی (کاندیداتوس) | |
| حوزه: | |
| شاخه: | |
| رده: | "کاندیداتوس هایمدالآرکئا" زارمبا-نیدزویدزکا و همکاران، ۲۰۱۷ |
| راستهها | |
| |
| مترادف | |
| |
هایمدالآرکئا (Heimdallarchaeia) (که پیشتر با نامِ نامزد «کاندیداتوس هایمدالآرکئوتا» شناخته میشد)، یک رده از آرکیها در درونِ شاخهٔ آرکیهای آسگارد است. این گروه از میکروبها به دلیل در اختیار داشتنِ زرادخانهٔ بینظیر و متراکمی از پروتئینهای پیچیده، یکی از مهمترین کانونهای مطالعاتی در زمینهٔ پیدایش یوکاریوتها (یوکاریوژنز) محسوب میشوند.
جایگاه تکاملی و مناقشهٔ منشأ یوکاریوتها
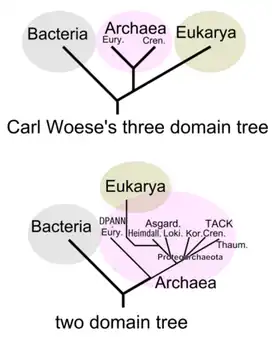
کشفِ آرکیهای آسگارد شواهدِ قدرتمندی به نفعِ سامانه دودامنهای (فرضیه ائوسیت) ارائه داد؛ مدلی که بر اساس آن، حیات تنها از دو دامنهٔ باکتریها و آرکیها تشکیل شده و یوکاریوتها (Eukarya) شاخهای تکاملیافته از درونِ آرکیها هستند. با این حال، جایگاهِ دقیقِ انشعابِ یوکاریوتها از درونِ آرکیهای آسگارد، به دلیلِ پیچیدگیهای محاسباتی نظیر «جذب شاخههای بلند» (LBA)، هنوز یک مناقشهٔ فعالِ علمی است.
در حال حاضر، دو مدلِ اصلیِ تبارزایی (فیلوژنتیک) برای توضیحِ این انشعاب با یکدیگر در رقابتاند:
۱. مدلِ «درونهایمدال» (Heimdall-in): بر اساس مطالعاتی نظیرِ پژوهشِ امه (Eme) و همکاران در سال ۲۰۲۳، نیای یوکاریوتها عمیقاً در درونِ ردهٔ هایمدالآرکئا جای میگیرد. این توپولوژی نشان میدهد که یوکاریوتها مستقیماً با راستهٔ هودآرکئالها همخانواده (گروه خواهر) هستند و در کنار راستههایی چون کاریآرکئالها تکامل یافتهاند.[۱]
۲. مدلِ «برونهایمدال» (Heimdall-out): تحلیلهای ژنومیکِ جدیدتر و پیشرفتهتر، از جمله مطالعهٔ جامعِ ژانگ (Zhang) و همکاران در سال ۲۰۲۵، نشان میدهند که اگرچه یوکاریوتها قطعاً از آرکیهای آسگارد سرچشمه گرفتهاند، اما نقطهٔ دقیقِ انشعابِ آنها خارج از ردهٔ هایمدالآرکئا قرار دارد. در این پارادایم، یوکاریا پیش از آنکه هایمدالآرکئا به راستههای کنونیاش تنوع یابد، از مسیرِ تکاملیِ آنها جدا شده است. بنابراین، هایمدالآرکئا یک خویشاوندِ بسیار نزدیک تلقی میشود، اما لزوماً نیای مستقیم و دربرگیرندهٔ یوکاریوتها نیست.[۲]
تاریخچهٔ کشف و وضعیت کِشت
هایمدالآرکئا برای نخستین بار در سال ۲۰۱۷ توسط پژوهشگران دانشگاه اوپسالا (Uppsala University)، در کنار سه دودمان دیگر از آرکیها (اودینآرکئا، ثورآرکئا و لوکیآرکئا) توصیف شد و در نتیجهٔ آن، بالاشاخهٔ آسگارد پایهگذاری گردید.[۳] توالیهای ژنومیِ اولیه از طریق متاژنومیکس و از محیطهایی نظیر رسوبات چاهک گرمابی «قلعه لوکی» (Loki's Castle) استخراج شدند. نام این رده از «هایمدال»، ایزدِ نورس و نگهبانِ پلِ بیفروست در اساطیر اسکاندیناوی گرفته شده است.
- وضعیت کاندیداتوس:
از آنجایی که تاکنون هیچ عضوی از هایمدالآرکئا در کشتِ خالصِ آزمایشگاهی جداسازی نشده است، این گروه تحتِ «کد بینالمللی نامگذاری پروکاریوتها» دارای وضعیت رسمی نبوده و با پیشوند «کاندیداتوس» (Candidatus) شناخته میشود. بااینوجود، موجودیتِ فیزیکیِ آنها کاملاً به اثبات رسیده است. در سال ۲۰۲۰، محققان (سالچر و همکاران) موفق شدند با استفاده از تکنیک پیشرفتهٔ CARD-FISH، سلولهای هایمدالآرکئا را در نمونههای محیطیِ دریاچه تکیرگیول تصویربرداری کنند.[۴]
آرایهشناسی و راستههای شناختهشده
بر اساس پایگاه داده آرایهشناسی ژنوم (GTDB) و مطالعات متأخر، چندین راسته در درون این رده به رسمیت شناخته شدهاند:
- کاندیداتوس هودآرکئالها (Hodarchaeales)
- کاندیداتوس هایمدالآرکئالها (Heimdallarchaeales)
- کاندیداتوس کاریآرکئالها (Kariarchaeales)
- کاندیداتوس گردآرکئالها (Gerdarchaeales - نامگذاری غیررسمی)
جایگاه دودمانی به نام نیوردآرکئالها (Njordarchaeales) هنوز محل مناقشه است و در مدلهای مختلف، در پایهٔ هایمدالآرکئا یا مرتبط با گروههای باستانیتر طبقهبندی میشود.
| امه (Eme) و همکاران، ۲۰۲۳.[۱] | ژانگ (Zhang) و همکاران، ۲۰۲۵.[۲] | نسخهٔ 11-RS232 پایگاه GTDB (۱۵ آوریل ۲۰۲۶).[۵][۶][۷] | ||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
|
|
|
پروتئینهای شاخص یوکاریوتی (ESPs)
ویژگیِ متمایزکنندهٔ هایمدالآرکئا، در اختیار داشتنِ متراکمترین مجموعه از پروتئینهای شاخص یوکاریوتی (ESPs) در میانِ تمام آرکیهای آسگارد است. از یک مجموعهٔ مرجع شامل ۳۸ خانوادهٔ پروتئینی اختصاصیِ یوکاریوتها، ۳۱ مورد در این رده شناسایی شده است (بسیار بیشتر از لوکیآرکئا).
مهمترینِ این پروتئینها شامل همولوگهای کاملِ کمپلکس ESCRT (برای دستهبندی و برش غشا)، سیستم تنظیمگرِ یوبیکویتین، و هیستونهای دارای دُمِ پایانهٔ N هستند که نقشِ کلیدی در فشردهسازی و تنظیمِ اپیژنتیکِ ژنوم دارند و پیشتر تصور میشد مختصِ یوکاریوتها باشند.[۳]
کالبدشکافی بیوشیمیایی: پروفیلین و اسکلت سلولی
شاید شگفتانگیزترین کشفِ بیوشیمیایی در ژنومِ هایمدالآرکئا، شناسایی پروتئینِ تنظیمکنندهٔ اسکلت سلولی به نام پروفیلین باشد.[۸] در سلولهای یوکاریوتی، پروفیلین پلیمریزاسیونِ شبکهٔ اکتین را به دقت کنترل میکند.
پروفیلینِ استخراجشده از ژنومِ هایمدالآرکئا (سویهٔ LC3) دارای سه ویژگیِ بیوشیمیاییِ حیرتانگیز و کاملاً منطبق با یوکاریوتهاست:[۸]
- **اتصال به مونومرهای اکتین:** شکلِ تاشدگیِ سهبعدیِ آن متعارف است و با اتصال به مونومرهای اکتین (G-actin)، از تشکیلِ رشتههای تصادفی جلوگیری میکند.
- **اتصال به توالیهای پُلیپرولین:** این پروتئین قادر است به موتیفهای اسیدآمینهٔ پُلیپرولین (Polyproline Tracts) متصل شود؛ مکانیسمی که در یوکاریوتها برای هدایتِ مکانیِ ساختِ شبکههای سلولی استفاده میشود.
- **تنظیم توسط لیپیدهای غشایی:** فعالیتِ این پروفیلین مستقیماً توسط فسفواینوزیتیدهای غشایی تنظیم میگردد.
این یافتهها با قطعیت اثبات میکنند که نیاکانِ آرکیاییِ ما، مدتها پیش از ورودِ باکتریِ همزیست (نیای میتوکندری)، ماشینآلاتِ بیوشیمیاییِ لازم برای مدیریتِ یک اسکلتِ سلولیِ کاملاً پویا و متصلبهغشا را در اختیار داشتهاند.
جستارهای وابسته
- آرکیهای آسگارد
- پیدایش یوکاریوتها
- فهرست سردههای باستانیان
- لوکیآرکئا
- سامانه دودامنهای
منابع
- 1 2 Eme, Laura; Tamarit, Daniel; Caceres, Eva F.; Stairs, Courtney W.; De Anda, Valerie; Schön, Max E.; Seitz, Kiley W.; Dombrowski, Nina; Lewis, William H.; Homa, Felix; Saw, Jimmy H.; Lombard, Jonathan; Nunoura, Takuro; Li, Wen-Jun; Hua, Zheng-Shuang; Chen, Lin-Xing; Banfield, Jillian F.; St John, Emily; Reysenbach, Anna-Louise; Stott, Matthew B.; Schramm, Andreas; Kjeldsen, Kasper U.; Teske, Andreas P.; Baker, Brett J.; Ettema, Thijs J. G. (2023). "Inference and reconstruction of the heimdallarchaeial ancestry of eukaryotes". Nature. 618 (7967): 992–999. doi:10.1038/s41586-023-06186-2. PMC 10307638. PMID 37316666.
- 1 2 Zhang, Jiawei; Feng, Xiaoyuan; Li, Meng; Liu, Yang; Liu, Min; Hou, Li-Jun; Dong, Hong-Po (2025). "Deep origin of eukaryotes outside Heimdallarchaeia within Asgardarchaeota". Nature. 642 (8069): 990–998. doi:10.1038/s41586-025-08955-7. PMID 40335687.
- 1 2 Zaremba-Niedzwiedzka, Katarzyna; Caceres, Eva F.; Saw, Jimmy H.; Bäckström, Disa; Juzokaite, Lina; Vancaester, Emmelien; Seitz, Kiley W.; Anantharaman, Karthik; Starnawski, Piotr; Kjeldsen, Kasper U.; Stott, Matthew B.; Nunoura, Takuro; Banfield, Jillian F.; Schramm, Andreas; Baker, Brett J.; Spang, Anja; Ettema, Thijs J. G. (2017). "Asgard archaea illuminate the origin of eukaryotic cellular complexity". Nature. 541 (7637): 353–358. doi:10.1038/nature21031. PMID 28077874.
- ↑ Salcher, Michaela M.; Andrei, Adrian-Ştefan; Bulzu, Paul-Adrian; Keresztes, Zsolt G.; Banciu, Horia L.; Ghai, Rohit (2020). "Visualization of Lokiarchaeia and Heimdallarchaeia (Asgardarchaeota) by Fluorescence In Situ Hybridization and Catalyzed Reporter Deposition (CARD-FISH)". mSphere. 5 (4): e00686-20. doi:10.1128/msphere.00686-20. PMC 7392546. PMID 32727863.
{{cite journal}}: نگهداری یادکرد:doi رایگان بینشان (رده) - ↑ "GTDB release 11-RS232". Genome Taxonomy Database. Retrieved 1 May 2026.
- ↑ "ar53_r232.sp_label". Genome Taxonomy Database. Retrieved 1 May 2026.
- ↑ "Taxon History". Genome Taxonomy Database. Retrieved 1 May 2026.
- 1 2 Survery, S.; Hurtig, F.; Haq, S. R.; Eriksson, J.; Guy, L.; Rosengren, K. J.; Lindås, A. C.; Chi, C. N. (2021). "Heimdallarchaea encodes profilin with eukaryotic-like actin regulation and polyproline binding". Communications Biology. 4: 1024. doi:10.1038/s42003-021-02543-x.
- باستانیان