پیدایش یوکاریوتها

پیدایش یوکاریوتها (Eukaryogenesis)، فرآیندی که سلول و دودمان یوکاریوتی را به وجود آورد، نقطهٔ عطفی در فرگشت حیات محسوب میشود، زیرا یوکاریوتها شامل تمام سلولهای پیچیده و تقریباً همهٔ ارگانیسمهای چندسلولی هستند. توافق گستردهای وجود دارد که این فرآیند شامل همزیستزایی بوده است؛ فرآیندی که در آن یک آرکی و یک یا چند باکتری در ایجاد دودمانی که به آخرین نیای مشترک یوکاریوتی (LECA) ختم شد، نقش داشتند. همچنین به نظر میرسد که این رویداد شامل انتقال افقی ژنها از گروههای دیگر باکتریها نیز بوده است که در برخی از این انتقالها، ویروسهای غولپیکر به عنوان واسطه عمل کردهاند. لکا (LECA) از سطح جدیدی از پیچیدگی و توانمندی برخوردار بود و دارای هسته، دستکم یک سانتریول و مژک، میتوکندریهای هوازی بیهوازیاختیاری، تولیدمثل جنسی (میوز و سنگامی)، یک کیست خفته با دیوارهٔ سلولی از جنس کیتین و/یا سلولز، و پراکسیزومها بود. ترتیب مراحل دخیل در پیدایش یوکاریوتها مورد بحث است و ممکن است این روند با همزیستزایی آغاز نشده باشد. لکا نیز به نوبهٔ خود باعث پیدایش گروه تاج یوکاریوتها شد که نیاکان جانوران، قارچها، گیاهان و طیف متنوعی از موجودات تکسلولی را در بر میگیرد.
زمینه
حیات بر روی زمین پس از آن پدیدار شد که سیاره به اندازهٔ کافی برای تشکیل اقیانوسها خنک شد. این حیات در حدود ۳٫۵ تا ۴ میلیارد سال پیش به آخرین نیای مشترک جهانی (LUCA) تکامل یافت؛ موجودی که دارای ریبوزومها و کد ژنتیکی بود. این نیای مشترک، دو شاخهٔ اصلی حیات پروکاریوتی، یعنی باکتریها و آرکیها را پدید آورد. از میان این نیاکان کوچک با تقسیم سریع، یوکاریوتها با طیف بسیار گستردهتری از اندازههای سلولی، هستهها، اسکلت سلولی و سیستم غشای درونی پدیدار شدند.[۱][۲] یوکاریوتها یک دامنه را تشکیل میدهند که شامل تمام سلولهای پیچیده و بیشتر انواع موجودات چندسلولی از جمله جانوران، گیاهان و قارچها است.[۳][۴]
همزیستزایی
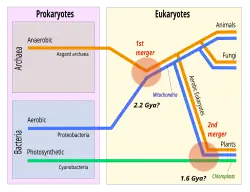
بر اساس نظریهٔ همزیستزایی (یا نظریهٔ درونهمزیستی) که توسط لین مارگولیس پیش برده شد، یکی از اعضای آرکیها یک سلول باکتریایی را به عنوان جزئی از خود به دست آورد. این سلول آرکی عضوی از فرمانروی پرومتئارکئاتی بود. باکتریِ یادشده یکی از آلفاپروتئوباکتریها بود که توانایی استفاده از اکسیژن را در تنفس خود داشت. این ویژگی به آن (و سلولهای آرکی که آن را در بر میگرفتند) این امکان را داد تا در حضور اکسیژن که برای موجودات سازگار با شرایط کاهنده سمی بود، زنده بمانند. باکتریهای درونهمزیست به میتوکندریهای سلول یوکاریوتی تبدیل شدند و بیشتر انرژی سلول را تأمین کردند.[۱][۵][A]
اخیراً مشخص شده است که این آرکی متعلق به ردهٔ هایمدالآرکئا بوده است.[۱۱]
آخرین نیای مشترک یوکاریوتی
آخرین نیای مشترک یوکاریوتی (LECA)، یک نیای مشترک فرضی برای تمام یوکاریوتهای زنده در حدود ۲ میلیارد سال پیش است[۳][۴] و به احتمال زیاد یک جمعیت بیولوژیکی بوده است.[۱۲] تصور میشود که این موجود یک آغازی دارای هسته، دستکم یک سانتریول و مژک، میتوکندریهای هوازی بیهوازیاختیاری، تولیدمثل جنسی (میوز و سنگامی)، یک کیست خفته با دیوارهٔ سلولی متشکل از کیتین و/یا سلولز، و پراکسیزومها بوده است.[۱۳][۱۴]
ابتدا پیشنهاد شده بود که لکا از طریق فاگوسیتوز تغذیه میکرده و ارگانیسمهای دیگر را میبلعیده است.[۱۳][۱۴] با این حال، در سال ۲۰۲۲، نیکو برمر (Nico Bremer) و همکارانش تأیید کردند که لکا دارای میتوکندری بوده و اظهار داشتند که چندین هسته داشته است، اما فاگوتروف (بیگانهخوار) بودنِ آن را رد کردند. این بدان معناست که توانایی بلعیدن مواد که در بسیاری از یوکاریوتها یافت میشود، احتمالاً در مراحل بعدی تکامل یافته است و اینگونه نبوده که ابتدا این توانایی کسب شود و سپس برای بلعیدن آلفاپروتئوباکتریهایی که به میتوکندری تبدیل شدند، مورد استفاده قرار گیرد.[۱۵]
لکا دارای «پیچیدگی سلولی شگفتانگیزی» توصیف شده است.[۱۶] سلولِ آن به بخشهای مجزایی تقسیم میشد.[۱۶] به نظر میرسد مجموعهای از پروتئینهای کمپلکس دستهبندی اندوزومی (ESCRT) را به ارث برده بود که امکان تغییر شکل غشاها، از جمله جدا کردن و جوانهزدن ریزهها (وزیکولها) برای تشکیل اندوزومها را فراهم میکردند.[۱۷] سازوکارهای آن برای رونویسی دیانای به آرانای و سپس برای ترجمهٔ آرانای به پروتئینها از یکدیگر مجزا بودند؛ امری که پردازش گستردهٔ آرانای را ممکن میساخت و اجازه میداد بیان ژنها پیچیدهتر شود.[۱۸] لکا دارای مکانیسمهایی برای بازآرایی و ترکیب مجدد مواد ژنتیکی خود و احتمالاً دستکاری فرگشتپذیری خویش بود. تمامی این موارد به لکا «مجموعهای قدرتمند از مزایای انتخابی» بخشیدند.[۱۶]
تولیدمثل جنسی یوکاریوتی
تولیدمثل جنسی در یوکاریوتها یک فرآیند ترکیبی است که از میوز و لقاح تشکیل شده و میتواند با تولیدمثل همراه شود.[۱۹] دکس (Dacks) و راجر (Roger)[۲۰] بر اساس یک تحلیل فیلوژنتیک پیشنهاد کردند که تولیدمثل جنسیِ اختیاری به احتمال زیاد در نیای مشترک تمام یوکاریوتها وجود داشته است. در اوایل فرگشت یوکاریوتها، در حدود ۲ میلیارد سال پیش، ارگانیسمها به راهحلی برای یک مشکل عمده نیاز داشتند: متابولیسم اکسیداتیو موجب آزادسازی گونههای فعال اکسیژن میشود که به مواد ژنتیکی یا دیانای آسیب میرسانند.[۱۹] تولیدمثل جنسی یوکاریوتی فرآیندی به نام نوترکیبی همساخت در طول میوز را فراهم میکند تا از طریق افزونگی اطلاعاتی، به ترمیم چنین آسیبهای دیانای بپردازد.[۱۹]
سناریوها
توالیهای رقیب در پیدایش میتوکندری، غشاها و هسته
زیستشناسان سناریوهای متعددی را برای پیدایش یوکاریوتها پیشنهاد کردهاند. اگرچه توافق گستردهای وجود دارد که لکا قطعاً دارای هسته، میتوکندری و غشاهای داخلی بوده است، اما ترتیب به دست آوردن این اجزا مورد بحث است.[۱۶] در مدل سینتروفیک (تغذیهٔ همپروری)، اولین نیای مشترک یوکاریوتی (FECA، در حدود ۲٫۲ میلیارد سال پیش) ابتدا میتوکندری، سپس غشاها و در نهایت هسته را به دست آورد.[۱۶] در مدل فاگوتروفیک (بیگانهخواری)، ابتدا هسته، سپس غشاها و در نهایت میتوکندری را به دست آورد.[۱۶] در یک فرآیند پیچیدهتر، ارگانیسم هر سه جزء را در مدت زمان کوتاهی به دست آورد و سپس قابلیتهای دیگر به آن افزوده شد. مدلهای دیگری نیز پیشنهاد شده است. به هر حال، دودمانهای بسیاری باید به وجود آمده باشند، اما لکا یا در رقابت با سایر دودمانها پیروز شد و یا با آنها در هم آمیخت تا یک نقطهٔ پیدایش واحد را برای یوکاریوتها شکل دهد.[۱۶]
نیک لین و ویلیام مارتین استدلال کردهاند که میتوکندریها ابتدا به وجود آمدند، با این منطق که انرژی، عامل محدودکنندهای برای اندازهٔ سلول پروکاریوتی بوده است.[۲۱] با این حال، انریکه ام. مورو (Enrique M. Muro) و همکاران استدلال کردهاند که سیستم ژنتیکی باید به یک نقطهٔ بحرانی میرسید تا به یک سیستم تنظیمی جدید (دارای اینترونها و اسپلایسوزوم) منجر شود که هماهنگی بین شبکههای ژنتیکی را ممکن میسازد.[۲۲] مدل فاگوتروفیک پیشفرض میگیرد که توانایی بلعیدن غذا وجود داشته و این امر به سلول اجازه میداده تا باکتری هوازی که بعدها به میتوکندری تبدیل شد را ببلعد.[۱۶]
یوجین کونین و پژوهشگران دیگر، با اشاره به اینکه آرکیها ویژگیهای مشترک بسیاری با یوکاریوتها دارند، استدلال میکنند که صفات اولیهٔ یوکاریوتی مانند بخشهای غشادار درونی پیش از آنکه درونهمزیستی، میتوکندریها را به سلول اولیهٔ یوکاریوتی اضافه کند، به دست آمده بودند، در حالی که در این میان دیواره سلولی از بین رفته بود. به همین ترتیب، کسب میتوکندری را نباید پایان فرآیند تلقی کرد، زیرا پس از تبادل درونهمزیستی یا در طول آن، همچنان باید خانوادههای ژنتیکیِ پیچیده و جدیدی توسعه مییافتند. به این ترتیب، از فکا (FECA) تا لکا (LECA)، این ارگانیسمها را میتوان به عنوان پیشیوکاریوت (proto-eukaryotes) در نظر گرفت. در پایان این فرآیند، لکا یک ارگانیسم پیچیده به شمار میرفت که دارای خانوادههای پروتئینیِ درگیر در بخشبندی سلولی بود.[۲۳][۲۴]
پیدایش یوکاریوتها از ویروسها
سناریوی دیگر، پیدایش ویروسی یوکاریوتها است که پیشنهاد میکند یوکاریوتها به عنوان یک اَبَرارگانیسمِ نوظهور پدیدار شدند؛ به طوری که هستهٔ آنها از یک «کارخانهٔ ویروسی» در کنار میتوکندریِ آلفاپروتئوباکتریایی نشأت گرفت که همهٔ اینها توسط یک سلول آرکی میزبانی میشدند. در این سناریو، پیدایش یوکاریوتها زمانی آغاز شد که یک ویروس، سلول آرکی را مستعمرهٔ خود کرد و آن را وادار به پشتیبانی از تولید ویروسها نمود. این ویروس ممکن است بعداً به ورود باکتری به این سلولِ برنامهریزیمجددشده کمک کرده باشد.[۲۵] یوکاریوتها ژنهای مربوط به چندین آنزیم سنتز و رونویسی دیانای را با دیانای ویروسها (نوکلئوسیتوویریکوتا) مشترک هستند. در نتیجه، این ویروسها ممکن است قدیمیتر از لکا باشند و احتمالاً با پیشیوکاریوتها دیانای مبادله کردهاند.[۲۶]
بحران محاسباتی پروتئین
انریکه مورو و همکارانش در سال ۲۰۲۵ پیشنهاد کردند که پیدایش یوکاریوتها، به عنوان یک گذار فرگشتی که تنها یک بار رخ داده است، با این وجود ممکن است پیامدی بسیار محتمل تحت محدودیتهای عمیق بیوشیمیایی یا اطلاعاتی بوده باشد. این نظریه مطرح میکند که پروکاریوتها در توانایی خود برای کاوش در مناطق جدیدِ فضای توالی پروتئین با یک «بحران محاسباتی» قریبالوقوع روبهرو بودند؛ امری که باعث شد ظهور سیستمهای سلولیِ پیچیدهتر، بیش از آنکه یک تصادف وابسته به شرایط باشد، یک راهحلِ محتمل به شمار رود.[۲۷]
همبستگی میکروبها
در سال ۲۰۲۶، مویسس برنابئو (Moisès Bernabeu) و همکارانش در مجلهٔ نیچر (Nature) بر اساس دادههای فیلوژنومیک در گسترهٔ وسیعی از ارگانیسمهای سلولی و ویروسها، اظهار داشتند که لکا پروتئینهای خود را از انواع مختلفی از باکتریها مشتق کرده است. آنها پیشنهاد میکنند که این اتفاق در پی انتقالهای مکرر افقی ژن رخ داده است و برخی از این انتقالها به احتمال زیاد پیش از درونهمزیستیِ سازندهٔ میتوکندریها به وقوع پیوستهاند.[۲۸] پژوهشگر ارشد این مطالعه، تونی گابالدون (Toni Gabaldón)، توضیح داد که بیان کردنِ پیدایش یوکاریوتها صرفاً به عنوان همزیستیِ یک آرکی با یک باکتری توضیحی ناقص است، زیرا باکتریهای دیگر و ویروسهای غولپیکر نیز در آن دخیل بودهاند.[۲۹] باکتریهای دخیل شامل پلانکتومایستوتا و بعدها میکسوکوکوتا بودند، در حالی که ویروسهای غولپیکر به نوکلئوسیتوویریکوتا تعلق داشتند. به نظر میرسد که ویروسها نقش انتقال ژنها بین میکروبهای مختلف را ایفا کرده و در نتیجه در ساخت ژنوم لکا مشارکت داشتهاند.[۲۸]
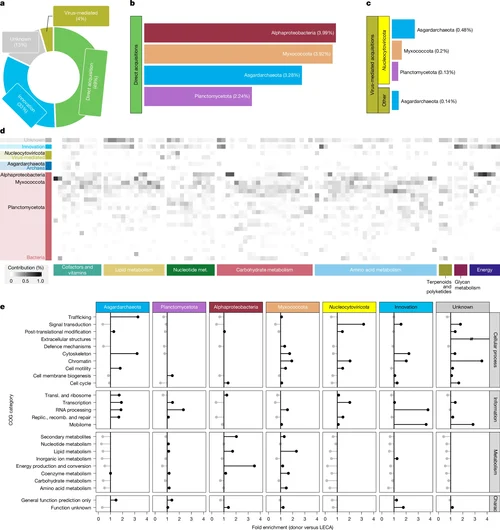
دودمانهای اجدادی: قهوهای: آلفاپروتئوباکتریها؛ قهوهای روشن: میکسوکوکوتا؛ آبی: آرکیهای آسگارد؛ بنفش: پلانکتومایستوتا.
تنوعیابی: گروه تاج یوکاریوتها
لکا نیز به نوبهٔ خود باعث پیدایش گروه تاج یوکاریوتها شد که نیاکان جانوران، قارچها، گیاهان و طیف متنوعی از موجودات تکسلولی را در بر میگرفت که از قابلیتها و پیچیدگیهای جدیدِ سلول یوکاریوتی برخوردار بودند.[۳۰][۳۱] تکسلولیهای بدون دیوارهٔ سلولی بسیار شکنندهاند و احتمال اینکه فسیل شوند بسیار پایین است. در صورت فسیل شدن نیز ویژگیهای معدودی برای متمایز کردن واضحِ آنها از پروکاریوتها وجود دارد: اندازه، پیچیدگی مورفولوژیکی (ریختشناسی) و (در نهایت) چندسلولی بودن. فسیلهای اولیهٔ یوکاریوتها، متعلق به اواخر دوران پالئوپروتروزوئیک، شامل میکروفسیلهای آکریتارک با ریزههای (وزیکولهای) کربندارِ نسبتاً مقاوم و طرحدار از جنس تاپانیا (Tappania) متعلق به ۱٫۶۳ میلیارد سال پیش و شویوسئائریدیوم (Shuiyousphaeridium) مربوط به ۱٫۸ میلیارد سال پیش است.[۳۱]
جایگاه لکا (یعنی ریشه) در درخت حیات یوکاریوتی همچنان بحثبرانگیز است. برخی مطالعات بر این باورند که اولین انشعاب پس از لکا بین تکتاژکان (Unikonta) و دوتاژکان (Bikonta) رخ داده است (اشتمان و کاوالیر-اسمیت، ۲۰۰۳)، یا بین بیریختان (Amorphea) و سایر یوکاریوتها به وقوع پیوسته است (آدل و همکاران، ۲۰۱۲؛ درله و لانگ، ۲۰۱۲). برخی معتقدند که اولین انشعاب در درون کاوکزیان (Excavata) رخ داده است (الجِواری و بالداوف، ۲۰۲۳).[۳۲] گروهی دیگر نیز به اولین انشعاب بین پشتتاژکان (Opisthokonta) و تمام گروههای دیگر اعتقاد دارند (سرون-رومرو و همکاران، ۲۰۲۴).[۳۳]
یادداشتها
- ↑ مارگولیس و همکارانش همچنین پیشنهاد کردند که این سلول یک باکتری اسپیروکت را نیز به عنوان همزیست به دست آورده است که اسکلت سلولی متشکل از ریزلولهها (میکروتوبولها) و توانایی حرکت را فراهم میکند؛ از جمله توانایی کشیدن کروموزومها و تقسیم آنها به دو دسته در طول میتوز یا تقسیم سلولی[۶]، با این حال، این فرضیهٔ خاص هرگز دادههای قابلتوجهی برای اثبات خود نداشت و همواره توسط جامعهٔ علمی رد شده است.[۷][۸][۹][۱۰]
منابع
- 1 2 3 McGrath, Casey (31 May 2022). "Highlight: Unraveling the Origins of LUCA and LECA on the Tree of Life". Genome Biology and Evolution. 14 (6) evac072. doi:10.1093/gbe/evac072. PMC 9168435.
- ↑ Weiss, Madeline C.; Sousa, F. L.; Mrnjavac, N.; et al. (2016). "The physiology and habitat of the last universal common ancestor" (PDF). Nature Microbiology. 1 (9): 16116. doi:10.1038/nmicrobiol.2016.116. PMID 27562259. S2CID 2997255.
- 1 2 Gabaldón, T. (October 2021). "Origin and Early Evolution of the Eukaryotic Cell". Annual Review of Microbiology. 75 (1): 631–647. doi:10.1146/annurev-micro-090817-062213. PMID 34343017. S2CID 236916203.
- 1 2 Woese, C.R.; Kandler, Otto; Wheelis, Mark L. (June 1990). "Towards a natural system of organisms: proposal for the domains Archaea, Bacteria, and Eucarya". Proceedings of the National Academy of Sciences of the United States of America. 87 (12): 4576–4579. Bibcode:1990PNAS...87.4576W. doi:10.1073/pnas.87.12.4576. PMC 54159. PMID 2112744.
- 1 2 Latorre, A.; Durban, A; Moya, A.; Pereto, J. (2011). "The role of symbiosis in eukaryotic evolution". In Gargaud, Muriel; López-Garcìa, Purificacion; Martin H. (eds.). Origins and Evolution of Life: An astrobiological perspective. Cambridge: Cambridge University Press. pp. 326–339. ISBN 978-0-521-76131-4. Archived from the original on 24 March 2019. Retrieved 27 August 2017.
- ↑ Margulis, Lynn; Chapman, Michael; Guerrero, Ricardo; Hall, John (29 August 2006). "The last eukaryotic common ancestor (LECA): Acquisition of cytoskeletal motility from aerotolerant spirochetes in the Proterozoic Eon". Proceedings of the National Academy of Sciences. 103 (35): 13080–13085. Bibcode:2006PNAS..10313080M. doi:10.1073/pnas.0604985103. PMC 1559756. PMID 16938841.
- ↑ Schaechter, Moselio (2012). "Lynn Margulis (1938–2011)". Science. 335 (6066): 302. doi:10.1126/science.1218027. PMID 22267805.
- ↑ Knoll, Andrew H. (2012). "Lynn Margulis, 1938–2011". Proceedings of the National Academy of Sciences. 109 (4): 1022. doi:10.1073/pnas.1120472109. PMC 3268288. PMID 22308528.
- ↑ Sato, Naoki (2017). "Revisiting the theoretical basis of the endosymbiotic origin of plastids in the original context of Lynn Margulis on the origin of mitosing, eukaryotic cells". Journal of Theoretical Biology. 434: 104–113. doi:10.1016/j.jtbi.2017.08.028. PMID 28870618.
- ↑ Dolan, Michael; Zook, Douglas (2012). "Lynn Margulis, 1938–2011". Symbiosis. 56: 1–3. doi:10.1007/s13199-012-0153-7.
- ↑ Williams, Tom A.; Cox, Cymon J.; Foster, Peter G.; Szöllősi, Gergely J.; Embley, T. Martin (2019-12-09). "Phylogenomics provides robust support for a two-domains tree of life". Nature Ecology & Evolution. 4 (1): 138–147. Bibcode:2019NatEE...4..138W. doi:10.1038/s41559-019-1040-x. PMC 6942926. PMID 31819234.
- ↑ O'Malley, Maureen A.; Leger, Michelle M.; Wideman, Jeremy G.; Ruiz-Trillo, Iñaki (18 February 2019). "Concepts of the last eukaryotic common ancestor". Nature Ecology & Evolution. 3 (3): 338–344. Bibcode:2019NatEE...3..338O. doi:10.1038/s41559-019-0796-3. hdl:10261/201794. PMID 30778187. S2CID 256718457.
- 1 2 Leander, B. S. (May 2020). "Predatory protists". Current Biology. 30 (10): R510–R516. Bibcode:2020CBio...30.R510L. doi:10.1016/j.cub.2020.03.052. PMID 32428491. S2CID 218710816.
- 1 2 Strassert, Jürgen F. H.; Irisarri, Iker; Williams, Tom A.; Burki, Fabien (25 March 2021). "A molecular timescale for eukaryote evolution with implications for the origin of red algal-derived plastids". Nature Communications. 12 (1): 1879. Bibcode:2021NatCo..12.1879S. doi:10.1038/s41467-021-22044-z. PMC 7994803. PMID 33767194.
- ↑ Bremer, Nico; Tria, Fernando D. K.; Skejo, Josip; Garg, Sriram G.; Martin, William F. (31 May 2022). "Ancestral State Reconstructions Trace Mitochondria But Not Phagocytosis to the Last Eukaryotic Common Ancestor". Genome Biology and Evolution. 14 (6) evac079. doi:10.1093/gbe/evac079. PMC 9185374. PMID 35642316.
- 1 2 3 4 5 6 7 8 Koumandou, V. Lila; Wickstead, Bill; Ginger, Michael L.; van der Giezen, Mark; Dacks, Joel B.; Field, Mark C. (2013). "Molecular paleontology and complexity in the last eukaryotic common ancestor". Critical Reviews in Biochemistry and Molecular Biology. 48 (4): 373–396. doi:10.3109/10409238.2013.821444. PMC 3791482. PMID 23895660.
- ↑ Makarova, Kira S.; Yutin, Natalya; Bell, Stephen D.; Koonin, Eugene V. (6 September 2010). "Evolution of diverse cell division and vesicle formation systems in Archaea". Nature Reviews Microbiology. 8 (10): 731–741. doi:10.1038/nrmicro2406. PMC 3293450. PMID 20818414.
- ↑ Martin, William; Koonin, Eugene V. (2006). "Introns and the origin of nucleus–cytosol compartmentalization". Nature. 440 (7080): 41–45. Bibcode:2006Natur.440...41M. doi:10.1038/nature04531. ISSN 0028-0836. PMID 16511485.
- 1 2 3 Horandl, E.; Speijer, D. (7 February 2018). "How oxygen gave rise to eukaryotic sex". Proceedings of the Royal Society B: Biological Sciences. 285 (1872). The Royal Society. doi:10.1098/rspb.2017.2706. PMC 5829205. PMID 29436502.
- ↑ Dacks, J.; Roger, A. J. (1999). "The first sexual lineage and the relevance of facultative sex". Journal of Molecular Evolution. 48 (6): 779–783. Bibcode:1999JMolE..48..779D. doi:10.1007/pl00013156. PMID 10229582. S2CID 9441768.
- ↑ Lane, Nick; Martin, William F. (2010). "The energetics of genome complexity". Nature. 467 (7318): 929–934. Bibcode:2010Natur.467..929L. doi:10.1038/nature09486. PMID 20962839. S2CID 17086117.
- ↑ Muro, Enrique M.; Ballesteros, Fernando J.; Luque, Bartolo; Bascompte, Jordi (2025). "The emergence of eukaryotes as an evolutionary algorithmic phase transition". PNAS. 122 (13) e2422968122. Bibcode:2025PNAS..12222968M. doi:10.1073/pnas.2422968122. PMC 12002324. PMID 40146859.
- ↑ Koonin, Eugene V. (March 2005). "The incredible expanding ancestor of eukaryotes". Cell. 140 (5): 606–608. doi:10.1016/j.cell.2010.02.022. PMC 3293451. PMID 20211127.
- ↑ Martijn, J.; Ettema, T.J.G. (February 2013). "From archaeon to eukaryote: the evolutionary dark ages of the eukaryotic cell". Biochem Soc Transactions. 41 (1): 451–7. doi:10.1042/BST20120292. PMID 23356327.
- ↑ Bell, Philip J. L. (11 May 2022). "Eukaryogenesis: The Rise of an Emergent Superorganism". Frontiers in Microbiology. 13 858064. doi:10.3389/fmicb.2022.858064. PMC 9130767.
- ↑ Karki, Sangita; Barth, Zachary K.; Aylward, Frank O. (2025). "Ancient Host-Virus Gene Transfer Hints at a Diverse Pre-LECA Virosphere". Journal of Molecular Evolution. 93 (3): 295–305. Bibcode:2025JMolE..93..295K. doi:10.1007/s00239-025-10246-8. PMC 12198294. PMID 40298963.
- ↑ Muro, Enrique M.; Ballesteros, Fernando J.; Luque, Bartolo; Bascompte, Jordi (2025). "The emergence of eukaryotes as an evolutionary algorithmic phase transition". PNAS. 122 (13) e2422968122. Bibcode:2025PNAS..12222968M. doi:10.1073/pnas.2422968122. PMC 12002324. PMID 40146859.
- 1 2 3 Bernabeu, Moisès; Manzano-Morales, Saioa; Marcet-Houben, Marina; Gabaldón, Toni (2026). "Gene ancestries reveal diverse microbial associations during eukaryogenesis". Nature. doi:10.1038/s41586-026-10639-9.
- ↑ Harley, Sadie (10 June 2026). "Microbial alliances, not mitochondria alone, may have built first eukaryotic cells". Phys.org.
- ↑ Van de Peer, Yves; Baldaufrid, Sandra L.; Doolittle, W. Ford; Meyerid, Axel (2000). "An Updated and Comprehensive rRNA Phylogeny of (Crown) Eukaryotes Based on Rate-Calibrated Evolutionary Distances". Journal of Molecular Evolution. 51 (6): 565–576. Bibcode:2000JMolE..51..565V. doi:10.1007/s002390010120. PMID 11116330. S2CID 9400485.
- 1 2 Butterfield, N.J. (2015). "Early evolution of the Eukaryota". Palaeontology. 58 (1): 5–17. Bibcode:2015Palgy..58....5B. doi:10.1111/pala.12139.
- ↑ Al Jewari, Caesar; Baldauf, Sandra L. (2023-04-28). "An excavate root for the eukaryote tree of life". Science Advances. 9 (17) eade4973. Bibcode:2023SciA....9E4973A. doi:10.1126/sciadv.ade4973. PMC 10146883. PMID 37115919.
- ↑ Cerón-Romero, Mario A.; Fonseca, Miguel M.; de Oliveira Martins, Leonardo; Posada, David; Katz, Laura A. (3 August 2022). "Phylogenomic Analyses of 2,786 Genes in 158 Lineages Support a Root of the Eukaryotic Tree of Life between Opisthokonts and All Other Lineages". Genome Biology and Evolution. 14 (8) evac119. doi:10.1093/gbe/evac119. PMC 9366629. PMID 35880421.
پیوندهای بیرونی
- جذابیت و تولیدمثل جنسی در میان آخرین نیاکان مشترک یوکاریوتیِ میکروبی ما، مجلهٔ آتلانتیک، ۱۱ نوامبر ۲۰۲۰

| میکروب |  | |
|---|---|---|
| میکروبیولوژی |
| |
| بومشناسی |
| |
| گیاهان |
| |
| دریا |
| |
| مرتبط با انسان |
| |
| فنون |
| |
| سایر |
| |
| ||

- میکروب
- باستانیان
- حوزه (زیستشناسی)
- شدیددوستها
- واژگان زیستشناسی
- گروههای پیراتباری