رانجئا
| رانجئا | |
|---|---|
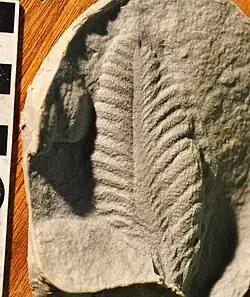 | |
| فسیل رانجئا اشنایدرهونی | |
| ردهبندی علمی | |
| فرمانرو: | نامشخص (احتمالاً جانوران یا وندوبیونتا) |
| (طبقهبندینشده): | |
| سرده: | †رانجئا (Rangea) |
| گونه نماد | |
| †رانجئا اشنایدرهونی (Rangea schneiderhoehni) گوریچ، ۱۹۲۹ | |
رانجئا (به انگلیسی: Rangea) یک فسیل برگسان متعلق به دورهٔ ادیاکاران است که دارای تقارن شعاعیِ ششگانه میباشد.[۲][۳] این جاندار، سردهٔ شاخصِ رانجئومورفها محسوب میشود.
رانجئا نخستین درشتفسیل (ماکروفسیل) پیچیده از دوران پیشینزیستی (پرکامبرین) بود که در جهان نامگذاری و توصیف شد. این جاندار، ساختاری برگمانند در مقیاس سانتیمتر تا دسیمتر داشت و مشخصهٔ آن، الگوی تکرارشوندهای از شاخههای خودمتشابه و سبک زندگیِ کفزی و بیحرکت (چسبیده به بستر) بود. فسیلهای این جاندار معمولاً بهصورت قالبهایی حفظ شدهاند که تنها ساختار برگمانند و گلبرگیِ آن (پتالودیوم) را نشان میدهند. نادر بودن و ناقص بودنِ نمونههای کشفشده، بازسازیِ ریختشناسیِ سهبعدیِ کلِ ارگانیسم را دشوار کرده است.[۴]
ساختار بدنی
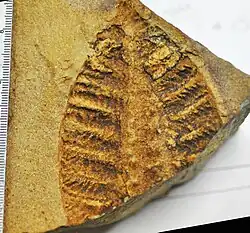
فسیلِ حفظشدهٔ رانجئا از چند پره (Vane) تشکیل شده است. هر پره شکلی برگمانند دارد و دارای مجموعهای از شیارهای فرورفته است که با زوایای مختلف از یک ناحیهٔ میانیِ برجسته و صاف به سمت بیرون امتداد یافتهاند و یکسری واحدهای هشتیشکل را به وجود میآورند که اصطلاحاً «بالشتک» (Quilt) نامیده میشوند. این بالشتکها در دو ردیف چیده شدهاند: بالشتکهای اولیه (که بلند و گلبرگمانند هستند) و بالشتکهای فرعی (که کوتاه و نیزهایشکلاند). بالشتکهای فرعی در فاصلهٔ کوتاهی از ناحیهٔ میانی محو میشوند، در حالی که بالشتکهای اولیه به سمت لبهٔ برگ گسترش یافته و در آنجا با انتهایی کند و غیرتیز باریک میشوند. بهدلیلِ فقدانِ بخشهایی از فسیلها یا حفظشدگیِ ناقص، در هیچ نمونهای نمیتوان تعداد دقیقِ بالشتکهای اولیه را شمارش کرد. رأس بالشتکها بهوسیلهٔ بخشهای گوهمانندی با بافتِ صاف یا چیندار بهطور مشخصی از هم جدا شدهاند که به این قسمت از بدن، ظاهری دالبریشکل میبخشند.[۵]
گونهها
در مجموع شش گونه از این جاندار توصیف شده است، اما امروزه تنها گونهٔ شاخصِ آن یعنی رانجئا اشنایدرهونی (Rangea schneiderhoehoni) معتبر شناخته میشود:
- R. brevior گوریچ، ۱۹۳۳ = مترادفِ R. schneiderhoehoni.
- R. arborea گلاسنر، ۱۹۵۹ = متعلق به سردهٔ آربورئا (Arborea arborea).
- R. grandis گلاسنر و وید، ۱۹۶۶ = گلاسنرینا گراندیس = متعلق به سردهٔ چارنیا (Charnia massoni).
- R. longa گلاسنر و وید، ۱۹۶۶ = متعلق به سردهٔ آکروفیاس (Akrophyllas longa).
- R. sibirica سوکولوف، ۱۹۷۲ = چارنیا سیبیریکا = چارنیا ماسونی.
زیستگاه و بومشناسی
فسیلهای رانجئا اشنایدرهونی در بخشهای کانیز و کلیپهوک از سازند دابیس و در بخش نیدرهایگن از سازند نوداوس در نامیبیا یافت شدهاند. قدمت این نهشتهها به حدود ۵۴۸ میلیون سال پیش بازمیگردد. فسیلهای رانجئا همچنین از نهشتههای ادیاکاران در منطقهٔ آرخانگلسکِ روسیه و در استرالیا گزارش شدهاند. قدمت این نمونهها حدود ۵۵۸ تا ۵۵۵ میلیون سال پیش است.[۲][۳][۶] بهنظر میرسد که رانجئا یک زندگیِ کاملاً بیحرکت و متصل به بستر داشته است.[۲]
نمونههای جدید شواهدی را نشان میدهند مبنی بر اینکه رانجئا یک برگسانِ انعطافپذیر و ساده نبوده، بلکه یک ارگانیسم مخروطیشکلِ معکوس و کوتاه با پرههای شعاعی بوده است. این پرهها بهشکلی بسیار دقیق به هم متصل میشدند، بهطوری که برجستگیهای متناظر با ردپایِ محوری در شاخههای پشتِ یک پره، دقیقاً با فرورفتگیهای میان شاخههای پشتِ پرهٔ بعدی چفت میشدند، و انتهای دورترِ پرههای منفرد، تقریباً در یک نقطه به یکدیگر میرسیدند. اگر کلِ نمونهٔ رانجئا خمیده یا تغییرشکلیافته باشد، همان نوع انحنا بر تکتک پرههای آن نیز تأثیر گذاشته است. در یکی از نمونهها، گوههای باریکی از رسوبات (به ضخامت ۱ تا ۲ میلیمتر و عمق ۵ تا ۶ میلیمتر) به درزهای میان پرههای مجاور و متصلبههم نفوذ کردهاند. این موضوع نشان میدهد که با وجودِ اینکه بخشهای جانبیِ پرهها معمولاً محکم به یکدیگر فشرده شده و با هم قالبگیری میشدند، اما پرههای مجزای ارگانیسم زنده در واقع ساختارهای مستقلی بودند که تا حد زیادی یا بهطور کامل از پرههای مجاورشان جدا بودهاند. انشعاباتِ بسیار منظم و پیچیدهٔ عناصر ساختاریِ پره، یک ویژگی مشترک در آنهاست و احتمالاً بازتابدهندهٔ پارامترهای محیطیِ غیرمعمولی در دریاهای اوایل دورهٔ ادیاکاران است.[۷]
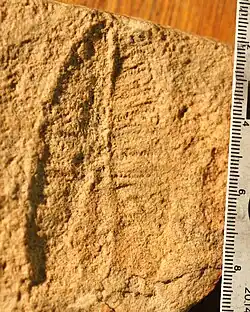
رانجئا احتمالاً دارای یک ساختار اسکلتمانندِ صلب یا نیمهصلب بوده که از کمانش یا فشردهشدنِ آن جلوگیری میکرده و یکپارچگیِ جاندار را در طول حیاتش حفظ مینموده است. تصور میشود که نوعِ حفظشدگیِ فسیلهای ادیاکاران با کمک بسترهای میکروبی که کف دریا را میپوشاندند، تسهیل شده است. فراوانیِ بالایِ کوارتزِ یافتشده در این نمونهها، با پر شدنِ حفرههای درونیِ ارگانیسم توسط کوارتزِ آواری و حفظشدگیِ آن در ماسهسنگ همخوانی دارد.[۴]
ویژگی متمایزِ دیگرِ رانجئا، خوشهبندیِ چندین پره در قالبِ یک ساختارِ مرکب و بههمپیوسته است. در هر خوشه، تمامِ پرههای تشکیلدهنده، شباهتی در ریختشناسیِ بالشتکها و یکنواختیِ چیدمانِ آنها نشان میدهند. افزون بر این، این خوشهها یکپارچگیِ خود را حتی در نمونههای بادبیزشده (جداشده بر اثر جریان آب) حفظ کردهاند؛ موضوعی که دلالت بر ثبات و مقاومتِ خوشه در برابر تنشهای مکانیکی دارد. رانجئا بهعنوان یک جاندارِ کفزیِ بیحرکت بازسازی شده است که بدنش از سه پرهٔ ناودانیشکلِ متراکم تشکیل میشده که توسط یک غلافِ مخاطی احاطه شده بودند. حفظشدگیِ سهبعدی و بیواستراتینومیِ[الف] این فسیلها نشان میدهد که رانجئا در زمان حیاتِ خود بهطور کامل درون ماسه فرورفته بود و ماسه، حفرههای پرههای ناودانیشکلِ آن را پر میکرده است. رانجئای زنده در درون رسوبات وضعیتی کوژِ رو به پایین (تحدب به سمت پایین) داشت و لبههای هر سه پرهٔ آن از رسوبات بالاتر میآمد. هر پره از دو غشا تشکیل شده بود، و فضای میان این غشاها متورم و دارای بالشتکهای فراکتالی بود. این بالشتکها احتمالاً بهصورت هیدروستاتیک (توسط فشار سیال) پشتیبانی میشدند. قالبگیریِ مرکبِ این پرهها نشان میدهد که مرزهای میانِ بالشتکها، معادلِ ساختارهایی هستند که آنقدر سفت بودهاند که بتوانند به پوششِ خارجیِ جاندار فشار بیاورند.[۵]
گرگوری رتالاک (Gregory Retallack) بر این باور بود که رانجئا یک فسیلِ دریاییِ کمعمقِ کفزی قابل قیاس با قلمهای دریایی نیست، بلکه یک جلبک یا قارچ متعلق به پهنههای جزر و مدی یا محیطهای رودخانهای است؛[۹][۱۰][۱۱] با این حال، نظریهٔ او دربارهٔ زیواگان ادیاکاران بسیار بحثبرانگیز است و مخالفان زیادی دارد.[۱۲][۱۳][۱۴]
جستارهای وابسته
یادداشتها
پانویس
- ↑ Chen, Zhe; Zhou, Chuanming; Xiao, Shuhai; Wang, Wei; Guan, Chengguo; Hua, Hong; Yuan, Xunlai (2014). "New Ediacara fossils preserved in marine limestone and their ecological implications". Scientific Reports. 4 4180. Bibcode:2014NatSR...4.4180C. doi:10.1038/srep04180. PMC 3933909. PMID 24566959.
- 1 2 3 Vickers-Rich, P.; Ivantsov, A. Y.; Trusler, P. W.; Narbonne, G. M.; Hall, M.; Wilson, S. A.; Greentree, C.; Fedonkin, M. A.; Elliott, D. A.; Hoffmann, K. H.; Schneider, G. I. C. (2013). "Reconstructing Rangea: New Discoveries from the Ediacaran of Southern Namibia". Journal of Paleontology. 87 (1): 1–15. Bibcode:2013JPal...87....1V. doi:10.1666/12-074R.1. S2CID 130820365.
- 1 2 Ivantsov, A. Yu.; Leonov M. V. (2009). The imprints of Vendian animals - unique paleontological objects of the Arkhangelsk region (in Russian). Arkhangelsk. p. 91. ISBN 978-5-903625-04-8.
{{cite book}}: نگهداری یادکرد:مکان بدون ناشر (رده) - 1 2 Sharp, Alana C.; Evans, Alistair R.; Wilson, Siobhan A.; Vickers-Rich, Patricia (2017). "First Non-destructive Internal Imaging of Rangea, an Icon of Complex Ediacaran Life". Precambrian Research. 299: 303–308. Bibcode:2017PreR..299..303S. doi:10.1016/j.precamres.2017.07.023.
- 1 2 Grazhdankin, Dima; Seilacher, Adolf (2005). "A Re-examination of the Nama-type Vendian Organism Rangea schneiderhoehni". Geological Magazine. 142 (5): 571–582. Bibcode:2005GeoM..142..571G. doi:10.1017/S0016756805000920.
- ↑ Dzik, J. (2002). "Possible ctenophoran affinities of the precambrian "sea-pen" Rangea". Journal of Morphology. 252 (3): 315–334. Bibcode:2002JMorp.252..315D. doi:10.1002/jmor.1108. PMID 11948678. S2CID 22844283.
- ↑ Jenkins, Richard J. F. (1985). "The Enigmatic Ediacaran (late Precambrian) Genus Rangea and Related Forms". Paleobiology. 11 (3): 336–355. Bibcode:1985Pbio...11..336J. doi:10.1017/S0094837300011635.
- ↑ "Taphonomy". Encyclopedia Britannica (in English). Retrieved 2023-10-26.
- ↑ Retallack, G.J. (2020). "Boron paleosalinity proxy for deeply buried Paleozoic and Ediacaran fossils". Palaeogeography, Palaeoclimatology, Palaeoecology. 540 (1) 109536: 279–284. Bibcode:2020PPP...54009536R. doi:10.1016/j.palaeo.2019.109536. S2CID 212771632.
- ↑ Retallack, G.J. (2019). "Interflag sandstone laminae, a novel sedimentary structure, with implications for Ediacaran paleoenvironments". Sedimentary Geology. 379: 60–76. Bibcode:2019SedG..379...60R. doi:10.1016/j.sedgeo.2018.11.003. S2CID 135301261.
- ↑ Retallack, G.J. (1994). "Were the Ediacaran fossils lichens?". Paleobiology. 20 (4): 523–544. Bibcode:1994Pbio...20..523R. doi:10.1017/S0094837300012975. S2CID 129180481.
- ↑ Waggoner, B. M. (1995). "Ediacaran Lichens: A Critique". Paleobiology. 21 (3): 393–397. Bibcode:1995Pbio...21..393W. doi:10.1017/S0094837300013373. JSTOR 2401174. S2CID 82550765.
- ↑ Waggoner, B.; Collins, A. G. (2004). "Reductio Ad Absurdum: Testing The Evolutionary Relationships Of Ediacaran And Paleozoic Problematic Fossils Using Molecular Divergence Dates" (PDF). Journal of Paleontology. 78 (1): 51–61. Bibcode:2004JPal...78...51W. doi:10.1666/0022-3360(2004)078<0051:RAATTE>2.0.CO;2. S2CID 8556856.
- ↑ Nelsen, M. (2019). "No support for the emergence of lichens prior to the evolution of vascular plants". Geobiology. 18 (1): 3–13. doi:10.1111/gbi.12369. PMID 31729136.
برای مطالعهٔ بیشتر
- Glaessner, Martin F.; Wade, Mary (1966). "The late Precambrian fossils from Ediacara, South Australia". Palaeontology. 9 (4): 599–628.
- Gürich, Georg (1930). "Über den Kuibis-Quarzit in Südwestafrika". Zeitschrift der Deutschen Geologischen Gesellschaft. 82: 637. doi:10.1127/zdgg/82/637a.
- ادیاکاران
- پرکامبرین آفریفا
- زندگی در ادیاکاران
- سنگوارههای توصیفشده در ۱۹۲۹ (میلادی)
- فسیلهای نامیبیا
- نامیبیا