وندوبیونتا
| وندوبیونتا | |
|---|---|
 | |
| ژرفنمایی از زیواگان ادیاکاران در موزه تاریخ طبیعی فیلد در شیکاگو، ایلینوی | |
| ردهبندی علمی | |
| (طبقهبندینشده): | وندوبیونتا (Vendobionta) |
| زیرآرایهها | |
| |
| مترادف | |
| |
وندوبیونتها (Vendobionts) یا وندوزوآئنها (Vendozoans) (با نام علمی Vendobionta) یک کلاد پیشنهادی بسیار سطحبالا و منقرضشده از ارگانیسمهای کفزی است که بخش عمدهای از ارگانیسمهای زیواگان ادیاکاران را تشکیل میدادند. این یک گروه فرضی است. آنها احتمالاً قدیمیترین جانورانی بودهاند که در حدود ۵۸۰ میلیون سال پیش، در دوره ادیاکاران (که پیشتر وندین نامیده میشد)، در زمین میزیستند. آنها مدت کوتاهی پس از رویداد معروف به انفجار کامبرین، با پیدایش جانوران جدیدی که خویشاوندی و ارتباط آنها با جانوران امروزی قابلتشخیصتر بود، منقرض شدند. این احتمال وجود دارد که کلِ زیواگان ادیاکاران یک کلاد تکنیایی نباشد و لزوماً هر سردهای که در زیرآرایههای آن قرار میگیرد، یک جانور محسوب نشود.
این گروه زیستشناختی بهطور گسترده مورد پذیرش مجامع علمی نیست؛ اعتبار آن بهدلیل نیاز به گمانهزنیهای وسیع برای اثبات روابط فیلوژنتیک (تبارزایی) میان چنین گروههای منقرضشده و باستانی، محدود است. این فرضیه توسط زمینشناس آلمانی، آدولف زایلاخر، مطرح شد. او حتی در ارتباط این گروه با فرمانرو جانوران یا ماهیتِ پرسلولی آنها تردید دارد — این گروه ممکن است بهطور مستقل منشأ گرفته باشند و میتوانستند فرمهای تکسلولیِ غولپیکری باشند. همچنین پیشنهاد شده است که آنها ممکن است از گزندهتباران یا بندتباران (فرضیه بندتباران) بوده باشند؛ یا شاید یک قارچ، یک آغازیِ کلونیساز، یک جلبک یا گلسنگ؛ یا گروهی جداشده از تمامیِ جانوران امروزی باشند. تنها اجماع کنونی این است که آنها نمیتوانستند فتوسنتزکننده باشند. در هر حال، آنها نیز مانند اکریتارکها معماهایی فرگشتی محسوب میشوند و احتمالاً یک فرمانروی کاملاً مستقل و منقرضشده بودهاند.[۱]
ویژگیها
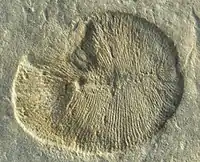
در توصیف این گروه فرضی، ویژگیهایی پیشنهاد شده است که احتمالاً در میان تمامیِ گروههای اولیهٔ ارگانیسمهای ادیاکاران مشترک بوده است:
ساختار
بدن نسبتاً نرم و فاقد بخشهای سختی مانند زره یا اسکلت. از نظر ظاهری، آنها به تشکهای بادیِ نازکی تشبیه شدهاند که عموماً مسطح بوده و با مایعی پُر میشدند که مایع پلاسمودیال (Plasmodial fluid) نام گرفته است. در درون، آنها میتوانستند دارای یک محفظهٔ یکپارچه (سنسیشیوم) باشند[۲] و در بیرون، چندین نوع چینخوردگی یا بخشبندی (موازی، شعاعی یا هممرکز) از خود نشان میدادند. همچنین احتمالاً دارای نوعی دیوارهٔ سلولی (مانند گیاهان یا قارچها) بودهاند که در برابر انقباض یا فشردگی مقاومت میکرده و بدین ترتیب باعثِ تسهیل در روندِ فسیلشدنِ آنها میشده است.[۳]
زیستگاه
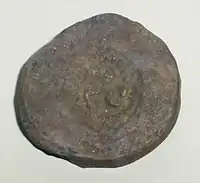
همهٔ آنها دریایی و احتمالاً کفزی بودهاند و در بستر دریا، از محیطهای زیرکشندی (Subtidal) کمعمق تا عمیق، زیست میکردند. در نهایت مشخص شد که حتی مدوزوئیدها (Medusoids) —که پیشتر تصور میشد شناگر بودهاند— در واقع مانند پولیپها،[۴] یا دیسکهای کفزیِ متصل به بستر دریا، یا موجوداتی درونکفزیِ نیمهمدفون بودهاند. این نوع زیستگاه باعث شد تا نامِ مصطلحِ «باغ ادیاکارا» به آنها داده شود.
حفظشدگیِ فراوان ارگانیسمهای ادیاکاران، با وجود داشتنِ بدنهای نرم، بسیار شگفتانگیز است؛ این امر تقریباً بهطور قطع نشاندهندهٔ عدم وجود جاندارانِ نقبزن در رسوباتِ زیستگاهِ آنهاست.[۵]
توانایی حرکت
بیشترِ آنها فاقد تواناییِ جابهجایی بودند. قدیمیترینِ این گروهها هیچگونه تواناییِ حرکتی نداشتند؛ دلیل این امر، فقدان کاملِ هرگونه بههمریختگی در خاکستر و رسوباتِ اطراف آنها در طول فرایندِ فسیلشدن است.[۳] با توجه به سادگیِ ساختاریِ آنها، تصور میشود که فاقدِ سیستم عضلانی یا عصبی بودهاند و بسیاری از آنها بهصورت ثابت (Sessile) و چسبیده به یک سطح زندگی میکردند. با این حال، در نظر گرفته میشود که تواناییِ حرکت در گروه پروآرتیکولاتا پدیدار شده و بهشکلِ حرکتی کُند و لغزان بوده است؛ احتمالاً نمایندگان متحرکِ آنها مانند اسپریگینا بر روی فرشی از میکروارگانیسمها میچریدند. این ویژگیِ پروآرتیکولاتاها، اصلیترین استدلالی است که بر اساسِ آن، وندوبیونتها (در صورت پذیرش بهعنوان یک کلاد) به فرمانرو جانوران نسبت داده میشوند؛ هرچند تکاملِ سیستم عصبی آنها مستقل از سایر جانوران صورت گرفته است.[۶]
رژیم غذایی
هیچ مدرک قطعیای دال بر وجودِ دهان، مقعد، یا سیستم گوارشی در آنها وجود ندارد، اگرچه برخی ساختارهای درونی شناسایی شده است. تصور میشود که تغذیهٔ آنها میتوانسته از طریق پدیدهٔ اسمز (گذرندگی) صورت گرفته باشد،[۷] دقیقاً مانند فرایندی که در قارچها یا باکتریها دیده میشود. وجودِ شیارها، چینخوردگیها یا بخشبندیهایِ متعدد، مساحتِ سطحِ بدن را که برای جذبِ اسمزیِ مواد مغذی ضروری است، بهطور قابلتوجهی افزایش میداده است. همچنین پیشنهاد شده بود که آنها ارگانیسمهایی فتوسنتزکننده بودهاند؛ با این حال، آنها در اعماقِ مختلفی زیست میکردند که برخی از آنها (مانند عمق ۲۰۰ متری) به دور از نفوذ نور لازم برای فتوسنتز بوده است. بهدلیل عدمِ وجودِ جای گازگرفتگی و بریدگی در فسیلهای ادیاکاران، نتیجهگیری شده است که وندوبیونتها نه شکارچی بودهاند و نه در معرض حملهٔ شکارچیان قرار داشتند؛ موضوعی که میتوانسته آنها را به طعمههایی بیدفاع برای شکارچیان دوره کامبرین تبدیل کند.
رشد
رشدِ آنها با حفظِ شکلِ ظاهریشان صورت میگرفته است و بدون توجه به اندازهشان، همواره تعداد یکسانی از بندها را حفظ میکردند؛ با این تفاوت که این بندها رفتهرفته به بخشهای کوچکتری تقسیم میشدند. تصور میشود که آنها مرحلهٔ جنینی و رویانی نداشتهاند. اگر چنین باشد، آنها گروهی کاملاً متفاوت از سایرِ جانوران بودهاند.[۶]
تولیدمثل
بهنظر میرسد تولیدمثلِ وندوزوآئنها بهصورت غیرجنسی بوده است و هیچگونه غدد جنسی (اندامهای جنسی) در آنها شناسایی نشده است.
قدمت و پراکندگی
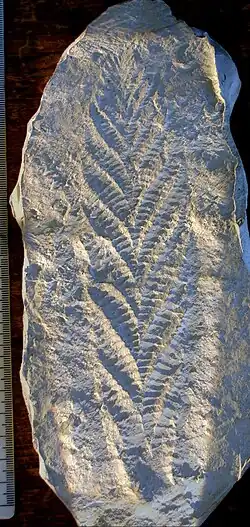
نخستین گونههایی که در حدود ۵۷۸ میلیون سال پیش ظاهر شدند، فروندومورفها (برگسانان - پتالونامائه) و مدوزوئیدهای ساده بودند که بهعنوان قدیمیترین اَشکالِ حیاتِ پیچیده در نظر گرفته میشوند. زیواگان ادیاکاران از نظرِ کرونولوژیک (ترتیب زمانی) به سه جامعه (مجموعه) تقسیم میشوند:
- مجموعهٔ آوالون (Avalon association) قدیمیترین بستر فسیلی است. این مجموعه در صخرههای شبهجزیره آوالون در نیوفاندلند یافت شده (۵۷۸–۵۶۰ میلیون سال پیش) و نشاندهندهٔ یک زیستگاهِ پسایخچالی در اعماق آب است. ارگانیسمهای آوالونیِ کاملاً کفزی بوده و (با غلبهٔ رانجئومورفها) در عمقِ یک کیلومتری، بسیار پایینتر از منطقهٔ نورگیر (Photic zone) زندگی میکردند؛ موضوعی که ثابت میکند آنها جلبک یا گلسنگ نبودهاند.[۳] زیواگان آوالون پراکندگیِ گستردهای در تمام کنامهای دریاییِ سراسر جهان یافتند: پیدایشِ ناگهانی ارگانیسمهای ماکروسکوپی در رویدادی که انفجار آوالون نام گرفت، ۳۷ میلیون سال پیش از انفجار کامبرین رخ داد. همین ارگانیسمها —یعنی فروندومورفها و مدوزوئیدها— آخرین وندوبیونتهایی بودند که در جریانِ انقراضِ این گروه در دورهٔ کامبرین، ناپدید شدند.
- ارگانیسمهای دارای تقارن دوطرفه یا بیلاترالومورفها (پروآرتیکولاتا) در حدود ۵۵۵ میلیون سال پیش ظاهر شدند و محدودیتهای محیطیِ بیشتری داشته و در دریاهای گرمسیری میزیستند.[۸] مجموعهٔ دریای سفید (White Sea association، مربوط به ۵۶۰–۵۵۰ میلیون سال پیش در روسیه و استرالیا)، تنوعِ بزرگی از ردپاهای فسیلیِ جدید را به نمایش گذاشت. بیشترین میزانِ تنوع در میانِ صخرههایی دیده میشود که در آبهای کمعمقِ پُرنور و از نظرِ انرژیِ فعال تهنشین شده بودند.[۹]
- آخرین مجموعهٔ ادیاکاران، مجموعهٔ ناما (Nama، مربوط به ۵۵۰–۵۴۱ میلیون سال پیش در نامیبیا) است که در آن کاهشِ آشکاری در تنوع زیستی دیده میشود؛ اتفاقی که پیشدرآمدی بر انقراضِ عظیمِ زیواگان ادیاکاران محسوب میشود. پیش از پایان دوره ادیاکاران، پروآرتیکولاتاها و تریلوبوزوآها از پیش منقرض شده بودند؛ و آخرین بازماندگانِ وندوبیونتها نیز با ورودِ جانورانِ انفجار کامبرین ناپدید شدند.[۱۰]
آرایهشناسی
طبقهبندیِ این ارگانیسمها بسیار بحثبرانگیز است. بهعنوان یک گروهِ واحد، آنها عمدتاً در فرمانرو جانوران جای گرفتهاند، اما توسط برخی دیگر بهعنوان آغازیان، قارچها، گلسنگهای زمینی، یا حتی یک فرمانرویِ کاملاً مستقل در نظر گرفته میشوند. کسانی که آنها را گروههایی متفاوت و بیارتباط با یکدیگر میدانند، پروآرتیکولاتاها را بهصورت پایهای (Basal) در میان دوسوئیان (که این نظر در میان نظریههای جایگزین، بیشترین حمایت را دارد) یا بهعنوان پیش-بندپایان طبقهبندی میکنند؛ پتالونامها را در کنار گزندهتبارانی چون قلمهای دریایی یا بهعنوان شانهدارتباران دستهبندی میکنند؛ و تریلوبوزوآها و مدوزوئیدها را بهعنوان عروسهای دریاییِ فاقدِ کنیدوبلاست در نظر گرفته و در شاخهٔ گزندهتباران (Cnidaria) یا کیسهتنان (Coelenterata) قرار میدهند. در نهایت، با توجه به قدمتِ بسیار باستانیِ آنها، گروهی دیگر تدوینِ یک درخت تبارزایی (فیلوژنی) یا ارتباط دادنِ مستقیمِ این ارگانیسمها به جانوران راستین (Eumetazoa) را اقدامی کاملاً حدسومانی تلقی میکنند.
مقایسه با آغازیان
پیشنهاد شده است که وندوبیونتها ممکن است از پروتوزوآهای آمیبشکل یا آغازیان سرچشمه گرفته باشند و برای مثال، شبیه به زینوفیوفورها (Xenophyophores) باشند[۱۱] که روزندارانی تکسلولی هستند که به اندازههای بزرگی (تا ۲۰ سانتیمتر) دست یافتهاند؛ بنابراین، آنها میتوانستند ارگانیسمهایی تکسلولی باشند که با بهرهگیری از عدم حضور شکارچیان، به اندازههای ماکروسکوپی (قابل دیدن با چشم غیرمسلح) دست یافتند؛ چرا که اندازهٔ تمامِ گروههای آنها (از چند میلیمتر تا بیش از یک متر طول) بهلطفِ افزایش سطح اکسیژن، بزرگ شده بود. در چنین حالتی، این فرصت فراهم میشود که آنها را نه بهعنوان جانور، قارچ یا گیاه، بلکه بهعنوان یک فرمانرویِ مستقل و منقرضشده در نظر گرفت.[۱] با این حال، مطالعاتِ ساختاری روی این فسیلها تاکنون هیچ نشانهای از وجودِ صدف، پوسته (Testa) یا کاراپاسِ ساختهشده از مواد آلی (اسکلروتیزهشده)، بههمچسبیده (Agglutinated) یا معدنیسازیشده —که وجودِ آنها در این فرضیه الزامی است— نشان ندادهاند.[۱۲]
همچنین پیشنهاد شده است که زیواگان ادیاکاران ممکن است از ارگانیسمهای کلونیساز تشکیل شده باشند و درجهای میانی از فرگشت میان آغازیان و جانوران باشند.[۱۳] با این حال، پیچیدگیِ ریختشناختیِ آنها و فقدانِ لایههای استروماتولیت یا سایر ساختارهای میکروبی،[۱۴] علاوه بر شواهدی دال بر چندسلولی بودنشان (همانطور که در فرمهای دیسکیشکل مانند آسپیدلا (Aspidella) دیده میشود)، نشان میدهد که آنها کلونیساز نبودهاند.[۳]
مقایسه با کیسهتنان
تمامی وندوبیونتها، بهجز پروآرتیکولاتاها، توسط برخی از محققان بر اساس شباهتهای ریختشناختی، در شاخه گزندهتباران قرار داده شدهاند؛ اگرچه تفاوتهایی نیز در میان آنها توصیف شده است.
شباهتها
پتالونامائه ویژگیهای ساختاری اساسیِ خود را با گزندهتبارانِ راسته قلم دریایی (قلمدریاییسانان) به اشتراک میگذارند. بهطور مشابه، ردِ فسیلهای بهجایمانده از عروسهای دریایی امروزی و ردِ مدوزوئیدهای حلقویشکلِ دوران پیشینزیستی (ادیاکاران)، شباهتهای کلیای در آرایش و موقعیت ساختارهای شعاعی و هممرکز و همچنین یک محور برجستهٔ مرکزی نشان میدهند.
تفاوتها
قلمهای دریاییِ امروزی آثار فسیلیای تولید میکنند که نسبت به فسیلهای پیشینزیستی، بیشکلتر و نامنظمترند. در حالی که در مدوزوئیدها، حلقههای هممرکز و شیارهای شعاعی در فسیلهای پیشینزیستی بسیار پرشمارند، فسیلهای بهشدت چینخورده یا تغییرشکلیافته در مقایسه با ردِ عروسهای دریاییِ مدرن نادر هستند. این امر میتواند به این معنا باشد که ارگانیسمهای ادیاکاران، با وجود اینکه فاقد بخشهای سخت بودند، بدنهایی سفتتر یا محکمتر از بسیاری از گزندهتبارانِ مدرن با اندازه مشابه داشتهاند. بسیاری از فسیلهای ادیاکاران هیچ همتایی در میان گونههای امروزی ندارند. سادگی ساختاریِ آثار بهجایمانده از گونههای ادیاکاران و گزندهتباران نشان میدهد که شباهتهای متقابل آنها ممکن است ناشی از فرگشت همگرا باشد؛ با این حال، ارتباطات تبارشناختی (فیلوژنتیک) احتمالی میان آنها را نیز نمیتوان بهطور کامل رد کرد.[۱۵]
تفاوت با پتالونامائه
تفاوتهای ریختشناختیِ مهمی در اینجا به چشم میخورد. قلمهای دریاییِ امروزی در واقع کلونیهایی از پولیپها هستند؛ آنها از یک پولیپِ منفرد رشد میکنند که پس از از دست دادنِ شاخکهایش، به محورِ کلونی تبدیل میشود و سایر پولیپهای شاخکدار از آن رشد میکنند. آنها همچنین تا حد زیادی قادر به انجام برخی حرکات هستند. در مقابل، پتالونامها کاملاً بیحرکت هستند، بهنظر نمیرسد که یک کلونی باشند، و با توجه به شکل ساده و مسطحشان، بخشبندی بدنشان و فقدانِ دهان، مقعد و شاخک، بیشتر به پروآرتیکولاتاها نزدیک بودهاند. علاوه بر این، در پتالونامها بهجای یک محور، معمولاً یک شیارِ (سوتور) میانی وجود دارد که اگر بخشها بهصورت متناوب قرار گرفته باشند، ممکن است حالتی زیگزاگ به خود بگیرد. تحلیلِ رشد و نموِ فسیلهای چارنیا (Charnia) از طریق تصویربرداری لیزری از نمونهٔ اصلی، نشان میدهد که این جاندار نمیتواند ارتباطی با گزندهتباران مدرن مانند قلمهای دریایی (که مدتها با آن مقایسه میشد) داشته باشد، زیرا آنها دارای قطبیتهای رشد متضادی با یکدیگر هستند.[۱۶]
تفاوت با مدوزوئیدها
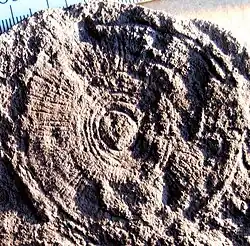
تفاوتهای ریختشناختیِ بارزی میانِ عروسهای دریایی (با شکلِ کروی و ژلاتینیِ خود) و مدوزوئیدهای مسطح و دیسکشکل وجود دارد. مدوزوئیدها دارای برجستگی بیشتری در سمت پشتی (Dorsal) و ساختاری محکمتر هستند که نشاندهندهٔ وجود یک دیوارهٔ سختِ احاطهکنندهٔ بدن است. میتوان گفت که هیچ مدرکی دال بر اینکه مدوزوئیدها دارای ویژگیهای زیستشناختیِ مشترک با کیسهتنان بودهاند وجود ندارد؛ نه دهانی دیده میشود و نه دیوارهٔ بدنی دولایهای که یک حفرهٔ واحد را در بر بگیرد. این موضوع، در کنار شواهدِ وجود یک دیوارهٔ خارجی صلب، به تردیدهای اخیر پیرامونِ این تصور که فونای ادیاکاران تحت سلطهٔ کیسهتنانِ نرمتن بوده است، میافزاید.[۱۷]
مقایسه با بندتباران
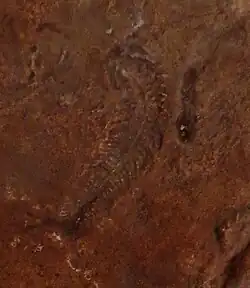
پروآرتیکولاتاها با جانورانِ بندبندِ مدرن مانند بندپایان یا کرمهای حلقوی مقایسه شدهاند. با این حال، سایر ویژگیهای آناتومیکِ پروآرتیکولاتاها —از جمله عدم وجود یک بخشبندیِ (سگمنتبندی) واقعاً کامل، عدم وجود اندامهای حرکتیِ مفصلدار، و هرگونه زائدهٔ جانبی دیگر— با این تفسیر در تضاد است. بدن پروآرتیکولاتاها از دو ردیف «نیمهبندِ» (ایزومر) یکسان —چپ و راست— در طولِ محور طولیشان تشکیل شده بود که با آناتومیِ جانداران بندبند مطابقت ندارد. این نوع از تقارن در جانوران متداول نیست؛ در عوض، در سایر وندوبیونتها، آغازیان، کلونیهای چندسلولی و غالباً در گیاهان مشاهده شده است.[۱۸]
بهطور کلی، وندوبیونتها در حال حاضر بهعنوان گروهی جدا از جانوران تعریف میشوند که منشأ مشترکِ اثباتشدهای با آنها ندارند. با این حال، طرفدارانِ جانور دانستنِ آنها، کشفِ مسیرها و ردپاهایی که توسط برخی از پروآرتیکولاتاها برجا مانده (که نشان از توانایی جابهجایی دارد) را دلیلی قاطع بر ارتباطِ آنها با متازوآها (جانوران) میدانند.[۱۸]
مقایسه با قارچها
این فرضیه مطرح شده است که ارگانیسمهای ادیاکاران (مانند فروندومورفها یا مدوزوئیدها) ممکن است با قارچها (قارچ) یا ارگانیسمهای قارچمانندِ دیگر (کپکهای مخاطی) ارتباط داشته باشند؛ این فرض بر پایهٔ ویژگیهای مشترکی چون چندسلولی بودن، فقدان تواناییِ حرکت، رشدِ نامحدود، تغذیهٔ اسمزتروفیک (جذب مواد مغذی بهصورت محلول)، و مقاومت در برابر چروکیدگیِ تافونومیک (که فسیلشدنِ آنها را بهخاطر وجود دیوارهٔ سلولی تسهیل میکرده است) بنا شده است.[۳] با این حال، هیچ شواهدی از توسعهٔ میسلیوم (رشتههای قارچی)، یا حضور اسپورانژیوم (هاگدان) یا اندامهای بارده یافت نشده است. در موردِ بسیاری دیگر از فسیلهای ادیاکاران، در نظر گرفتنِ یک مدل قارچی آشکارا نامناسب است.
منابع
- 1 2 Seilacher, A. (1992). "Vendobionta and Psammocorallia: Lost constructions of Precambrian evolution". Journal of the Geological Society (abstract). 149 (4). London, UK: Geological Society: 607–613. Bibcode:1992JGSoc.149..607S. doi:10.1144/gsjgs.149.4.0607. S2CID 128681462. Retrieved June 21, 2007.
- ↑ Seilacher, A.; Grazhdankin, D.; Legouta, A. (2003). "Ediacaran biota: The dawn of animal life in the shadow of giant protists". Paleontological Research. 7 (1): S. 43–54. doi:10.2517/prpsj.7.43. S2CID 85146476.
- 1 2 3 4 5 Peterson, Kevin J.; Waggoner, Ben; Hagadorn, James W. (1 February 2003). "A fungal analog for Newfoundland Ediacaran fossils?". Integrative and Comparative Biology. 43 (1): 127–136. doi:10.1093/icb/43.1.127. PMID 21680417.
- ↑ Smith, Dave (1999). "Cyclomedusa". Vendian. UC Museum of Paleontology. UC Berkeley.
- ↑ Stanley, S.M. (1973). "An ecological theory for the sudden origin of multicellular life in the Late Precambrian". Proceedings of the National Academy of Sciences. 70 (5): 1486–1489. Bibcode:1973PNAS...70.1486S. doi:10.1073/pnas.70.5.1486. PMC 433525. PMID 16592084. Retrieved June 21, 2007.
{{cite journal}}: نگهداری یادکرد:خدمت بایگانی منسوخ (رده) - 1 2 McMenamin, M.A.S. (1998) [1986]. The Garden of Ediacara: Discovering the first complex life. Columbia University Press. ISBN 978-0-231-50030-2. شابک ۹۷۸۰۲۳۱۱۰۵۵۹۰
- ↑ Laflamme, Marc; Shuhai, Xiao; Kowalewski, Michał (2009). "Osmotrophy in modular Ediacara organisms". Proceedings of the National Academy of Sciences. 106 (34): 14438–14443. doi:10.1073/pnas.0904836106. PMC 2732876. PMID 19706530.
- ↑ Waggoner, Ben (1 February 2003). "The Ediacaran biotas in space and time". Integrative and Comparative Biology. 43 (1): 104–113. CiteSeerX 10.1.1.491.4910. doi:10.1093/icb/43.1.104. PMID 21680415.
- ↑ Dornbos, Stephen Q.; Clapham, Matthew E.; Fraiser, Margaret L.; la Flamme, Marc (2012). "Chapter 5: Lessons from the fossil record: The Ediacaran radiation" (PDF). In Solan, Martin; Aspden, Rebecca J.; Paterson, David M. (eds.). Marine Biodiversity and Ecosystem Functioning (1st ed.). Oxford University Press. Retrieved 18 Dec 2022.
- ↑ The Ediacara biota and first mass extinction of metazoan life (video). National Museum of Natural History. Smithsonian Institution. 2016 – via YouTube.
- ↑ Zhuravlev, A.Y. (1993). "Were Ediacaran Vendobionta multicellulars?". Neues Jahrbuch für Geologie und Paläontologie. 190 (2–3): 299–314. doi:10.1127/njgpa/190/1993/299.
- ↑ Waggoner, B.M. (1998). Three-dimensional anatomy and microstructure of some simple "medusoids" from the Vendian of Siberia. Geological Society of America (abstract). Prog. 3034.
- ↑ Bergström, J. (1991). "Metazoan evolution around the Precambrian-Cambrian transition". In Simonetta, A.M.; Conway Morris, S. (eds.). The Early Evolution of Metazoa and the Significance of Problematic Taxa. Cambridge, UK: Cambridge University Press. pp. 25–34.
- ↑ Hagadorn, James W.; Bottjer, David J. (1997). "Wrinkle structures: Microbially mediated sedimentary structures common in subtidal siliciclastic settings at the Proterozoic-Phanerozoic transition". Geology. 25 (11): 1047. Bibcode:1997Geo....25.1047H. doi:10.1130/0091-7613(1997)025<1047:WSMMSS>2.3.CO;2.
- ↑ Norri, Richard D. (October 1989). "Cnidarian taphonomy and affinities of the Ediacara biota". Lethaia. 22 (4): 381–393. Bibcode:1989Letha..22..381N. doi:10.1111/j.1502-3931.1989.tb01439.x.
- ↑ Antcliffe, Jonathan B.; Brasier, Martin D. (January 2008). "Charnia at 50: Developmental models for Ediacaran fronds". Palaeontology. 51 (1): 11–26. Bibcode:2008Palgy..51...11A. doi:10.1111/j.1475-4983.2007.00738.x. S2CID 83486435.
- ↑ Crimes, T.P.; Insole, A.; Williams, B.P.J. (June 1995). "A rigid-bodied Ediacaran biota from Upper Cambrian strata in Co. Wexford, Eire". Geological Journal. 30 (2): 89–109. Bibcode:1995GeolJ..30...89C. doi:10.1002/gj.3350300202.
- 1 2 Ivantsov, A.Yu. (2013). "Trace fossils of precambrian metazoans "Vendobionta" and "Mollusks"". Stratigr. Geol. Correl. 21 (3): 252. Bibcode:2013SGC....21..252I. doi:10.1134/S0869593813030039. S2CID 128638405.
پیوند به بیرون
- Dunn, F.S.; Liu, A.G.; Donoghue, P.C. (2017). "Ediacaran developmental biology". Biological Reviews. 93 (2): 914–932. doi:10.1111/brv.12379. PMC 5947158. PMID 29105292. S2CID 4706526.
- آرایهشناسی
- ادیاکاران