زیستکره ژرف
زیستکره ژرف بخشی از زیستکره است که در زیر چند متر نخست سطح خشکی و بستر دریا قرار دارد. این زیستکره تا ۱۰ کیلومتر (۶٫۲ مایل) نخستین نشانههای وجود حیات در اعماق زمین از مطالعات میدانهای نفتی در دههٔ ۱۹۲۰ به دست آمد، اما تا زمانی که در دههٔ ۱۹۸۰ روشهایی برای جلوگیری از آلودگی نمونهها از سطح زمین ابداع نشد، مشخص نبود که این جانداران بومی محیط زیرسطحی هستند. امروزه نمونهها از معادن عمیق و برنامههای حفاری علمی در اقیانوسها و خشکی جمعآوری میشوند. همچنین رصدخانههای ژرف برای مطالعات طولانیمدت ایجاد شدهاند. در نزدیکی سطح زمین، جانداران عمدتاً مواد آلی را مصرف میکنند و اکسیژن تنفس میکنند (دگرپروردگان) یا از انرژی نور خورشید برای فتوسنتز استفاده میکنند (خودپروردگان). در اعماق پایینتر، این منابع در دسترس نیستند؛ بنابراین جانداران از «خوراکیهایی» (دهنده الکترون) مانند هیدروژن ــ که در اثر فرایندهای شیمیایی گوناگون از سنگها آزاد میشود ــ متان (CH4)، ترکیبات گوگرد احیاشده و آمونیوم (NH4) استفاده میکنند. آنها پذیرندههای الکترونی مانند نیترات و نیتریت، منگنز و اکسید آهن، ترکیبات گوگرد اکسیدشده و دیاکسید کربن (CO2) را «تنفس» میکنند. در اعماق بیشتر انرژی بسیار اندک است؛ بنابراین سرعت متابولیسم میتواند تا یک میلیون بار کمتر از سطح زمین باشد. سلولها ممکن است پیش از تقسیمشدن هزاران سال زنده بمانند و هیچ حد شناختهشدهای برای طول عمر آنها وجود ندارد. زیرسطح زمین حدود ۹۰٪ زیستتودهٔ موجود در دو قلمرو حیات، یعنی باستانیان و باکتریها، و تقریباً ۱۵٪ از کل زیستکرهٔ زمین را در خود جای داده است.[۱] برآورد جرم دقیق آن بسته به نمونهها و روشهای اندازهگیری بهکاررفته تفاوت چشمگیری دارد،[۲] اما رقم «۱۵ تا ۲۳ میلیارد تن[نکته ۱]» بسیار مورد استناد قرار گرفته است. جانداران یوکاریوت نیز در این محیطها یافت میشوند، از جمله برخی جانداران چندسلولی مانند قارچها و جانوران (نماتودها، کرمهای پهن، چرخانتباران، کرمهای حلقوی و بندپایان). ویروسها نیز حضور دارند و میکروبها را آلوده میکنند.
تعریف
زیستکره ژرف یک بومسازگان متشکل از جانداران و فضای زیست آنها در زیرسطح ژرف است.[۳] در مورد بستر دریا، یک تعریف عملیاتی از زیرسطح ژرف ناحیهای است که جانوران در آن رسوبات را بهوسیلهٔ زیستآشفتگی جابهجا نمیکنند؛ این ناحیه معمولاً از حدود یک متر یا بیشتر زیر سطح آغاز میشود.[۴] در قارهها، این ناحیه در زیر چند متر نخست قرار دارد و خاکها را شامل نمیشود.[۵] جانداران این ناحیه گاهی «درونزمینیها» (intraterrestrials) نامیده میشوند.[۶][۷] بخشی از زیستکره ژرف که در اعماقی یافت میشود که فشار و گرما در آنها بسیار بیشتر از حد تحمل حیات سطح زمین است، در مقالهای از توماس گلد در سال ۱۹۹۲ با عنوان «زیستکرهٔ ژرف و داغ» تعریف و نامگذاری شد.[۸]
کشفهای نخستین و ایدهها
در دانشگاه شیکاگو در دههٔ ۱۹۲۰، زمینشناس ادسون باستین از میکروبشناس فرانک گریر کمک گرفت تا توضیح دهد چرا آب استخراجشده از میدانهای نفتی حاوی سولفید هیدروژن و بیکربناتهاست. این مواد معمولاً توسط باکتریها ایجاد میشوند، اما آب از عمقی میآمد که در آن گرما و فشار بیش از حد تصور میشد که بتواند حیات را پشتیبانی کند. آنها توانستند باکتریهای کاهندهٔ سولفات بیهوازی را از آب کشت دهند و نشان دهند که این مواد منشأ باکتریایی دارند.[۹][۱۰][۱۱] همچنین در دههٔ ۱۹۲۰، میکروبشناس چارلز لیپمن از دانشگاه کالیفرنیا، برکلی، متوجه شد باکتریهایی که به مدت ۴۰ سال در بطریها محبوس بودهاند میتوانند دوباره فعال شوند؛ پدیدهای که امروزه بیآبیزیستی (anhydrobiosis) نامیده میشود. او از خود پرسید که آیا همین موضوع دربارهٔ باکتریهای موجود در لایههای زغالسنگ نیز صدق میکند. او نمونههای زغالسنگ را استریل کرد، مرطوب ساخت، خرد کرد و سپس توانست باکتریها را از گرد زغال کشت دهد. یکی از روشهای استریلسازی، یعنی پختن زغالسنگ در دمای ۱۶۰ درجه سلسیوس (۳۲۰ درجه فارنهایت) به مدت حداکثر ۵۰ ساعت، در واقع رشد آنها را افزایش داد. او نتایج را در سال ۱۹۳۱ منتشر کرد.[۶][۱۱]نخستین مطالعات حیات زیرسطحی توسط کلود ای. زوبل، «پدر میکروبشناسی دریایی»،[۱۲] از اواخر دههٔ ۱۹۳۰ تا دههٔ ۱۹۵۰ انجام شد. اگرچه عمق مغزهگیری محدود بود، هر جا که رسوبات نمونهبرداری شدند، میکروبها نیز یافت شدند.[۱۳][۱۴] با افزایش عمق، هوازیها جای خود را به بیهوازیها دادند.[۱۵] بیشتر زیستشناسان میکروبهای زیرسطحی را آلودگی تلقی میکردند، بهویژه پس از آنکه زیردریایی آلوین در سال ۱۹۶۸ غرق شد و دانشمندان از آن خارج شدند و ناهارهای خود را داخل آن باقی گذاشتند. هنگامی که آلوین بازیابی شد، هیچ نشانهای از تجزیهٔ میکروبی ناهارها دیده نشد.[۱۲] این امر دیدگاه بستر عمیق دریا ــ و به تبع آن زیرسطح زمین ــ را بهعنوان بیابانی بیحیات تقویت کرد. مطالعهٔ زیستکره ژرف، همانند بسیاری از پژوهشهای مربوط به باکتریها، برای چند دهه تقریباً متوقف شد؛ یک استثنا گروهی از میکروبشناسان شوروی بودند که خود را زمینمیکروبشناس مینامیدند.[۱۱]علاقه به حیات زیرسطحی زمانی دوباره افزایش یافت که وزارت انرژی ایالات متحده آمریکا در جستوجوی روشی ایمن برای دفن زبالههای هستهای بود. فرانک جی. وابر دریافت که میکروبهای زیر سطح زمین ممکن است با تجزیهٔ زبالهٔ دفنشده کمککننده باشند یا با نفوذ به محفظههای مهرومومشده مانع کار شوند. او «برنامهٔ علوم زیرسطحی» را برای مطالعهٔ حیات ژرف تشکیل داد. برای حل مشکل آلودگی، تجهیزات ویژهای طراحی شد تا تماس میان نمونهٔ مغزه و گل حفاری که مته را روانکاری میکند به حداقل برسد. همچنین ردیابهایی به سیال افزوده شدند تا مشخص شود آیا سیال به درون مغزه نفوذ کرده است یا نه. در سال ۱۹۸۷، چندین گمانه در نزدیکی پایگاه رود ساوانا حفر شد و مشخص شد که میکروارگانیسمها دستکم تا عمق ۵۰۰ متری زیر سطح فراوان و متنوعاند.[۱۴] از سال ۱۹۸۳ تاکنون، میکروبشناسان فراوانی سلولها را در مغزههای حفاریشده از برنامه بینالمللی کشف اقیانوس، که در ابتدا برنامه حفاری اقیانوس نام داشت، بررسی کردهاند.[۱۳]گروهی به سرپرستی جان پارکس از دانشگاه بریستول غلظتهایی برابر با ۱۰۴ تا ۱۰۸ سلول در هر گرم رسوب را تا عمق ۵۰۰ متر گزارش کردند؛ در حالی که خاکهای کشاورزی حدود ۱۰۹ سلول در هر گرم دارند.[۱۶] این یافته در ابتدا با تردید مواجه شد و چهار سال طول کشید تا نتایج آنها منتشر شود.[۱۲] در سال ۱۹۹۲، توماس گولد مقالهای با عنوان «زیستکرهٔ ژرف و داغ» منتشر کرد و پیشنهاد داد که حیات میکروبی در سراسر زیرسطح گسترده است و در فضاهای منفذی میان دانههای سنگ وجود دارد.[۱۷] او همچنین کتابی با عنوانی مشابه،زیستکرهٔ داغ ژرف(The Deep HotBiosphere)، منتشر کرد. [۱۷] بر اساس یک مقاله، او در مطرح کردن این دیدگاه که هیدروکربنها میتوانند در «اعماق شناختهشده تا ۱۰ کیلومتر و احتمالاً تا ۳۰۰ کیلومتر» حیات را پایدار نگه دارند، به شرط آنکه دما از حداکثر فرضی ۱۵۰ درجهٔ سانتیگراد فراتر نرود، «پیشگام» بود.[۱۷] گولد همچنین پیشنهاد کرد که زیستکرهٔ ژرف بهوسیلهٔ هیدروکربنهایی که ازنظر زمینشناختی درزیرسطح تولید میشوند، یا مشتقات آنها، پایدار میماند. براساس این مقاله، پیشنهادهای گولد به الهامبخش شدن نسلهای بعدی دانشمندان کمک کرد.[۱۷] در سال ۱۹۹۸، ویلیام ویتمن وهمکارانش خلاصهای ازدوازده سال دادهها را در مقالات آکادمی ملی علوم ایالات متحده آمریکا منتشر کردند. آنهابرآورد کردند که تا ۹۵٪ ازهمهٔ پروکاریوتها (آرکیها و باکتریها) در زیرسطح ژرف زندگی میکنند؛ ۵۵٪ در زیرسطح دریایی و ۳۹٪ درزیرسطح خشکی قراردارند.[۱۳] در سال ۲۰۰۲، بخش ۲۰۱ برنامهٔ حفاری اقیانوس(Ocean Drilling Program) نخستین برنامهای بودکه با هدف جستوجوی حیات ژرف انجام شد. بیشترکاوشهای پیشین درحاشیههای قارهای انجامشده بود؛ بنابراینهدف این بودکه برای مقایسه، در اقیانوس بازحفاری شود.[۱۸][۶] در سال ۲۰۱۶، بخش ۳۷۰ برنامهٔ بینالمللی اکتشاف اقیانوسدر رسوبات دریایی ناکای گوهٔ برافزایشی حفاری کرد و دردمای ۱۱۸ درجهٔ سانتیگراد، ۱۰۲ سلول رویشی در هرسانتیمتر مکعب مشاهده کرد.[۱۹][۲۰]
روشهای علمی
درک کنونی ما از زیستشناسی زیرسطحی به واسطهٔ پیشرفتهای متعدد در فناوریهای گردآوری نمونه، تحلیل میدانی، علوم مولکولی، کشت، تصویربرداری و محاسبات امکانپذیر شده است.
گردآوری نمونه
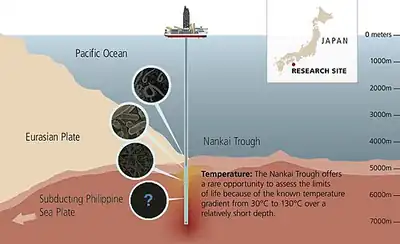
میکروبهای کف اقیانوس را میتوان باحفاری علمی گمانهها وجمعآوری مغزهها نمونهبرداری کرد. این روشها باید با انواع مختلف سنگشناسی سازگار شوند و هزینهٔ حفاری تعداد گمانههایی را که میتوان حفر کرد محدود میکند.[۲۲] میکروبشناسان از برنامههای حفاری علمی استفاده کردهاند؛ از جمله برنامه حفاری اقیانوس (ODP)، که از سکوی حفاری جیاوآیدیئیاس رزولوشن استفاده میکرد، و برنامه یکپارچه حفاری اقیانوس (IODP)، کهاز کشتی ژاپنی چیکیو استفاده میکرد.[۱۵] معادن ژرف زیرزمینی، برای مثال معادن طلای آفریقای جنوبی و معدن مس وروی پیاسالمی در فنلاند، نیز فرصتهایی برای نمونهبرداری از زیستکرهٔ ژرف فراهم کردهاند؛[۲۳][۲۴] همچنین مکانهایی که برای دفن پسماندهای هستهای انتخاب یا پیشنهاد شدهاند (برای نمونه، مخزن زباله هستهای کوهستان یوکا و تأسیسات آزمایشی مجزاسازی ضایعات در ایالات متحده، آسپو و مناطق پیرامون آن در سوئد، اونکالو و مناطق پیرامون آن در فنلاند، و مونت تری در سوئیس) نیز چنین امکانیرا فراهم کردهاند.[۱۵] حفاری علمی در زیرسطح ژرف قارهای توسط برنامه بینالمللی حفاری علمی قارهای (ICDP) ترویج شده است.[۲۵] برای امکان نمونهبرداری پیوسته از زیرزمین، انواع مختلفی از رصدخانهها توسعه یافتهاند. در کف اقیانوس، کیت باز پیکربندیشدهٔ جلوگیری از گردش (CirculationObviation Retrofit Kitیا CORK) یک گمانه را آببندی میکند تا ازورود آب دریا جلوگیری شود.[۲۶] نسخهٔ پیشرفتهٔ کیت باز پیکربندیشدهٔ جلوگیری از گردش میتواند چندین بخش از یک گمانه را با استفاده از پَکرها (packers)آببندی کند؛ لولههای لاستیکیای که برای بستن فضای میان رشتهٔ حفاری و دیوارهٔ گمانه متورم میشوند.[۲۷][۲۸] در رسوبات، ابزارسادهٔ کابلی برای اندازهگیری پارامترها درجا (Simple Cabled Instrumentfor Measuring ParametersIn-Situ یاSCIMPI) بهگونهای طراحی شده است که پس از فروریختن گمانه نیز در محل باقی بماند و اندازهگیری انجام دهد.[۲۹] از پکرها در زیرسطح قارهای نیز استفاده میشود،[۳۰] و ابزارهایی مانند راکتور جریانگذر in situ (FTISR) نیز به کار میروند. برای استخراج سیالات از این مکانها روشهای گوناگونی استفاده میشود، که این شامل نمونهبردارهای غیرفعال و اسمزی گاز و سامانههای لولهٔ Uشکل میشود.[۱۵] در گمانههای باریک (کمتر از ۵۰ میلیمتر)، میتوان لولههای پلیآمیدی مجهز به شیر فشارِ برگشتی را پایین فرستاد تا از کل ستون سیال نمونهبرداری شود.[۳۱][۳۲]
تحلیل و دستکاری میدانی
برخی روشها میکروبها را in situ، یعنی در محل، بررسی میکنند و بهاستخراج آنها اززیرسطح نیاز ندارند. در زیستژئوفیزیک، اثرات میکروبها بر ویژگیهای مواد زمینشناختی از راه دور و با استفاده از سیگنالهای الکتریکی بررسی میشود. میتوانمیکروبها را بایک ایزوتوپ پایدار، مانند کربن-۱۳، نشاندار کردو سپس دوباره به زمین تزریق کرد تا مشخص شود به کجا میروند.[۱۵] روش فشار-کشیدن (push-pull) شامل تزریق یک سیال به یک آبخوان واستخراج مخلوطی از سیال تزریقشده و آب زیرزمینی است؛ سپس میتوان این مخلوط را تحلیل کرد تا مشخص شود چه واکنشهای شیمیایی رخ دادهاند.[۳۳]
روشهای مولکولی و کشت
روشهای زیستشناسی مولکولی نوین امکان استخراجنوکلئیک اسیدها، لیپیدها و پروتئینها از سلولها، توالییابی دیانای و تحلیل فیزیکی و شیمیایی مولکولها با استفاده از طیفسنجی جرمی و فلوسیتومتری را فراهم میکنند. حتی هنگامی که نتوان میکروبهای منفرد را کشت داد، با استفاده از این روشها میتوان اطلاعات زیادی دربارهٔ اجتماعات میکروبی به دست آورد. برای مثال، در معدن ریچموند در کالیفرنیا، دانشمندان با استفادهاز توالییابی شاتگان چهارگونهٔ جدید باکتری، سه گونهٔ جدید آرکی (که با نام نانوارگانیسمهای اسیددوست آرکیال معدن ریچموند شناخته میشوند) و ۵۷۲ پروتئین منحصربهفرد باکتریها راشناسایی کردند.[۳۴][۳۵]
روشهای ژئوشیمیایی
میکروارگانیسمهای ژرف از طریق مواد مغذی ایکه مصرف میکنند و مواد زائدی که در اثر فعالیت متابولیکی تولید میکنند، شیمی محیط پیرامون خود را تغییر میدهند. بنابراین دانشمندان میتوانند با اندازهگیری ترکیب شیمیایی نمونههای زیرسطحی، فعالیت میکروارگانیسمهای ژرف را برآوردکنند. روشهایمکمل شامل اندازهگیریترکیب ایزوتوپی مواد شیمیایی یا کانیهای مرتبط با آنهاست.[۳۶][۳۷][۳۸][۳۹]
شرایط حیات
برای آنکه حیات بتواند فعالیت متابولیکی داشته باشد، بایدبتواند از یکترمودینامیک غیرتعادلی در محیط بهرهبگیرد. این وضعیتمیتواند زمانی رخدهد که سنگهایگوشته که سرشاراز کانی الیوین هستند در معرضآب دریا قرارگیرند و باآن واکنش دهندو کانیهای سرپانتینو مگنتیت تشکیلدهند.[۴۰] شرایط عدم تعادلهمچنین با چاه گرمابی، آتشفشانخیزی و فعالیت زمینگرماییمرتبط هستند. فرایندهایدیگری که ممکناست زیستگاههایی برایحیات فراهم کنندشامل شکلگیری جبهههایرول در کانسارهای معدنی،[note ۱] فرورانش، تشکیل و تجزیهٔ کلاترات متان، ذوب پرمافراست، تابشفروسرخ و فعالیت لرزهای هستند. انسانها نیز زیستگاههای جدیدی برای حیات ایجاد میکنند، بهویژه ازطریق پاکسازی زیستمحیطی در زیرسطح این کار را انجام میدهند.[۱۳]
منابع انرژی
حیات برای ساخت آدنوزین تریفسفات (ATP) به انرژی کافی نیاز دارد. در جایی که نور خورشید وجوددارد، فرایندهای اصلیجذب انرژی فتوسنتز (که انرژی نور خورشید را با تبدیل کربن دیاکسید بهمولکولهایآلی مهار میکند) و تنفس (که این مولکولها را مصرف کرده و کربن دیاکسید آزاد میکند) هستند. در زیرسطح زمین، منبع اصلی انرژی از واکنشهای شیمیایی اکسایش-کاهش به دست میآید. این واکنشها بهدهندههای الکترون (ترکیباتی کهمیتوانند اکسید شوند) و پذیرندههای الکترون (ترکیباتی که میتوانند کاهش یابند) نیاز دارند. نمونهای از چنین واکنشی، اکسایش متان است:
- CH4 + 2 O2 → CO2 + 2 H2O
در این واکنش CH4 دهنده و O2 پذیرنده است.[۴۲] میتوان دهندهها را خوراکیها و پذیرندهها را قابلتنفسها درنظر گرفت.[۴۳] مقدار انرژی آزادشده در یک واکنش متابولیکی به پتانسیل اکسید و احیا مواد شیمیایی دخیل بستگی دارد. دهندههای الکترون دارایپتانسیلهای منفی هستند. از بیشترین تا کمترین پتانسیل اکسید و احیا، برخی از دهندههای رایج موجود در زیرسطح عبارتاند از مواد آلی، هیدروژن، متان، ترکیبات گوگرد احیاشده، ترکیبات آهن احیاشده و آمونیوم. از منفیترین تا کمترین مقدار منفی، برخی از پذیرندهها عبارتاند از اکسیژن، نیتراتها و نیتریتها، اکسیدهای منگنز و آهن، ترکیبات گوگرد اکسیدشده و کربن دیاکسید.[۴۲] در میان دهندههای الکترون، مواد آلی دارای منفیترین پتانسیل اکسید و احیا هستند. این مواد میتوانند از رسوبات مناطق دارای نور خورشید یا از تولیدات جانداران محلی ناشی شوند. مواد تازه نسبت به مواد قدیمی آسانتر مورد استفاده قرار میگیرند. مواد آلی خشکیزاد (عمدتاً گیاهی) معمولاً سختتراز مواد آلی دریایی (فیتوپلانکتونها) پردازش میشوند. برخی جانداران ترکیبات آلی را با استفاده از تخمیر و هیدرولیز تجزیه میکنند و امکان تبدیل دوبارهٔ آنها به کربن دیاکسید را برای جانداران دیگر فراهم میکنند. هیدروژن منبع انرژی خوبی است، اما رقابت باعث میشود معمولاً کمیاب باشد. هیدروژن بهویژه در سیالات گرمابی فراوان است، جایی که براثر سرپانتینیشدن تولید میشود. چندین گونه میتوانند تخمیر را با متانزایی واکسایش آهن را با مصرف هیدروژن ترکیب کنند.متان عمدتاً در رسوبات دریایی یافت میشود؛ به صورت گازی (حلشده یا آزاد) یا به شکل هیدرات متان دیده میشوند. حدود ۲۰٪ آن از منابع غیرزیستی(تجزیهٔ مواد آلی یا سرپانتینیشدن) و۸۰٪ از منابع زیستی (که ترکیبات آلی مانند دی اکسید کربن، مونوکسیدکربن و استات را کاهش میدهند ) حاصل میشود. بیش از ۹۰٪ متان قبل از رسیدن به سطح توسط میکروبها اکسید میشود. این فعالیت یکی از مهمترین عوامل کنترل انتشار گازهای گلخانهای و آب و هوای زمین است. ترکیبات گوگرد احیا شده مانند گوگرد عنصری،سولفيد هيدروژن (H2S) و پیریت (FeS2) درمنافذ هیدروترمال پوسته بازالتی یافت میشوند ، جایی که هنگام تماس مایعات غنی از فلز با آب دریا رسوب میکنند. ترکیبات آهن احیا شده در رسوبات عمدتاً توسط کاهش بیهوازی اکسیدهای آهن رسوب یا تولید میشوند.[۴۴]
اکسیژن، پذیرنده الکترونی است که بالاترین پتانسیل اکسایش-کاهش را دارد. این ماده که محصول فتوسنتز است، به بستر اقیانوس منتقل میشود. در آنجا، چنانچه مواد آلی فراوان باشند، اکسیژن بهسرعت مصرف میشود و ممکن است تنها در چند سانتیمترِ بالاییِ رسوبات وجود داشته باشد؛ اما در رسوباتِ کممادهی آلی، میتوان آن را در اعماق بیشتر و حتی تا لایه پوسته اقیانوسی یافت. نیترات نیز میتواند از طریق تجزیه مواد آلی یا تثبیت نیتروژن تولید شود.[۴۵] اکسیژن و نیترات حاصل فتوسنتز هستند؛ بنابراین، جوامع زیرزمینی که از آنها بهره میبرند، در واقع مستقل از سطح نیستند.[۴۶]
مواد مغذی
تمامی اشکال حیات به کربن، اکسیژن، نیتروژن، فسفر و برخی عناصر کممقدار مانند نیکل، مولیبدن و وانادیم نیاز دارند. بیش از ۹۹٫۹٪ کربن موجود در زمین در پوسته و رسوبات روی آن ذخیره شده است، اما دسترسی به این کربن میتواند به حالت اکسایش محیط بستگی داشته باشد. کربن آلی، نیتروژن و فسفر عمدتاً در رسوبات زمینی یافت میشوند که بیشتر در حاشیههای قارهای انباشته میشوند. کربن آلی عمدتاً در سطح اقیانوسها از طریق فتوسنتز تولید میشود یا همراه با رسوبات زمینی به اقیانوسها شسته میشود. تنها بخش کوچکی از آن در اعماق دریاها از طریق شیمیوسنتز تولید میشود. هنگامی که کربن آلی از سطح اقیانوس به سوی بستر دریا فرومیرود، بیشتر آن توسط جانداران موجود در آب دریا مصرف میشود. تنها بخش کوچکی از این کربن آلیِ در حال فرونشست میتواند به بستر دریا برسد و در دسترس زیستکرهٔ ژرف قرار گیرد.[۳۶][۴۷] در اعماق بیشترِ رسوب دریایی، مقدار مواد آلی باز هم کاهش مییابد.[۳۶] هنگام هوازدگی بازالتها و سنگهای سولفیدی، فسفر توسط آهن (III) اکسید-هیدروکسید جذب میشود و در نتیجه دسترسی به آن محدود میشود.[۴۸] دسترسی به مواد مغذی، زیستکرهٔ ژرف را محدود میکند و تعیین میکند که کجا و چه نوع جانداران ژرفی میتوانند رشد و بقا داشته باشند.
فشار
بهطور میانگین، فشار جو در سطح دریا حدود ۱۰۱ کیلوپاسکال (kPa) است. در اقیانوس، فشار به ازای هر متر افزایش عمق، ۱۰٫۵ کیلوپاسکال افزایش مییابد؛ بنابراین در عمق معمول بستر دریا (۳۸۰۰ متر)، فشار ۳۸ مگاپاسکال (MPa)، معادل ۳۸۰ اتمسفر، است. در این اعماق، نقطهٔ جوش آب بیش از ۴۰۰ °C است. در کف درازگودال ماریانا، فشار به ۱۱۰ مگاپاسکال میرسد. در سنگکره، فشار به ازای هر متر ۲۲٫۶ کیلوپاسکال افزایش مییابد.[۴۸][۴۹] زیستکرهٔ ژرف فشارهایی بسیار بیشتر از فشار سطح زمین را تحمل میکند.[۳۶]
افزایش فشار، لیپیدها را فشرده و غشاها را سیالیتپذیری کمتری میکند. در بیشتر واکنشهای شیمیایی، محصولات حجم بیشتری از واکنشدهندهها اشغال میکنند؛ بنابراین فشار موجب مهار واکنشها میشود.[۴۹] بااینحال، برخی مطالعات ادعا میکنند که سلولهای سطح زمین همچنان در فشار ۱ گیگاپاسکال (GPa)، یعنی حدود ۱۰٬۰۰۰ برابر فشار استاندارد جو، فعال هستند. همچنین پیزوفیلهایی وجود دارند که رشد بهینهٔ آنها در فشارهای بیش از ۱۰۰ مگاپاسکال رخ میدهد؛[۴۸] و برخی از آنها در فشارهای کمتر از ۵۰ مگاپاسکال رشد نمیکنند.[۴۹]
تا سال ۲۰۱۹، بیشتر نمونهبرداریها از جانداران اعماق اقیانوس و زیرسطح زمین هنگام انتقال نمونهها به سطح، با کاهش فشار مواجه میشدند. این امر میتواند از راههای گوناگون به سلولها آسیب برساند و آزمایشهایی که در فشار سطح زمین انجام میشوند، تصویری نادرست از فعالیت میکروبی در زیستکرهٔ ژرف ارائه میکنند.[۵۰][۵۱][۵۲] دستگاهی به نام «دستهٔ نمونهبردار زیرآبی تحت فشار» (Pressurized Underwater Sampler Handler یا PUSH50) برای حفظ فشار in situ هنگام نمونهبرداری و پس از آن در آزمایشگاه ساخته شده است.[۵۳]
دما
دماهای بالا به جانداران فشار وارد میکنند و سرعت فرایندهایی را که به مولکولهای مهمی مانند دیانای و اسید آمینه آسیب میرسانند افزایش میدهند. همچنین نیاز انرژی برای ترمیم این مولکولها را افزایش میدهند.[۵۴] بااینحال، سلولها میتوانند با تغییر ساختار این مولکولها در جهت پایدارسازی آنها به شرایط پاسخ دهند.[۴۸][۴۹][۵۵]
میکروبها در دماهای بالاتر از ۱۰۰ درجه سلسیوس نیز میتوانند زنده بمانند، مشروط بر اینکه فشار به اندازهای زیاد باشد که از جوشیدن آب جلوگیری کند. بالاترین دمایی که تاکنون یک جاندار در آزمایشگاه در آن کشت داده شده است، ۱۲۲ درجه سلسیوس بوده است،[۴۲][۴۸] و این آزمایش در فشارهای ۲۰ و ۴۰ مگاپاسکال انجام شده است.[۵۶] برآوردهای نظری برای بالاترین دمایی که میتواند حیات را پایدار نگه دارد، حدود ۱۵۰ درجه سلسیوس است.[۵۷] همدماگرمای ۱۲۰ درجه سلسیوس در پشته میاناقیانوسی و دریاکوه میتواند در عمقی کمتر از ۱۰ متر قرار داشته باشد، اما در محیطهای دیگری مانند درازگودال دریایی ممکن است در چندین کیلومتری زیر سطح قرار گیرد.[۴۸] حدود ۳۹٪ از حجم رسوبات اقیانوسی در دماهای بین ۴۰ و ۱۲۰ °C قرار دارد.[۵۷] دادههای دماگاهشماری از کراتونهای پیشینزیستی نشان میدهند که شرایط دمایی قابلزیست در زیرسطح این محیطها حداکثر تا حدود یک میلیارد سال پیش نیز وجود داشتهاند.[۵۸]
رکورددار گرمادوست، متانوپیروس کندل-ری، از یک چاه گرمابی جداسازی شده است؛[۵۷] این محیطها انرژی و مواد مغذی فراوانی فراهم میکنند. چندین گروه از باستانیان و باکتریها در بستر کمعمق دریا و در دماهای بین ۸۰ و ۱۰۵ درجه سلسیوس رشد میکنند. هرچه محیط از نظر انرژی محدودتر شود، مانند اعماق بیشتر، باکتریها میتوانند زنده بمانند، اما تعداد آنها کاهش مییابد. اگرچه میکروارگانیسمهایی در دماهای تا ۱۱۸ درجه سلسیوس در رسوبات مغزهگیریشده شناسایی شدهاند،[۱۹][۵۹] تلاشها برای جداسازی این جانداران موفق نبوده است. همچنین ممکن است در اعماق مختلف، بازههایی وجود داشته باشد که تعداد سلولهای آنها از بخشهای عمیقتر همان محل کمتر باشد.[۱۹] دلایل چنین «بازههای کمسلول یا بدون سلول» هنوز ناشناخته است، اما ممکن است با جریان زیرزمینی سیال داغ مرتبط باشد.[۶۰] در مخزن نفتهای ژرف، هیچ فعالیت میکروبی در دماهای بالاتر از ۸۰ درجه سلسیوس مشاهده نشده است.[۵۴]
زندگی با محدودیت انرژی
در بیشتر بخشهای زیرسطح، جانداران در شرایط محدودیت شدید انرژی و مواد مغذی زندگی میکنند.[۳۶] این شرایط با محیطهایی که سلولها در آزمایشگاه در آن کشت داده میشوند بسیار متفاوت است. یک کشت آزمایشگاهی از مجموعهای از مراحل قابل پیشبینی عبور میکند. پس از یک مرحلهٔ تأخیر کوتاه، دورهای از رشد نمایی آغاز میشود که طی آن جمعیت میتواند در کمتر از ۲۰ دقیقه دو برابر شود. پس از آن مرحلهٔ مرگ فرا میرسد که در آن تقریباً تمام سلولها از بین میروند. سلولهای باقیمانده وارد یک مرحلهٔ سکون طولانی میشوند که در آن میتوانند سالها بدون دریافت بستر جدید دوام بیاورند. بااینحال، به ازای هر سلول زنده، ۱۰۰ تا ۱۰۰۰ سلول مرده وجود دارد که میتواند از آنها تغذیه کند؛ بنابراین در مقایسه با زیرسطح، مواد مغذی فراوانی در اختیار سلولها قرار دارد.[۳]
در زیرسطح، سلولها کاتابولیزه میکنند (مولکولها را برای بهدستآوردن انرژی یا مواد سازنده تجزیه میکنند)؛ این فرایند ۱۰٬۰۰۰ تا یک میلیون بار آهستهتر از سطح زمین انجام میشود. ممکن است گردش زیستتوده یا نوسازی سلولی قرنها یا هزارهها طول بکشد. هیچ حد شناختهشدهای برای طول عمر بالقوهٔ سلولها وجود ندارد. ویروسهای موجود ممکن است سلولها را از بین ببرند و احتمال دارد یوکاریوتها نیز از آنها تغذیه کنند، اما شواهدی برای این امر وجود ندارد.[۳]
تعیین حدود مشخصی برای انرژی موردنیاز سلولها جهت زنده ماندن بدون رشد، دشوار است.[۳۶] سلولها برای انجام برخی عملکردهای پایه، مانند حفظ فشار اسمزی و نگهداری درشتمولکولهایی مانند آنزیمها و آرانای به انرژی نیاز دارند، با این حال، تخمینهای آزمایشگاهی از انرژی مورد نیاز چندین برابر بیشتر از منبع انرژی است که به نظر میرسد حیات زیرزمینی را حفظ میکند.[۶۱] در ابتدا تصور میشد که بیشتر سلولهای زیرزمینی در حالت خفتگی هستند. بااینحال، خروج از حالت خفتگی به انرژی اضافی نیاز دارد. این راهبرد در محیطی که منابع انرژی طی میلیونها سال پایدار، اما بهآرامی رو به کاهشاند، راهبرد مناسبی نیست. شواهد موجود نشان میدهند که بیشتر سلولهای موجود در زیرسطح، فعال و زندهاند.[۳]
محیط کمانرژی به نفع سلولهایی است که کمترین میزان همایستایی را دارند، زیرا در محیط تغییراتی رخ نمیدهد که این سلولها نیازمند واکنش به آن باشند. ممکن است جاندارانی متخصص در شرایط کمانرژی وجود داشته باشند. بااینحال، به دلیل نرخ پایین نوسازی و نیز بنبست بودن این محیط، بعید است فشار فرگشتی شدیدی برای تکامل چنین جاندارانی وجود داشته باشد.[۳]
اگرچه سن میکروبهای موجود در زیرکف اقیانوس همچنان نسبتاً ناشناخته است، در چند سال گذشته پیشرفت چشمگیری در آشکار کردن آن حاصل شده است. برای چندین دهه تصور میشد که حیات در زیر بستر دریا، در بهترین حالت، در وضعیت خفتگی قرار دارد. در نمونههای مغزهای که در سال ۲۰۱۰ برداشت و سپس در سال ۲۰۲۰ تجزیهوتحلیل شدند، مشخص شد که در مغزههای برداشتشده از عمق ۱۰۰ متری زیر کف اقیانوس، اکسیژن وجود دارد. هنگامی که این نمونهها در محیط آزمایشگاهی قرار گرفتند، مشخص شد که این میکروبها پس از احتمالاً صدها هزار سال خفتگی، قادر به رشد و تقسیم هستند. نمونههای برداشتشده نشان دادند که ۹۹٫۱ درصد از نمونهها، که همگی از رسوباتی با قدمت ۱۰۱٫۵ میلیون سال تشکیل شده بودند، زنده و آمادهٔ مصرف مواد غذایی بودند.[۶۲] نمونههای این مطالعه در جریان سفر پژوهشی ۳۲۹ «حیات در زیرکف چرخند جنوب اقیانوس آرام» از سوی برنامهٔ یکپارچهٔ حفاری اقیانوسی برداشت شدند.
جوامع میکروبی ژرفِ زیرکف اقیانوس، به دلیل کند بودن چرخهٔ مواد مغذی، زمان نوسازی بسیار طولانیای دارند. با وجود سرعت پایین چرخهٔ مواد مغذی، این جوامع همچنان میتوانند در چرخهٔ زیستژئوشیمیایی جهانی نقش داشته باشند. با توجه به نرخ متابولیسم بسیار پایین، بسیاری از سلولها ممکن است در حالت خفتگی باشند یا در شرایط کمبود انرژی فعالیت کنند.[۶۳] این سلولها معمولاً بهجای تولیدمثل، در حال حفظ یا ترمیم خود هستند. سن میکروبهای زیرکف از نمونههایی که در جریان برنامهٔ حفاری اقیانوسی برداشت شده بودند، مورد بررسی قرار گرفت. اگرچه این میکروبها کاملاً در حالت خفتگی نیستند، میکروبهای موجود در رسوبات زیرکف با نرخهای متابولیکی بهطرز خارقالعادهای پایینی به حیات خود ادامه میدهند؛ برآورد شده است که این نرخها ۳ تا ۶ مرتبهٔ بزرگی کمتر از نرخهای مشاهدهشده در رسوبات دریایی و کشتهای میکروبی است. زمان نوسازی زیستتودهٔ میکروبی در رسوبات زیرکف به بیش از صدها هزار سال میرسد. این میزان بسیار کندتر از فعالیت سلولبهسلول میکروبهای سطحی است.[۶۳] این میکروبها به مواد آلی مدفونشدهای وابستهاند که منشأ آنها رسوبات کف دریا بوده است.
تنوع
زیستتوده در زیرسطح ژرف حدود ۱۵٪ از کل زیستکره را تشکیل میدهد.[۵] از هر سه حوزه زیستی (باستانیان، باکتریها و یوکاریوتها) در زیرسطح ژرف حیات یافت شده است؛[۶۴] در واقع، حدود ۹۰٪ از کل زیستتودهٔ باستانیان و باکتریها در زیرسطح ژرف قرار دارد.[۵] تنوع ژنتیکی در این محیط دستکم به اندازهٔ سطح زمین است.[۶۴] میکروبهای هوازی نیز در آنجا حضور دارند؛ باکتریهای متانوتروف نیتریتها را به نیتروژن و اکسیژن تجزیه میکنند و سپس از اکسیژن برای تجزیهٔ متان و بهدستآوردن انرژی استفاده میکنند. بخشی از اکسیژن تولیدشده به این روش از سلولها خارج شده و وارد محیط پیرامون میشود و در آنجا برای سایر ریزسازوارههای وابسته به اکسیژن سودمند است.[۶۵]
در اقیانوس، گونههای پلانکتون در سراسر جهان پراکندهاند و تقریباً در همهجا بهطور پیوسته رسوب میکنند. حتی در بالاترین بخش بستر اقیانوس نیز اجتماعات بسیار متفاوتی یافت میشود و تنوع گونهای با افزایش عمق کاهش مییابد.[۶۶] بااینحال، برخی ردههای زیستی در زیرسطح پراکندگی گستردهای دارند.[۶۷] در رسوبات دریایی، شاخههای اصلی باکتریایی عبارتاند از «کندیداتوس آتریباکتروتا» (که پیشتر OP9[۶۸] و JS1[۶۹] نامیده میشد)،[۷۰] پروتئوباکتریا، کلروفلیکسی و Planctomycetota.[۶۷] اعضای باستانیان نخستینبار با استفاده از تحلیل متاژنومیک شناسایی شدند، اما برخی از آنها بعداً کشت داده شدند و نامهای جدیدی دریافت کردند. «گروه باستانیان اعماق دریا» (DSAG) به «گروه بنتیک دریایی B» (MBG-B) تغییر نام یافت و اکنون بهعنوان شاخهٔ پیشنهادی «پرومتئارکئاسه» شناخته میشود.[۶۶] «پرومتئارکئاسه» همراه با «گروه باستانیان باستانی» (AAG) و «گروه منافذ گرمابی دریایی» (MHVG) سابق، بخشی از یک ابرشاخهٔ پیشنهادی به نام آسگارد است.[۷۱] شاخههای دیگر عبارتاند از «باتیآرکائوتا» (که پیشتر «گروه متفرقهٔ کرنارکئوتایی» نامیده میشد)، نیتروسوفاریا (که پیشتر تائومارکائوتا یا گروه دریای اول نام داشت)،[۶۶] و یوریآرکیوتا (شامل «هادسارکایا»، آرکئوگلوبیاسه و ترموکوکالها).[۵۷] یک کلاد مرتبط، یعنی باستانیان متانخوار بیهوازی (ANME)، نیز در این محیط حضور دارند.[۳۵] سایر شاخههای باکتریایی شامل ترموتوگا هستند.[۵۷]
در زیرسطح قارهای، گروههای اصلی باکتریایی عبارتاند از سودومونادوتا و فیرمیکوتها، درحالیکه باستانیان عمدتاً از متانوباکتریا و نیتروسوفائروتا تشکیل میشوند.[۷۲] شاخههای دیگر شامل «باتیآرکائوتا» و «آیگارچائوتا» هستند، درحالیکه از شاخههای باکتریایی میتوان به آبکیفیوتا و نیتروسپیروتا اشاره کرد.[۵۷]
یوکاریوتهای موجود در زیستکرهٔ ژرف شامل برخی اشکال حیات چندسلولی نیز میشوند. در سال ۲۰۰۹، گونهای از نماتودها، هالیسفالوبوس مفیستو، در شکافهای سنگی در عمق بیش از یک کیلومتری یک معدن طلای آفریقای جنوبی کشف شد. این کرم که به «کرم شیطان» شهرت یافته است،[۷۳] ممکن است در اثر زمینلرزهها همراه با آب منفذی به اعماق رانده شده باشد.[۷۴] از آن زمان، دیگر جانداران چندسلولی مانند قارچها، کرمهای پهن، کرمهای حلقوی، چرخانتباران و بندپایان نیز یافت شدهاند.[۷۵][۷۶][۷۷][۷۸][۷۹][۸۰][۸۱] بااینحال، دامنهٔ پراکندگی آنها ممکن است محدود باشد، زیرا استرولهای موردنیاز برای ساخت غشا در یوکاریوتها بهراحتی در شرایط بیهوازی ساخته نمیشوند.[۱۵]
ویروسها نیز به تعداد زیاد حضور دارند و طیف متنوعی از میکروبها را در زیستکرهٔ ژرف آلوده میکنند. آنها ممکن است در گردش و جایگزینی سلولها و انتقال اطلاعات ژنتیکی میان سلولها نقش قابلتوجهی داشته باشند.[۱۵]
زیستگاهها
حیات در عمق ۵ کیلومتری در قارهها و در عمق ۱۰٫۵ کیلومتری زیر سطح اقیانوس یافت شده است.[۶۴] در سال ۱۹۹۲، توماس گلد محاسبه کرد که اگر فضای منفذی برآوردشده در تودهٔ خشکی زمین تا عمق ۵ کیلومتری از آب پر باشد و اگر ۱٪ از این حجم را زیستتودهٔ میکروبی تشکیل دهد، مقدار مادهٔ زندهٔ حاصل برای پوشاندن سطح خشکی زمین با لایهای به ضخامت ۱٫۵ متر کافی خواهد بود. چنین زیستتودهای عظیم خواهد بود: ۲×۱۰۱۴ یا ۲۰۰ هزار میلیارد تن[۸۲] (برای مقایسه، زیستتودهٔ غالب، یعنی گیاهان، در حد صدها میلیارد تن است). حجم برآوردشدهٔ زیستکرهٔ ژرف ۲ تا ۲٫۳ میلیارد کیلومتر مکعب است که تقریباً دو برابر حجم اقیانوسهاست.[۸۳]
بستر اقیانوس
انواع اصلی زیستگاه در زیر بستر دریا عبارتاند از رسوبها و سنگهای آذرین. سنگهای آذرین ممکن است تا حدی دگرگون شده باشند و در کنار محصولات دگرسانی خود، مانند سولفیدها و کربناتها، وجود داشته باشند. در سنگ، مواد شیمیایی عمدتاً از طریق سامانهای از آبخوانها جابهجا میشوند که کل آب اقیانوس را هر ۲۰۰ هزار سال یکبار به گردش درمیآورد. در رسوبات، در زیر چند سانتیمتر بالایی، مواد شیمیایی عمدتاً از طریق فرایند بسیار کندترِ انتشار جابهجا میشوند.[۴۸]
رسوبات
تقریباً تمام بستر دریا با رسوبات دریایی پوشیده شده است. ضخامت این رسوبات میتواند از چند سانتیمتر در نزدیکی پشتههای اقیانوسی تا بیش از ۱۰ کیلومتر در گودالهای عمیق اقیانوسی متفاوت باشد. در میان اقیانوس، کوکولیتها و صدفهایی که از سطح فرومینشینند، گلرسوبات آلیزاد را تشکیل میدهند، درحالیکه در نزدیکی ساحل، رودخانهها رسوبات را از قارهها منتقل میکنند. کانیهای حاصل از چاههای گرمابی و ذرات منتقلشده بهوسیلهٔ فرآیندهای بادی نیز در این فرایند نقش دارند.[۴۲] با رسوبگذاری و دفن مادهٔ آلی، ترکیباتی که استفاده از آنها آسانتر است در اثر اکسایش میکروبی مصرف میشوند و ترکیبات مقاومتر باقی میمانند. بنابراین، انرژی در دسترس حیات کاهش مییابد. در چند متر بالایی، نرخهای سوختوساز ۲ تا ۳ مرتبهٔ بزرگی کاهش مییابند و در سراسر ستون رسوب نیز تعداد سلولها با افزایش عمق کاهش پیدا میکند.[۶۶]
رسوبات لایههایی با شرایط متفاوت برای حیات تشکیل میدهند. در ۵ تا ۱۰ سانتیمتر بالایی، جانوران نقب میزنند، رسوب را جابهجا و برهمزدگی زیستی میکنند و مرز میان رسوب و آب را گسترش میدهند. آب، اکسیژن، مادهٔ آلی تازه و متابولیتهای محلول را منتقل میکند و محیطی ناهمگن با مواد مغذی فراوان پدید میآورد. در زیر لایهٔ نقبخورده، لایهای قرار دارد که کاهش سولفات در آن غالب است. در زیر آن، کاهش بیهوازی متان با استفاده از سولفات در ناحیهٔ گذار سولفات–متان (SMTZ) تسهیل میشود. پس از مصرف سولفاتها، تشکیل متان آغاز میشود.[۶۶] عمق مناطق شیمیایی به نرخ رسوبگذاری مادهٔ آلی بستگی دارد. هرچه رسوبگذاری سریعتر باشد، اکسیژن سریعتر در جریان مصرف مادهٔ آلی مصرف میشود؛ در صورت کند بودن رسوبگذاری، اکسیژن به دلیل کمبود مواد مغذی برای اکسید شدن میتواند تا اعماق بسیار بیشتری باقی بماند.[۶۶]
زیستگاههای رسوبی اقیانوس را میتوان به مناطق فرورانشی، دشتهای مغاکی و حاشیههای نافعال تقسیم کرد. در منطقهٔ فرورانش، جایی که یک صفحه به زیر صفحهای دیگر فرو میرود، معمولاً گوهٔ برافزایشی تشکیل میشود. در ابتدا، رسوب ۵۰ تا ۶۰ درصد تخلخل دارد؛ با فشردهشدن، سیالات از آن خارج میشوند و تراوش سرد یا هیدراتهای گازی تشکیل میدهند.
دشتهای مغاکی منطقهای میان حاشیهٔ قارهای و پشتههای میاناقیانوسی هستند و معمولاً در عمق بیش از ۴ کیلومتر (۱۳٬۰۰۰ فوت) قرار دارند. سطح اقیانوس از مواد مغذی مانند نیترات، فسفات و آهن بسیار فقیر است و این امر رشد فیتوپلانکتونها را محدود میکند؛ در نتیجه نرخ رسوبگذاری پایین است.[۷۰] رسوب معمولاً از مواد مغذی بسیار فقیر است، بنابراین تمام اکسیژن مصرف نمیشود؛ حتی تا سنگ زیرین نیز اکسیژن یافت شده است. در چنین محیطهایی، سلولها عمدتاً یا کاملاً هوازی هستند یا بیهوازی اختیاری (در صورت وجود از اکسیژن استفاده میکنند، اما در نبود آن میتوانند به پذیرندههای الکترونی دیگر روی آورند[۸۴]) و هتروتروف هستند (تولیدکنندهٔ اولیه نیستند). این موجودات شامل پروتئوباکتریا، کلروفلیکسی، باستانیان گروه دریایی دوم و سنگخودپروردگان در شاخهٔ نیتروسوفاریا هستند. قارچها نیز تنوع زیادی دارند و اعضایی از شاخههای قارچهای کیسهای و قارچهای چتری و همچنین مخمرها را شامل میشوند.[۷۰]
حاشیههای غیرفعال (فلاتهای قارهای و شیبهای قارهای) زیر آبهایی نسبتاً کمعمق قرار دارند. فراچاهش، آب غنی از مواد مغذی را به سطح میآورد و رشد فراوان فیتوپلانکتونها را تحریک میکند؛ سپس این جانداران به کف فرومینشینند؛ پدیدهای که به پمپ زیستی معروف است.[۷۰] بنابراین، مادهٔ آلی فراوانی در رسوبات وجود دارد و تمام اکسیژن در جریان مصرف آن مصرف میشود. دما و فشار در این محیطها بسیار پایدارند.[۴۸] جمعیت میکروبها چندین مرتبهٔ بزرگی بیشتر از دشتهای مغاکی است. این جمعیت شامل بیهوازیهای اجباری، از جمله اعضای شاخهٔ کلروفلیکسی، «سیای. آتریباکتروتا»، باکتریهای کاهندهٔ سولفات و تخمیرکنندهها، متانزاها و متانخوارها در باستانیان است. قارچها نسبت به دشتهای مغاکی تنوع کمتری دارند و عمدتاً شامل آسکومیکوتا و مخمرها هستند. ویروسهایی از خانوادههای باکتریوفاژ رشتهای، سیفوویریده و لیپوتریکس ویریده شناسایی شدهاند.[۷۰]
سنگها
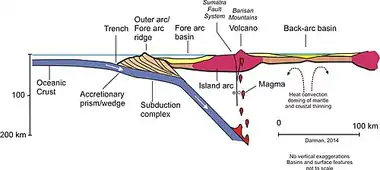
پوستهٔ اقیانوسی در پشتههای میاناقیانوسی تشکیل میشود و از طریق فرورانش از بین میرود. نیمهٔ بالایی آن، در حدود نیم کیلومتر، از مجموعهای از جریانهای بازالتی تشکیل شده است و تنها همین لایه تخلخل و هدایت هیدرولیک کافی برای عبور سیال دارد. لایههای آذرینتیغههای ورقهای و گابروهای زیرین برای حیات مناسبتر نیستند.[۴۸]
پشتههای میاناقیانوسی محیطی داغ و بهسرعت در حال تغییر هستند و شیب قائم دما در آنها زیاد است؛ بنابراین حیات تنها میتواند در چند متر بالایی وجود داشته باشد. برهمکنشهای دمابالای آب و سنگ باعث کاهش سولفاتها میشوند و سولفیدهای فراوانی تولید میکنند که بهعنوان منابع انرژی عمل میکنند؛ این فرایند همچنین فلزات موجود در سنگ را که میتوانند منبع انرژی یا سمی باشند، خارج میکند. برهمکنش آب با ماگما همراه با گاززدایی، مقدار زیادی متان و هیدروژن نیز تولید میکند. تاکنون هیچ حفاریای در اینجا انجام نشده است، بنابراین اطلاعات دربارهٔ میکروبها از نمونههای سیالات گرمابی خارجشده از منافذ بهدست میآید.[۴۸]
در فاصلهٔ حدود ۵ کیلومتر (۱۶٬۰۰۰ فوت) از محور پشته، هنگامی که پوسته حدود یک میلیون سال عمر دارد، شروع میشوند. این مناطق که با گردش گرمابی مشخص میشوند، تا حدود ۸۰ میلیون سالگی ادامه دارند. این گردش توسط گرمای نهان حاصل از سردشدن پوسته به حرکت درمیآید؛ این گرما آب دریا را گرم کرده و آن را از میان سنگهای تراواتر به سمت بالا میراند. منابع انرژی از دگرسانی سنگ ناشی میشوند که بخشی از آن توسط جانداران زنده میانجیگری میشود. در پوستهٔ جوانتر، چرخههای آهن و گوگرد فراواناند. پوشش رسوبی سرعت سردشدن را کاهش داده و جریان آب را کم میکند. شواهد اندکی از فعالیت میکروبی در پوستهٔ قدیمیتر (بیش از ۱۰ میلیون سال) وجود دارد.[۴۸]
در نزدیکی مناطق فرورانشی، آتشفشانها میتوانند در کمانهای جزیرهای و مناطق پشتکمانی شکل بگیرند. صفحهٔ فرورونده، مواد فرّار و مواد محلول را به این آتشفشانها آزاد میکند و در نتیجه، سیالات اسیدی با غلظت گازها و فلزات بیشتر از پشتههای میاناقیانوسی ایجاد میشوند. این صفحه همچنین آب آزاد میکند که میتواند با مواد گوشته مخلوط شده و سرپانتینیت تشکیل دهد. هنگامی که آتشفشانهای تفتگاه در میانهٔ صفحات اقیانوسی رخ میدهند، بازالتهایی تراوا و متخلخل با غلظت گاز بیشتر از پشتههای میاناقیانوسی ایجاد میکنند. سیالات گرمابی در این مناطق سردتر بوده و سولفید کمتری دارند. باکتریهای اکسیدکنندهٔ آهن رسوبات گستردهای از اکسید آهن ایجاد میکنند.[۴۸]
آب منفذی
ریزسازوارهها در شکافها، سوراخها و فضاهای خالی درون رسوبات و سنگها زندگی میکنند. چنین فضاهای خالی آب و مواد مغذی محلول را در اختیار ریزسازوارهها قرار میدهند. توجه داشته باشید که با افزایش عمق، مواد مغذی موجود در آب منفذی کاهش مییابند، زیرا ریزسازوارهها بهطور پیوسته مواد مغذی را مصرف میکنند. با افزایش عمق، رسوب متراکمتر میشود و فضای میان دانههای کانی کاهش مییابد. در نتیجه، آب منفذی کمتری در واحد حجم وجود دارد. با تبدیل رسوبات به سنگ، محیط بهتدریج خشکتر میشود. در این مرحله، آب نیز میتواند به یک عامل محدودکننده برای زیستکرهٔ ژرف تبدیل شود.[۳۶]
قارهها
قارهها تاریخچهای پیچیده و تنوع زیادی از سنگها، رسوبات و خاکها دارند؛ آبوهوا در سطح، الگوهای دما و هیدرولوژی نیز متفاوتاند. بیشتر اطلاعات دربارهٔ حیات زیرسطحی از تعداد محدودی محل نمونهبرداری بهدست آمده که عمدتاً در آمریکای شمالی قرار دارند. بهاستثنای مغزههای یخی، چگالی سلولها با افزایش عمق بهشدت کاهش مییابد و چندین مرتبهٔ بزرگی افت میکند. در یک یا دو متر بالایی خاک، جانداران به اکسیژن وابستهاند و هتروتروف هستند؛ یعنی برای تغذیه به تجزیهٔ کربن آلی وابستهاند و کاهش چگالی آنها با کاهش مادهٔ آلی همگام است. در زیر این بخش، همبستگیای وجود ندارد، هرچند هم چگالی سلولها و هم محتوای آلی حدود پنج مرتبهٔ بزرگی دیگر کاهش مییابد (در مقابل، در رسوبات اقیانوسی همبستگی وجود دارد). افزایش عمق، دما و شوری با کاهش تعداد سلولها همبستگی دارد، هرچند نرخ این کاهش بهشدت به نوع پوسته و نرخ تغذیهٔ دوبارهٔ آب زیرزمینی بستگی دارد.[۷۲]
میکروبها در سنگهای رسوبی تا حدود ۳ کیلومتر (۱٫۹ مایل)، یعنی عمیقترین عمقی که نمونهبرداری شده است، یافت شدهاند. تنوع زیادی وجود دارد، هرچند در عمیقترین بخشها جانداران غالباً باکتریهای کاهندهٔ آهن(III) یا سولفات هستند که از تخمیر استفاده میکنند و میتوانند در دما و شوری بالا رشد کنند. نمکدوستهای حتی مقاومتر به نمک نیز در ذخایر عمیق نمک، که در سراسر جهان یافت میشوند، کشف شدهاند.[۸۵] در سال ۲۰۱۹، جانداران میکروبی در عمق ۲۴۰۰ متری زیر سطح زمین کشف شدند که با تنفس گوگرد و خوردن سنگهایی مانند پیریت بهعنوان منبع غذایی معمول خود زندگی میکردند.[۸۶][۸۷][۸۸] این کشف در قدیمیترین آب شناختهشدهٔ روی زمین رخ داد.[۸۹] مطالعهٔ نشانگرهای زیستی در نمونههای کانیهای رگهای از بیش از ۳۰ معدن عمیق در سپر بالتیک ثابت میکند که نشانههای حیات باستانی در سراسر این سپر بهطور گسترده وجود دارند.[۹۰]
انسانها برای اهداف گوناگون، از جمله استخراج آب زیرزمینی، معدنکاری و ذخیرهٔ پسماندهای خطرناک، به آبخوانهای عمیق در سنگهای آذرین دسترسی پیدا کردهاند. بیشتر یا همهٔ این آبخوانها میزبان میکروبها هستند. در تمام محلهایی که بررسی شدهاند، هیدروژن، متان و دیاکسید کربن یافت شده است.[۸۵] اجتماعات پروکاریوتهای مبتنی بر هیدروژن نیز در چشمههای آب گرم و سامانههای گرمابی یافت شدهاند. سازوکارهای گوناگونی برای تولید هیدروژن پیشنهاد شده است که برخی از آنها مستقل از فتوسنتز هستند.[۶۷]
بومشناسی
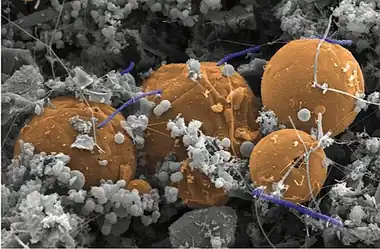
یک گونهٔ باکتری، «کانیدیاتوس دسولفورودیس آداکسویاتور»، نخستین جاندار شناختهشدهای است که بهتنهایی یک اکوسیستم کامل را تشکیل میدهد.[۱۲] این باکتری در عمق ۲٫۸ کیلومتر (۱٫۷ مایل) زیر سطح زمین، در یک معدن طلا در نزدیکی ژوهانسبورگ آفریقای جنوبی، یافت شد. در آب قلیایی با دمای حدود ۶۰ درجهٔ سانتیگراد و بدون دسترسی به اکسیژن، این جاندار با کاهش سولفات انرژی بهدست میآورد، نیتروژن خود را از مولکولهای آمونیاک و یونهای آمونیوم و کربن خود را از دیاکسید کربن یا فرمات تأمین میکند.[۹۱][۹۲] سوابق ایزوتوپهای پایدار کانیهای (ثانویهٔ) پوشانندهٔ شکستگی در زیستکرهٔ ژرفِ قارهایِ میزبانیشده در سنگهای آذرین، حاکی از وقوع درازمدت متانزایی، متانوتروف و کاهش سولفات هستند.[۹۳] روابط ریختشناختی و مکانی–زمانی نشاندهندهٔ یک رابطهٔ بالقوهٔ سینتروفیک میان این فرایندهای سوختوسازی پروکاریوتی و قارچها هستند.[۸۱][۹۴]
دیگر اکوسیستمها شامل چندین گونهٔ وابسته به یکدیگر هستند. این جانداران را میتوان به خودپروردگان، که انرژی خود را از منابع غیرزنده بهدست میآورند، و دگرپروردگان، که از خودپروردگان یا بقایای آنها تغذیه میکنند، تقسیم کرد. برخی جانداران وارد سینتروفی میشوند؛ یعنی یک جاندار از محصولات جانبی فعالیت سوختوسازی جاندار دیگر استفاده میکند. در سطح زمین، بیشتر خودپروردگان از فتوسنتز استفاده میکنند، اما در جایی که نور وجود ندارد، شیمیوخودپروردگان از انرژی شیمیایی بهره میگیرند.[۹۵]
در رسوبات دریایی که اکسیژن در آنها موجود است، یکی از گروههای اصلی شیمیوخودپروردگان، نیتروسوفاریاهای باستانیانِ اکسیدکنندهٔ آمونیاک هستند. آنها از ۱۹٪ تولید هتروتروفی پشتیبانی میکنند. در برخی محیطها، مانند رسوبات مغاکی اقیانوس آرام، عرضهٔ آمونیاک با افزایش عمق کاهش مییابد؛ اما در محیطهای دیگر، آمونیاک در واقع افزایش مییابد، زیرا باکتریهای هتروتروف که از مواد آلی تغذیه میکنند، آمونیاک را بازکانیسازی میکنند. این وابستگی متقابل میان باکتریهای هتروتروف و نیتروسوفاریا نمونهای از سینتروفی است. بااینحال، برخی نیتروسوفاریاها میکسوتروف هستند و میتوانند هم از مادهٔ آلی و هم از دیاکسید کربن برای تأمین کربن استفاده کنند.[۷۰]
در رسوبات بیاکسیژن، هیدروژن یک «خوراک» مهم است. اعضای شاخهٔ باکتریایی کلروفلکسی از هیدروژن انرژی میگیرند تا با کاهش دیاکسید کربن یا مادهٔ آلی، استات تولید کنند؛ فرایندی که استاتوژنز نام دارد. باکتریهای کاهندهٔ فلزات و باکتریهای تخمیرکنندهٔ قند از شاخهٔ باکتروئیدها، از جمله ترکیبات دیگر، پروپانوئیک اسید تولید میکنند و «سیای. آتریباکتروتا» آن را تخمیر کرده و هیدروژن تولید میکند. در رسوبات بالایی، باکتریهای کاهندهٔ سولفات بیشتر هیدروژن را مصرف میکنند، درحالیکه در رسوبات پایینی سولفات کاهش یافته و متانزاها غالب میشوند. در ناحیهٔ گذار سولفات–متان (SMTZ)، باستانیان متانخوار بیهوازی (ANME) با باکتریهای کاهندهٔ سولفات کنسرسیوم تشکیل میدهند.[۷۰][۶۶]
جستارهای وابسته
یادداشتها
منابع
- ↑ McMahon, Sean; Parnell, John (2014-01-01). "Weighing the deep continental biosphere". FEMS Microbiology Ecology. 87 (1): 113–120. doi:10.1111/1574-6941.12196. ISSN 0168-6496.
- ↑ Kallmeyer, Jens; Pockalny, Robert; Adhikari, Rishi Ram; Smith, David C.; D’Hondt, Steven (2012-10-02). "Global distribution of microbial abundance and biomass in subseafloor sediment". Proceedings of the National Academy of Sciences. 109 (40): 16213–16216. doi:10.1073/pnas.1203849109. PMC 3479597. PMID 22927371.
- 1 2 3 4 5 Hoehler, Tori M.; Jorgensen, Bo Barker (16 January 2013). "Microbial life under extreme energy limitation". Nature Reviews Microbiology. 11 (2): 83–94. Bibcode:2013NatMb..11...83C. doi:10.1038/nrmicro2939. hdl:2060/20150018056. PMID 23321532. S2CID 461070.
- ↑ Schippers, A. (2015). "Deep biosphere". In Harff, J.; Meschede, M.; Petersen, S.; Thiede, J. (eds.). Encyclopedia of Marine Geosciences. Dordrecht: Springer. ISBN 978-94-007-6644-0.
- 1 2 3 Bar-On, Yinon M.; Phillips, Rob; Milo, Ron (19 June 2018). "The biomass distribution on Earth". Proceedings of the National Academy of Sciences. 115 (25): 6506–6511. Bibcode:2018PNAS..115.6506B. doi:10.1073/pnas.1711842115. PMC 6016768. PMID 29784790.
- 1 2 3 Edwards, Katrina (2 September 2011). "North Pond: Searching for Intraterrestrial Life". Scientific American Blog Network (in English). Retrieved 18 January 2019.
- ↑ Judson, Olivia (10 June 2008). "Meet the Intraterrestrials". Opinionator. Retrieved 18 January 2019.
- ↑ Gold, Thomas (1992). "The Deep, Hot Biosphere". Proc Natl Acad Sci. 89 (13): 6045–6049. Bibcode:1992PNAS...89.6045G. doi:10.1073/pnas.89.13.6045. PMC 49434. PMID 1631089.
- ↑ Alley, William M. (1993). Regional Ground-Water Quality. John Wiley & Sons. p. 182. ISBN 978-0-471-28453-6.
- ↑ Ward, Peter D.; Brownlee, Donald (2006). Rare earth: why complex life is uncommon in the universe (Pbk. ed.). Copernicus. pp. 7–12. ISBN 978-0-387-21848-9.
- 1 2 3 Onstott 2016 Chapter 1
- 1 2 3 4 Leigh Mascarelli, Amanda (11 June 2009). "Low life". Nature. 459 (7248): 770–773. doi:10.1038/459770a. PMID 19516316.
- 1 2 3 4 Edwards, Katrina J.; Becker, Keir; Colwell, Frederick (30 May 2012). "The Deep, Dark Energy Biosphere: Intraterrestrial Life on Earth". Annual Review of Earth and Planetary Sciences. 40 (1): 551–568. Bibcode:2012AREPS..40..551E. doi:10.1146/annurev-earth-042711-105500.
- 1 2 Fredrickson, James K.; Onstott, Tullis C. (1996). "Microbes Deep inside the Earth". Scientific American. 275 (4): 68–73. Bibcode:1996SciAm.275d..68F. doi:10.1038/scientificamerican1096-68. JSTOR 24993405. PMID 8797299.
- 1 2 3 4 5 6 7 Colwell, F. S.; D'Hondt, S. (13 February 2013). "Nature and Extent of the Deep Biosphere". Reviews in Mineralogy and Geochemistry. 75 (1): 547–574. Bibcode:2013RvMG...75..547C. doi:10.2138/rmg.2013.75.17.
- ↑ Onstott 2016 Chapter 6
- 1 2 3 4 Colman, Daniel (3 July 2017). "The deep, hot biosphere: Twenty-five years of retrospection". PNAS. 114 (27): 6895–6903. Bibcode:2017PNAS..114.6895C. doi:10.1073/pnas.1701266114. PMC 5502609. PMID 28674200.
- ↑ "Leg 201: Controlson microbial communitiesin deeply buriedsediments, eastern EquatorialPacific and PeruMargin sites 1225–1231". OceanDrilling Program. Retrieved 20 July2019.
{{cite web}}: تاریخ وارد شده در|access-date= - 1 2 3 خطای یادکرد: خطای یادکرد:برچسب
<ref> غیرمجاز؛ متنی برای یادکردهای با نام:1وارد نشده است. (صفحهٔ راهنما را مطالعه کنید.). - ↑ "T-Limit of theDeep Biosphere offMuroto". www.jamstec.go.jp. Retrieved 2021-07-06.
- 1 2 3 Deep Carbon Observatory (2019). Deep Carbon Observatory: A Decade of Discovery. Washington, DC. doi:10.17863/CAM.44064. Retrieved 13 December 2019.
{{cite book}}: نگهداری یادکرد:مکان بدون ناشر (رده) - ↑ Kieft, T.; Phelps, T.; Fredrickson, J. (2007). "66. Drilling, Coring, and Sampling SubsurfaceEnvironments". In Hurst, C.; Crawford, R.; Garland, J.; Lipson, D.; Mills, A.; Stetzenbach, L. (eds.). Manual ofEnvironmental Microbiology (3rd ed.). Washington, DC: ASM Press. doi:10.1128/9781555815882.ch66. ISBN 978-1-55581-588-2.
- ↑ Gihring, T. M.; Moser, D. P.; Lin, L.-H.; Davidson, M.; Onstott, T. C.; Morgan, L.; Milleson, M.; Kieft, T. L.; Trimarco, E. (1 September2006). "TheDistribution of MicrobialTaxa in theSubsurface Water ofthe Kalahari Shield, South Africa". Geomicrobiology Journal. 23 (6): 415–430. Bibcode:2006GmbJ...23..415G. doi:10.1080/01490450600875696. ISSN 0149-0451. S2CID 84707436.
{{cite journal}}: تاریخ وارد شده در|date= - ↑ Itävaara, Merja; Ahonen, Lasse; Numminen, Mikko; Sohlberg, Elina; Kietäväinen, Riikka; Miettinen, Hanna (2015). "Microbiome compositionand geochemical characteristicsof deep subsurfacehigh-pressure environment, Pyhäsalmi mine Finland". Frontiers inMicrobiology (in English). 6: 1203. doi:10.3389/fmicb.2015.01203. ISSN 1664-302X. PMC 4626562. PMID 26579109.
- ↑ Mangelsdorf, Kai; Kallmeyer, Jens (10 September2010). "Integration ofDeep Biosphere Researchinto the InternationalContinental ScientificDrilling Program". Scientific Drilling. 10 (10, September 2010): 46–55. doi:10.2204/iodp.sd.10.0.2010.
{{cite journal}}: تاریخ وارد شده در|date= - ↑ "CORKs". OceanNetworks Canada (in English). 15 October 2012. Retrieved 18July 2019.
{{cite web}}: تاریخ وارد شده در|access-date= - ↑ Becker, Keir; Davis, EarlE. (31October 2005). "Areview of CORKdesigns and operationsduring the OceanDrilling Program". Proceedings of theIntegrated Ocean DrillingProgram. Proceedings ofthe IODP. 301. doi:10.2204/iodp.proc.301.104.2005.
{{cite journal}}: تاریخ وارد شده در|date= - ↑ "Packers andFlowmeters Tool Sheet". Overview ofOcean Drilling ProgramEngineering Tools andHardware. OceanDrilling Program. Retrieved 23 August2019.
{{cite web}}: تاریخ وارد شده در|access-date= - ↑ Kulin, Ian; Riedel, Michael; Klaus, Adam (2013). "Simplecabled instrument formeasuring Parameters Insitu (SCIMPI) andHole 858G CORKreplacement". IODPScientific Prospectus. 341S. doi:10.2204/iodp.sp.341S.2013.
- ↑ Purkamo, Lotta; Bomberg, Malin; Nyyssönen, Mari; Kukkonen, Ilmo; Ahonen, Lasse; Kietäväinen, Riikka; Itävaara, Merja (2013). "Dissectingthe deep biosphere: retrieving authentic microbialcommunities from packer-isolated deep crystallinebedrock fracture zones". FEMS MicrobiologyEcology (in English). 85 (2): 324–337. Bibcode:2013FEMME..85..324P. doi:10.1111/1574-6941.12126. ISSN 1574-6941. PMID 23560597.
- ↑ Nurmi, Pekka A.; Kukkonen, IlmoT. (1986). "Anew technique forsampling water andgas from deepdrill holes". Canadian Journal ofEarth Sciences. 23 (9): 1540–1454. Bibcode:1986CaJES..23.1450N. doi:10.1139/e86-138.
- ↑ Kietäväinen, Riikka; Ahonen, Lasse; Kukkonen, Ilmo T.; Hendriksson, Nina; Nyyssönen, Mari; Itävaara, Merja (1 May 2013). "Characterisationand isotopic evolutionof saline watersof the OutokumpuDeep Drill Hole, Finland – Implicationsfor water originand deep terrestrialbiosphere". AppliedGeochemistry. SpecialIssue Devoted tothe 9th InternationalSymposium on AppliedIsotope Geochemistry (AIG9), Tarragona, Spain, September2011. 32: 37–51. Bibcode:2013ApGC...32...37K. doi:10.1016/j.apgeochem.2012.10.013. ISSN 0883-2927.
- ↑ Haggerty, R.; Schroth, M.H.; Istok, J.D. (March 1998). "Simplified Method of"Push-Pull" TestData Analysis forDetermining In SituReaction Rate Coefficients". Ground Water. 36 (2): 314–324. Bibcode:1998GrWat..36..314H. doi:10.1111/j.1745-6584.1998.tb01097.x. S2CID 140663085.
- ↑ Sanders, Robert (5 May 2005). "Proteomics bringsresearchers closer tounderstanding microbesthat produce acidmine drainage" (Press release). University ofCalifornia Berkeley. Retrieved 19July 2019.
{{cite press release}}: تاریخ وارد شده در|access-date= - 1 2 Orell, Alvaro; Fröls, Sabrina; Albers, Sonja-Verena (8 September 2013). "Archaeal Biofilms: The Great Unexplored". Annual Reviewof Microbiology. 67 (1): 337–354. doi:10.1146/annurev-micro-092412-155616. PMID 23808336.
- 1 2 3 4 5 6 7 Tsang, Man-Yin; Inagaki, Fumio (2020). "Microbial Life Deep Under the Seafloor—A Story of Not Giving Up". Frontiers for Young Minds (in English). 8. doi:10.3389/frym.2020.00070. S2CID 218981468.
- ↑ Bowles, Marshall W.; Mogollón, José M.; Kasten, Sabine; Zabel, Matthias; Hinrichs, Kai-Uwe (2014-05-23). "Global rates of marine sulfate reduction and implications for sub–sea-floor metabolic activities". Science. 344 (6186): 889–891. Bibcode:2014Sci...344..889B. doi:10.1126/science.1249213. ISSN 0036-8075. PMID 24812207. S2CID 25475098.
- ↑ Jørgensen, Bo Barker (April 1982). "Mineralization of organic matter in the sea bed—the role of sulphate reduction". Nature (in English). 296 (5858): 643–645. Bibcode:1982Natur.296..643J. doi:10.1038/296643a0. ISSN 0028-0836. S2CID 4308770.
- ↑ Jørgensen, Bo Barker; Kasten, Sabine (2006), "Sulfur Cycling and Methane Oxidation", Marine Geochemistry, Berlin/Heidelberg: Springer-Verlag, pp. 271–309, doi:10.1007/3-540-32144-6_8, ISBN 3-540-32143-8
- ↑ "TheThe [کذا] LostCity 2005 Expedition". Ocean Explorer. National Oceanicand Atmospheric Administration. Retrieved 11November 2019.
{{cite web}}: تاریخ وارد شده در|access-date= - ↑ Pohl, Walter (2011). Economic Geology: Principlesand Practice. Wiley. p. 89. ISBN 978-1-4443-9486-3.
- 1 2 3 4 خطای یادکرد: خطای یادکرد:برچسب
<ref> غیرمجاز؛ متنی برای یادکردهای با نامOrcutt2011وارد نشده است. (صفحهٔ راهنما را مطالعه کنید.). - ↑ Nealson, KennethH. (March2003). "Harnessingmicrobial appetites forremediation". NatureBiotechnology. 21 (3): 243–244. doi:10.1038/nbt0303-243. PMID 12610569. S2CID 38153041.
{{cite journal}}: تاریخ وارد شده در|date= - ↑ Orcutt, Beth N.; Sylvan, Jason B.; Knab, Nina J.; Edwards, Katrina J. (2011-06). "Microbial ecology of the dark ocean above, at, and below the seafloor". Microbiology and molecular biology reviews: MMBR. 75 (2): 361–422. doi:10.1128/MMBR.00039-10. ISSN 1098-5557. PMC 3122624. PMID 21646433.
{{cite journal}}: تاریخ وارد شده در|date= - ↑ Orcutt, Beth N.; Sylvan, Jason B.; Knab, Nina J.; Edwards, Katrina J. (2011-06-27). "Microbial ecology of the dark ocean above, at, and below the seafloor". Microbiology and molecular biology reviews: MMBR. 75 (2): 361–422. doi:10.1128/MMBR.00039-10. ISSN 1098-5557. PMC 3122624. PMID 21646433.
- ↑ Jørgensen, Bo Barker; Boetius, Antje (2007-10-07). "Feast and famine — microbial life in the deep-sea bed". Nature Reviews Microbiology (in English). 5 (10). Nature Publishing Group: 770–781. doi:10.1038/nrmicro1745. ISSN 1740-1534.
- ↑ Bender, Michael L.; Heggie, David T. (May 1984). "Fate of organic carbon reaching the deep sea floor: a status report". Geochimica et Cosmochimica Acta (in English). 48 (5): 977–986. Bibcode:1984GeCoA..48..977B. doi:10.1016/0016-7037(84)90189-3.
- 1 2 3 4 5 6 7 8 9 10 11 12 Schrenk, Matthew O.; Huber, Julie A.; Edwards, Katrina J. (January 2010). "Microbial Provinces in the Subseafloor". Annual Review of Marine Science. 2 (1): 279–304. Bibcode:2010ARMS....2..279S. doi:10.1146/annurev-marine-120308-081000. PMID 21141666.
- 1 2 3 4 Rothschild, Lynn J.; Mancinelli, Rocco L. (February 2001). "Life in extreme environments". In Yamagishi, Akihiko; Kakegawa, Takeshi; Usui, Tomhiro (eds.). Astrobiology: from the origins of life to the search for extraterrestrial intelligence. Vol. 409. Singapore: Springer. pp. 1092–1101. doi:10.1038/35059215. ISBN 978-981-13-3639-3. PMID 11234023. S2CID 529873.
{{cite book}}: از|journal=صرفنظر شد (کمک) - ↑ Cario, Anaïs; Oliver, Gina C.; Rogers, Karyn L. (4 September 2019). "Exploring the Deep Marine Biosphere: Challenges, Innovations, and Opportunities". Frontiers in Earth Science. 7: 225. Bibcode:2019FrEaS...7..225C. doi:10.3389/feart.2019.00225.
- ↑ "Deep-Sea Microbes Prefer High-Pressure Lifestyles". Deep Carbon Observatory (in English). 23 July 2019. Archived from the original on 15 November 2019. Retrieved 15 November 2019.
- ↑ Tamburini, Christian; Boutrif, Mehdi; Garel, Marc; Colwell, Rita R.; Deming, Jody W. (May 2013). "Prokaryotic responses to hydrostatic pressure in the ocean - a review" (PDF). Environmental Microbiology. 15 (5): 1262–1274. Bibcode:2013EnvMi..15.1262T. doi:10.1111/1462-2920.12084. PMID 23419081.
- ↑ "The PUSH for High-Pressure Microbiology". Deep Carbon Observatory (in English). 30 September 2019. Archived from the original on 15 November 2019. Retrieved 15 November 2019.
- 1 2 Heuer, Verena; Lever, Mark; Morono, Yuki; Teske, Andreas (1 March 2019). "The Limits of Life and the Biosphere in Earth's Interior". Oceanography. 32 (1): 208–211. doi:10.5670/oceanog.2019.147.
- ↑ McKay, C. P. (9 June 2014). "Requirements and limits for life in the context of exoplanets". Proceedings of the National Academy of Sciences. 111 (35): 12628–12633. Bibcode:2014PNAS..11112628M. doi:10.1073/pnas.1304212111. PMC 4156692. PMID 24927538.
- ↑ Takai, Ken (2019). "Limits of Terrestrial Life and Biosphere". Astrobiology. pp. 323–344. doi:10.1007/978-981-13-3639-3_20. ISBN 978-981-13-3638-6. S2CID 134158036.
- 1 2 3 4 5 6 Colman, Daniel R.; Poudel, Saroj; Stamps, Blake W.; Boyd, Eric S.; Spear, John R. (3 July 2017). "The deep, hot biosphere: Twenty-five years of retrospection". Proceedings of the National Academy of Sciences. 114 (27): 6895–6903. Bibcode:2017PNAS..114.6895C. doi:10.1073/pnas.1701266114. PMC 5502609. PMID 28674200.
- ↑ Drake, H., Reiners, P.W. Thermochronologic perspectives on the deep-time evolution of the deep biosphere. Proceedings of the National Academy of Sciences Nov 2021, 118 (45) e2109609118; DOI:10.1073/pnas.2109609118
- ↑ Biddle, Jennifer F.; Sylvan, Jason B.; Brazelton, William J.; Tully, Benjamin J.; Edwards, Katrina J.; Moyer, Craig L.; Hedelberg, John F.; Nelson, William C. (2012). "Prospects for the study of evolution in the deep biosphere". Frontiers in Microbiology. 2: 285. doi:10.3389/fmicb.2011.00285. PMC 3265032. PMID 22319515.
- ↑ Tsang, Man-Yin; Bowden, Stephen A.; Wang, Zhibin; Mohammed, Abdalla; Tonai, Satoshi; Muirhead, David; Yang, Kiho; Yamamoto, Yuzuru; Kamiya, Nana; Okutsu, Natsumi; Hirose, Takehiro; Kars, Myriam; Schubotz, Florence; Ljiri, Akira; Yamada, Yasuhiro; Kubo, Yusuke; Morono, Yuki; Inagaki, Fumio; Heuer, Verena B.; Hinrichs, Kai-Uwe (2020-02-01). "Hot fluids, burial metamorphism and thermal histories in the underthrust sediments at IODP 370 site C0023, Nankai Accretionary Complex". Marine and Petroleum Geology (in English). 112 104080. Bibcode:2020MarPG.11204080T. doi:10.1016/j.marpetgeo.2019.10.2019.2019.104080. hdl:2164/13157. ISSN 0264-8172. S2CID 207994536.
- ↑ Hoehler, Tori M.; Jørgensen, Bo Barker (2013-02-13). "Microbial life under extreme energy limitation". Nature Reviews Microbiology (in English). 11 (2). Nature Publishing Group: 83–94. doi:10.1038/nrmicro2939. ISSN 1740-1534.
- ↑ Morono, Yuki; Ito, Motoo; Hoshino, Tatsuhiko; Terada, Takeshi; Hori, Tomoyuki; Ikehara, Minoru; D’Hondt, Steven; Inagaki, Fumio (2020-07-28). "Aerobic microbial life persists in oxic marine sediment as old as 101.5 million years". Nature Communications (in English). 11 (1): 3626. doi:10.1038/s41467-020-17330-1. ISSN 2041-1723. PMC 7387439.
- 1 2 D'Hondt, Steven; Rutherford, Scott; Spivack, Arthur J. (2002-03-15). "Metabolic Activity of Subsurface Life in Deep-Sea Sediments". Science. 295 (5562): 2067–2070. doi:10.1126/science.1064878.
- 1 2 3 Collins, Terry; Pratt, Katie (10 December 2018). "Life in deep Earth totals 15 to 23 billion tonnes of carbon—hundreds of times more than humans" (Press release). Deep Carbon Observatory. Archived from the original on 30 December 2018. Retrieved 14 July 2019.
- ↑ سلولهای زیرزمینی بدون نور، «اکسیژن تاریک» تولید میکنند | Quanta Magazine
- 1 2 3 4 5 6 7 Petro, C; Starnawski, P; Schramm, A; Kjeldsen, KU (12 June 2017). "Microbial community assembly in marine sediments". Aquatic Microbial Ecology. 79 (3): 177–195. doi:10.3354/ame01826.
- 1 2 3 Parkes, R. John; Cragg, Barry; Roussel, Erwan; Webster, Gordon; Weightman, Andrew; Sass, Henrik (June 2014). "A review of prokaryotic populations and processes in sub-seafloor sediments, including biosphere:geosphere interactions". Marine Geology. 352: 409–425. Bibcode:2014MGeol.352..409P. doi:10.1016/j.margeo.2014.02.009.
- ↑ Hug, Laura A.; Baker, Brett J.; Anantharaman, Karthik; Brown, Christopher T.; Probst, Alexander J.; Castelle, Cindy J.; Butterfield, Cristina N.; Hernsdorf, Alex W.; Amano, Yuki; Ise, Kotaro; Suzuki, Yohey; Dudek, Natasha; Relman, David A.; Finstad, Kari M.; Amundson, Ronald; Thomas, Brian C.; Banfield, Jillian F. (11 April 2016). "A new view of the tree of life". Nature Microbiology. 1 (5): 16048. doi:10.1038/NMICROBIOL.2016.48. PMID 27572647.
- ↑ Lee, Yung Mi; Hwang, Kyuin; Lee, Jae Il; Kim, Mincheol; Hwang, Chung Yeon; Noh, Hyun-Ju; Choi, Hakkyum; Lee, Hong Kum; Chun, Jongsik; Hong, Soon Gyu; Shin, Seung Chul (29 November 2018). "Genomic Insight Into the Predominance of Candidate Phylum Atribacteria JS1 Lineage in Marine Sediments". Frontiers in Microbiology. 9: 2909. doi:10.3389/fmicb.2018.02909. PMC 6281690. PMID 30555444.
- 1 2 3 4 5 6 7 Orsi, William D. (2 July 2018). "Ecology and evolution of seafloor and subseafloor microbial communities". Nature Reviews Microbiology. 16 (11): 671–683. doi:10.1038/s41579-018-0046-8. PMID 29967420. S2CID 49559285.
- ↑ MacLeod, Fraser; S. Kindler, Gareth; Lun Wong, Hon; Chen, Ray; P. Burns, Brendan (2019). "Asgard archaea: Diversity, function, and evolutionary implications in a range of microbiomes". AIMS Microbiology. 5 (1): 48–61. doi:10.3934/microbiol.2019.1.48. PMC 6646929. PMID 31384702.
- 1 2 Magnabosco, C.; Lin, L.-H.; Dong, H.; Bomberg, M.; Ghiorse, W.; Stan-Lotter, H.; Pedersen, K.; Kieft, T. L.; van Heerden, E.; Onstott, T. C. (24 September 2018). "The biomass and biodiversity of the continental subsurface". Nature Geoscience. 11 (10): 707–717. Bibcode:2018NatGe..11..707M. doi:10.1038/s41561-018-0221-6. S2CID 133768246.
- ↑ Mosher, Dave (2 June 2011). "New "Devil Worm" Is Deepest-Living Animal". National Geographic News. Archived from the original on 4 June 2011. Retrieved 2 July 2019.
- ↑ "Deep life not limited to microbes: Earthquakes move surface animals to the deep" (Press release) (in English). Deep Carbon Observatory. 4 March 2019. Archived from the original on 4 December 2022. Retrieved 14 July 2019.
- ↑ Itävaara, Merja; Vikman, Minna; Salavirta, Heikki; Nyyssönen, Mari; Miettinen, Hanna; Bomberg, Malin; Sohlberg, Elina (2015). "Revealing the unexplored fungal communities in deep groundwater of crystalline bedrock fracture zones in Olkiluoto, Finland". Frontiers in Microbiology (in English). 6: 573. doi:10.3389/fmicb.2015.00573. ISSN 1664-302X. PMC 4460562. PMID 26106376.
- ↑ Bomberg, Malin; Itävaara, Merja; Kukkonen, Ilmo; Sohlberg, Elina; Miettinen, Hanna; Kietäväinen, Riikka; Purkamo, Lotta (1 August 2018). "Diversity and functionality of archaeal, bacterial and fungal communities in deep Archaean bedrock groundwater". FEMS Microbiology Ecology (in English). 94 (8). doi:10.1093/femsec/fiy116. ISSN 0168-6496. PMID 29893836.
- ↑ "Fungi are key players of the deep biosphere". ScienceDaily (in English). Retrieved 22 August 2019.
- ↑ Borgonie, G.; Linage-Alvarez, B.; Ojo, A. O.; Mundle, S.O.C.; Freese, L B.; Van Rooyen, C.; Kuloyo, O.; Albertyn, J.; Pohl, C.; Cason, E. D.; Vermeulen, J.; Pienaar, C.; Litthauer, D.; Van Niekerk, H.; Van Eeden, J.; Lollar, B. Sherwood.; Onstott, T. C.; Van Heerden, E. (24 November 2015). "Eukaryotic opportunists dominate the deep-subsurface biosphere in South Africa". Nature Communications. 6 (1): 8952. Bibcode:2015NatCo...6.8952B. doi:10.1038/ncomms9952. PMC 4673884. PMID 26597082.
- ↑ Ravindran, Sandeep (29 February 2016). "Inner Earth Is Teeming With Exotic Forms of Life". Smithsonian (in English). Retrieved 14 July 2019.
- ↑ Ivarsson, M.; Bengtson, S.; Neubeck, A. (April 2016). "The igneous oceanic crust – Earth's largest fungal habitat?". Fungal Ecology. 20: 249–255. Bibcode:2016FunE...20..249I. doi:10.1016/j.funeco.2016.01.009.
- 1 2 Drake, Henrik; Ivarsson, Magnus; Heim, Christine; Snoeyenbos-West, Oona; Bengtson, Stefan; Belivanova, Veneta; Whitehouse, Martin (2021-02-18). "Fossilized anaerobic and possibly methanogenesis-fueling fungi identified deep within the Siljan impact structure, Sweden". Communications Earth & Environment (in English). 2 (1): 34. Bibcode:2021ComEE...2...34D. doi:10.1038/s43247-021-00107-9. ISSN 2662-4435.
- ↑ Thomas Gold, The Deep Hot Biosphere – the Myth of Fossil Fuel, Spring Science+Business Media, ©1999, ISBN 978-0-387-95253-6, p.86
- ↑ Amos, Jonathan (10 December 2018). "The vast scale of life beneath our feet". BBC News. Retrieved 14 July 2019.
- ↑ Hentges, D. J. (1996). "17. Anaerobes: General Characteristics". In Baron, S. (ed.). Medical Microbiology (4th ed.). University of Texas Medical Branch at Galveston. ISBN 978-0-9631172-1-2. PMID 21413255. Retrieved 19 November 2019.
- 1 2 Pedersen, K (April 2000). "Exploration of deep intraterrestrial microbial life: current perspectives". FEMS Microbiology Letters. 185 (1): 9–16. doi:10.1111/j.1574-6968.2000.tb09033.x. PMID 10731600.
- ↑ Lollar, Garnet S.; Warr, Oliver; Telling, Jon; Osburn, Magdalena R.; Lollar, Barbara Sherwood (18 July 2019). "'Follow the Water': Hydrogeochemical Constraints on Microbial Investigations 2.4 km Below Surface at the Kidd Creek Deep Fluid and Deep Life Observatory". Geomicrobiology Journal. 36 (10): 859–872. Bibcode:2019GmbJ...36..859L. doi:10.1080/01490451.2019.1641770. S2CID 199636268.
- ↑ "World's Oldest Groundwater Supports Life Through Water-Rock Chemistry". Deep Carbon Observatory (in English). 29 July 2019. Archived from the original on 10 September 2019. Retrieved 15 November 2019.
- ↑ Powell, Corey S. (7 September 2019). "Strange life forms found deep in a mine point to vast 'underground Galapagos'". NBC News (in English). Retrieved 15 November 2019.
- ↑ Romuld, Maggie (14 December 2016). "Oldest Water on Earth Found Deep Within the Canadian Shield". The Science Explorer (in English). Retrieved 15 November 2019.
- ↑ Drake, Henrik; Roberts, Nick M. W.; Reinhardt, Manuel; Whitehouse, Martin; Ivarsson, Magnus; Karlsson, Andreas; Kooijman, Ellen; Kielman-Schmitt, Melanie (2021-06-03). "Biosignatures of ancient microbial life are present across the igneous crust of the Fennoscandian shield". Communications Earth & Environment (in English). 2 (1): 1–13. doi:10.1038/s43247-021-00170-2. ISSN 2662-4435.
- ↑ Starr, Laura (9 October 2008). "One is the loneliest number for mine-dwelling bacterium". Nature. doi:10.1038/news.2008.1160.
- ↑ DOE/Lawrence Berkeley National Laboratory (10 October 2008). "Journey Toward The Center Of The Earth: One-of-a-kind Microorganism Lives All Alone". ScienceDaily (in English). Retrieved 21 November 2019.
- ↑ Drake, Henrik; Åström, Mats E.; Heim, Christine; Broman, Curt; Åström, Jan; Whitehouse, Martin; Ivarsson, Magnus; Siljeström, Sandra; Sjövall, Peter (2015-05-07). "Extreme 13 C depletion of carbonates formed during oxidation of biogenic methane in fractured granite". Nature Communications (in English). 6 (1): 7020. Bibcode:2015NatCo...6.7020D. doi:10.1038/ncomms8020. ISSN 2041-1723. PMC 4432592. PMID 25948095.
- ↑ Drake, Henrik; Ivarsson, Magnus; Bengtson, Stefan; Heim, Christine; Siljeström, Sandra; Whitehouse, Martin J.; Broman, Curt; Belivanova, Veneta; Åström, Mats E. (2017-07-04). "Anaerobic consortia of fungi and sulfate reducing bacteria in deep granite fractures". Nature Communications (in English). 8 (1): 55. Bibcode:2017NatCo...8...55D. doi:10.1038/s41467-017-00094-6. ISSN 2041-1723. PMC 5496868. PMID 28676652.
- ↑ Chapman, J. L.; Reiss, Michael J. (1999). Ecology: principles and applications (2nd ed.). Cambridge University Press. pp. 8, 120–121. ISBN 978-0-521-58802-7.
- سامانههای زیستی
- زمینمیکروبشناسی