مایکوویروس
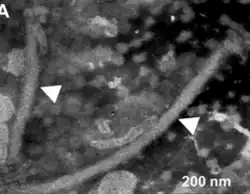
مایکوویروسها (از یونانی باستان: μύκης mykes ("قارچ") + لاتین virus)، که با نام مایکوفاژها نیز شناخته میشوند، ویروسهایی هستند که قارچها را آلوده میکنند. بیشتر مایکوویروسها دارای ژنوم آرانای دو رشتهای (dsRNA) و ذرات ایزومتریک هستند، اما حدود ۳۰٪ آنها دارای ژنوم آرانای تکرشتهای با سوی مثبت (+ssRNA) میباشند.[۱][۲]
مایکوویروسهای واقعی توانایی انتقال و آلوده کردن سایر قارچهای سالم را نشان میدهند. بسیاری از عناصر آرانای دورشتهای که در قارچها توصیف شدهاند با این توصیف مطابقت ندارند و در این موارد به آنها ذرات شبهویروسی یا VLPs گفته میشود. نتایج اولیه نشان میدهد که بیشتر مایکوویروسها همزمان با میزبانانشان تکامل یافتهاند، یعنی تبارزایی آنها تا حد زیادی با میزبانان اولیهشان همخوانی دارد.[۳] با این حال، نمونهبرداری از بسیاری از خانوادههای ویروسی که شامل مایکوویروسها هستند، بسیار پراکنده بوده است. مایکوویروسشناسی[۴] مطالعهٔ مایکوویروسها است. این شاخهای تخصصی از ویروسشناسی است که به دنبال درک و توصیف آرایهشناسی، دامنه میزبانی، منشأ و تکامل، انتقال و جابهجایی مایکوویروسها و تأثیر آنها بر فنوتیپ میزبان میباشد.
تاریخچه
نخستین ثبت از تأثیر اقتصادی مایکوویروسها بر قارچها، در قارچهای خوراکی پرورشی (Agaricus bisporus) در اواخر دههٔ ۱۹۴۰ ثبت شد و بیماری لافرانس نام گرفت.[۵] هالینگز بیش از سه نوع مختلف ویروس را در اسپوروفورهای غیرعادی یافت. این گزارش اساساً آغاز مایکوویروسشناسی محسوب میشود.[۴]
بیماری لافرانس همچنین با نامهای بیماری X، رگه آبکی، سرخشکیدگی و بیماری قهوهای شناخته میشود. علائم شامل موارد زیر است:
- کاهش بازده
- رشد آهسته و نابهنجار میسلیومی
- ماندابی شدن بافت
- بدشکلی
- بلوغ زودرس
- افزایش فساد پس از برداشت (کاهش عمر مفید)[۶]
قارچها هیچ مقاومتی در برابر ویروس نشان ندادهاند و بنابراین کنترل به اقدامات بهداشتی برای جلوگیری از گسترش ویروس محدود شده است.
شاید بهترین مایکوویروس شناختهشده Cryphonectria parasitica hypovirus 1 (CHV1) باشد. CHV1 در تحقیقات مایکوویروسشناسی به دلیل موفقیتش بهعنوان یک عامل کنترل زیستی علیه قارچ C. parasitica، عامل بیماری سوختگی بلایت شاهبلوط، در اروپا استثنایی است، و همچنین به این دلیل که یک موجود مدل برای مطالعه هیپوویرولانس در قارچها است. با این حال، این سیستم تنها در اروپا بهطور معمول استفاده میشود، به دلیل تعداد نسبتاً کم گروههای سازگاری رویشی (VCGs) در این قاره. در مقابل، در آمریکای شمالی، توزیع فنوتیپ هیپوویرولانس اغلب به دلیل واکنش ناسازگاری که از ادغام هیفهای قارچی و تبادل محتوای سیتوپلاسمی جلوگیری میکند، متوقف میشود. در ایالات متحده، حداقل ۳۵ VCG یافت شد.[۷] وضعیت مشابهی به نظر میرسد در چین و ژاپن وجود دارد، جایی که تاکنون ۷۱ VCG شناسایی شده است.[۸]
آرایهشناسی
بیشتر مایکوویروسها دارای ژنوم آرانای دو رشتهای (dsRNA) و ذرات ایزومتریک هستند، اما حدود ۳۰٪ آنها دارای ژنوم آرانای تکرشتهای با سوی مثبت (+ssRNA) میباشند.[۱][۲] با این حال، ویروسهای آرانای تکرشتهای با سوی منفی و ویروسهای دیانای تکرشتهای نیز توصیف شدهاند.[۹][۱۰][۱۱] گزارش نهم بهروزشدهٔ ICTV دربارهٔ آرایهشناسی ویروسها[۱۲] بیش از ۹۰ گونه مایکوویروس را فهرست کرده است که ۱۰ خانواده ویروسی را پوشش میدهند، که ۲۰٪ آنها به یک سرده یا در برخی موارد حتی به یک خانواده اختصاص نیافتهاند.
فرمهای ایزومتریک در ریختشناسی مایکوویروسها غالب هستند، در مقایسه با میلههای سخت، میلههای خمیده، ذرات چماقشکل، ذرات باسیلیفرم پوششدار و ویروسهای شبیه هرپسویروس.[۱۳] کمبود دادههای ژنومی اغلب مانع از تخصیص قطعی به گروههای ویروسی از پیش تثبیتشده میشود یا ایجاد خانوادهها و سردههای جدید را غیرممکن میسازد. مورد اخیر برای بسیاری از ویروسهای dsRNA بدون کپسید صادق است، که فرض میشود ویروسی باشند، اما فقدان دادههای توالییابی تاکنون مانع از طبقهبندی آنها شده است.[۱] تاکنون، ویروسهای خانوادههای Partitiviridae، Totiviridae و Narnaviridae بر "حوزه مایکوویروسها" غالب هستند.[۴]

دامنه میزبانی و شیوع
مایکوویروسها در قارچها رایج هستند (Herrero et al., 2009) و در هر چهار شاخه قارچهای حقیقی یافت میشوند: Chytridiomycota، Zygomycota، Ascomycota و Basidiomycota. قارچها اغلب با دو یا چند ویروس غیرمرتبط و همچنین با dsRNA ناقص و/یا dsRNA ماهوارهای آلوده میشوند.[۱۴][۱۵] همچنین ویروسهایی وجود دارند که صرفاً از قارچها بهعنوان ناقل استفاده میکنند و از مایکوویروسها متمایز هستند، زیرا نمیتوانند در سیتوپلاسم قارچی تولیدمثل کنند.[۱۶]
بهطور کلی فرض بر این است که دامنه میزبانی طبیعی مایکوویروسها به گروههای سازگاری رویشی (VCGs) نزدیک به هم محدود میشود که امکان ادغام سیتوپلاسمی را فراهم میکنند،[۱۷] اما برخی مایکوویروسها میتوانند در میزبانهای قارچی با آرایهبندی متفاوت تکثیر شوند.[۴] نمونههای خوب، میتوویروسهایی هستند که در دو گونه قارچی S. homoeocarpa و Ophiostoma novo-ulmi یافت شدهاند.[۱۸] Nuss و همکاران (۲۰۰۵) توصیف کردند که امکان گسترش دامنه میزبانی طبیعی هیپوویروس 1 C. parasitica (CHV1) به چندین گونه قارچی که خویشاوندی نزدیکی با C. parasitica دارند، با استفاده از تکنیکهای تراآلایی ویروس در شرایط آزمایشگاهی وجود دارد.[۱۹] CHV1 همچنین میتواند در سردههای Endothia و Valsa تکثیر شود،[۱۴] که به ترتیب به دو خانواده متمایز Cryphonectriaceae و Diaporthaceae تعلق دارند. افزون بر این، مشخص شده است که برخی از قارچهای بیماریزای انسانی نیز بهطور طبیعی با مایکوویروسها آلوده میشوند، از جمله AfuPmV-1 از Aspergillus fumigatus[۲۰] و TmPV1 از Talaromyces marneffei[۲۱] (سابقاً Penicillium marneffei).
در یک مطالعه، چهل بیمار مبتلا به لوسمی لنفوبلاستیک حاد دارای آنتیبادی علیه یک آسپرژیلوس فلاووس حاوی مایکوویروس بودند. در گزارش تحقیقاتی دیگری، قرار دادن سلولهای تکهستهای از بیماران مبتلا به لوسمی لنفوبلاستیک حاد در حال بهبودی کامل، منجر به توسعه مجدد فنوتیپهای ژنتیکی و سطح سلولی مشخصه لوسمی لنفوبلاستیک حاد شد.
منشأ و تکامل
فرض بر این است که ویروسهای متشکل از dsRNA و همچنین ssRNA بسیار باستانی هستند و احتمالاً از "جهان آرانای" منشأ گرفتهاند، زیرا هر دو نوع ویروس آرانای، باکتریها و همچنین یوکاریوتها را آلوده میکنند.[۲۲] اگرچه منشأ ویروسها هنوز بهخوبی درک نشده است،[۲۳] دادههای اخیراً ارائهشده نشان میدهند که ویروسها ممکن است در مراحل اولیه حیات بر روی زمین، از یک استخر اجدادی به "ابرگروههای" نوظهور یوکاریوتها وارد شده باشند. به گفته کونین،[۲۳] ویروسهای آرانای ابتدا یوکاریوتها را مستعمره کردند و متعاقباً با میزبانان خود تکامل همزمان یافتند. این مفهوم با "فرضیه همتکاملی باستانی" پیشنهادشده مطابقت دارد، که همچنین یک همتکاملی طولانی ویروسها و قارچها را فرض میکند.[۱][۱۳] "فرضیه همتکاملی باستانی" میتواند توضیح دهد که چرا مایکوویروسها بسیار متنوع هستند.[۱۳][۲۴]
همچنین پیشنهاد شده است که بسیار محتمل است که ویروسهای گیاهی حاوی پروتئین حرکتی، با معرفی یک فاز خارجسلولی به چرخه زندگی خود به جای حذف آن، از مایکوویروسها تکامل یافته باشند. علاوه بر این، کشف اخیر یک مایکوویروس ssDNA برخی محققان را وسوسه کرده است[۱۰] که پیشنهاد کنند ویروسهای آرانای و دیانای ممکن است سازوکارهای تکاملی مشترکی داشته باشند. با این حال، موارد زیادی وجود دارد که مایکوویروسها با ویروسهای گیاهی گروهبندی میشوند. برای مثال، CHV1 خویشاوندی تبارزایی با سرده ssRNA Potyvirus نشان داد،[۲۵] و برخی از ویروسهای ssRNA، که فرض میشد هیپوویرولانس یا تضعیف ایجاد میکنند، اغلب بیشتر به ویروسهای گیاهی مرتبط بودند تا به سایر مایکوویروسها.[۱] بنابراین، نظریه دیگری مطرح شد که این ویروسها از یک میزبان گیاهی به یک میزبان قارچی بیماریزای گیاهی یا بالعکس منتقل شدهاند. این "فرضیه ویروس گیاهی" ممکن است توضیح ندهد که مایکوویروسها در ابتدا چگونه توسعه یافتهاند، اما میتواند به درک چگونگی تکامل بیشتر آنها کمک کند.
انتقال
تفاوت قابلتوجهی بین ژنوم مایکوویروسها و سایر ویروسها، عدم وجود ژنهای پروتئینهای 'حرکت سلول به سلول' است. بنابراین فرض میشود که مایکوویروسها تنها در طول تقسیم سلولی (به عنوان مثال، اسپوروژنز) یا از طریق ادغام هیفها بهصورت بینسلولی حرکت میکنند.[۱۴][۲۶] مایکوویروسها ممکن است به سادگی به یک مسیر خارجی عفونت نیاز نداشته باشند، زیرا به دلیل سبک زندگی میزبان قارچی خود، ابزارهای زیادی برای انتقال و گسترش دارند:
- پلاسموگامی و تبادل سیتوپلاسمی در دورههای زمانی طولانی
- تولید مقادیر زیادی اسپور غیرجنسی
- زمستانگذرانی از طریق اسکلروتها[۲۷]
- انتقال کموبیش مؤثر به اسپورهای جنسی
با این حال، موانع بالقوهای برای گسترش مایکوویروسها به دلیل ناسازگاری رویشی و انتقال متغیر به اسپورهای جنسی وجود دارد. انتقال به اسپورهای تولیدشده جنسی میتواند بسته به ترکیب ویروس-میزبان از ۰٪ تا ۱۰۰٪ متغیر باشد.[۱۴] انتقال بین گونههای همسرده که زیستگاه مشترکی دارند نیز گزارش شده است، از جمله Cryphonectria (C. parasitica و C. sp)، Sclerotinia (Sclerotinia sclerotiorum و S. minor) و Ophiostoma (O. ulmi و O. novo-ulmi).[۲۸][۲۹] انتقال درونگونهای نیز گزارش شده است[۳۰] بین جدایههای Fusarium poae و Aspergillus سیاه. با این حال، مشخص نیست که چگونه قارچها بر سد ژنتیکی غلبه میکنند؛ آیا نوعی فرآیند شناسایی در طول تماس فیزیکی وجود دارد یا روش دیگری برای تبادل، مانند ناقلها. تحقیقات[۳۱] با استفاده از گونههای Aspergillus نشان داد که کارایی انتقال ممکن است به وضعیت عفونت ویروسی میزبانها (آلوده به هیچ، ویروس متفاوت، یا ویروس مشابه) بستگی داشته باشد و اینکه مایکوویروسها ممکن است در تنظیم عفونت مایکوویروسی ثانویه نقش داشته باشند. اینکه آیا این موضوع برای سایر قارچها نیز صادق است، هنوز مشخص نیست. در مقابل اکتساب خودبهخودی مایکوویروسها، از دست دادن مایکوویروسها بسیار نادر به نظر میرسد[۳۱] و نشان میدهد که یا ویروسها به طور فعال به اسپورها و نوکهای هیفی جدید حرکت میکنند، یا قارچ ممکن است انتقال مایکوویروسها را به روش دیگری تسهیل کند.
حرکت مایکوویروسها درون قارچها
اگرچه هنوز مشخص نیست که انتقال ویروس یک فرآیند فعال یا غیرفعال است، بهطور کلی فرض میشود که ویروسهای قارچی با جریان پلاسما به جلو حرکت میکنند.[۳۲] از نظر تئوری، آنها میتوانند با سیتوپلاسم در حال گسترش به هیفهای جدید حرکت کنند، یا به شبکه میکروتوبولها متصل شوند که آنها را از طریق فضای سیتوپلاسمی داخلی میکشاند. این ممکن است توضیح دهد که چگونه آنها از سپتومها عبور میکنند و اجسام ورونین را دور میزنند. با این حال، برخی محققان آنها را در کنار دیوارههای سپتوم قرار دادهاند،[۲][۳۳] که میتواند نشاندهد آنها «گیر کردهاند» و قادر به حرکت فعال به جلو نبودهاند. دیگران پیشنهاد کردهاند که انتقال dsRNA میتوکندریایی ویروسی ممکن است نقش مهمی در حرکت میتوویروسهای یافتشده در Botrytis cinerea ایفا کند.[۳۴]
تأثیر بر فنوتیپ میزبان
اثرات فنوتیپی عفونتهای مایکوویروسی میتواند از سودمند تا زیانبار متفاوت باشد، اما بیشتر آنها بدون علامت یا پنهان هستند. ارتباط بین فنوتیپ و حضور مایکوویروس همیشه ساده نیست. چندین دلیل ممکن است این موضوع را توجیه کند. اولاً، فقدان سنجشهای عفونتزایی مناسب اغلب محقق را از رسیدن به یک نتیجهگیری منسجم بازداشته است.[۳۵] ثانیاً، عفونت مخلوط یا تعداد ناشناخته ویروسهای آلودهکننده، ارتباط یک تغییر فنوتیپی خاص را با ویروس مورد بررسی بسیار دشوار میکند.
اگرچه بیشتر مایکوویروسها اغلب به نظر نمیرسد که آمادگی میزبان خود را مختل کنند، این لزوماً به این معنا نیست که آنها توسط میزبانهای خود ناشناخته ماندهاند. یک همزیستی خنثی ممکن است فقط نتیجه یک فرآیند همتکاملی طولانی باشد.[۳۶][۳۷] بر این اساس، علائم ممکن است تنها زمانی ظاهر شوند که شرایط خاصی از سیستم ویروس-قارچ تغییر کند و از تعادل خارج شود. این میتواند خارجی (محیطی) و همچنین داخلی (سیتوپلاسمی) باشد. هنوز مشخص نیست که چرا برخی از ترکیبات مایکوویروس-قارچ معمولاً مضر هستند، در حالی که سایرین بدون علامت یا حتی مفید میباشند. با این وجود، اثرات مضر مایکوویروسها از نظر اقتصادی جالب است، بهویژه اگر میزبان قارچی یک بیمارگر گیاهی باشد و مایکوویروس بتواند بهعنوان عامل کنترل زیستی مورد بهرهبرداری قرار گیرد. بهترین مثال با مورد CHV1 و C. parasitica نشان داده میشود.[۱۴] نمونههای دیگر از اثرات زیانبار مایکوویروسها، بیماری «لافرانس» A. bisporus[۵][۳۸] و بیماریهای قارچی ناشی از ویروس کروی قارچ صدفی[۳۹] و ویروس ایزومتریک قارچ صدفی است.[۳۸]
به طور خلاصه، اثرات منفی اصلی مایکوویروسها عبارتند از:
فنوتیپهای هیپوویرولانس به نظر نمیرسد با ویژگیهای ژنومی خاصی مرتبط باشند و به نظر میرسد یک مسیر متابولیکی خاص باعث هیپوویرولانس نمیشود، بلکه چندین مسیر دخیل هستند.[۴۴] علاوه بر اثرات منفی، برهمکنشهای مفید نیز رخ میدهند. نمونههای توصیفشده خوب، فنوتیپهای کشنده در مخمرها[۴۵] و Ustilago هستند.[۴۶] جدایههای کشنده پروتئینهایی ترشح میکنند که برای سلولهای حساس همان گونه یا گونههای خویشاوند نزدیک سمی هستند، در حالی که سلولهای تولیدکننده خود ایمن هستند. بیشتر این توکسینها غشای سلولی را تخریب میکنند.[۴۵] کاربردهای بالقوه جالبی برای جدایههای کشنده در پزشکی، صنایع غذایی و کشاورزی وجود دارد.[۲۴][۴۵] یک سیستم سهبخشی شامل یک مایکوویروس از یک قارچ اندوفیت (Curvularia protuberata) از علف Dichanthelium lanuginosum توصیف شده است که تحمل گرمایی را برای گیاه فراهم میکند و آن را قادر میسازد در زیستگاههای محیطی نامساعد ساکن شود.[۴۷] در قارچهای مهم از نظر پزشکی، یک ویروس A78 شناسایینشده از A. fumigatus باعث اثر هیپرویرولانس خفیف بر بیماریزایی میشود هنگامی که بر روی Galleria mellonella (پروانه موم خوار بزرگ) آزمایش میشود.[۴۲] افزون بر این، TmPV1، یک پارتیتیویروس dsRNA از Talaromyces marneffei (سابقاً Penicillium marneffei) مشخص شد که باعث فنوتیپ هیپرویرولانس بر روی T. marneffei میشود هنگامی که در یک مدل موش آزمایش میشود.[۲۱] این موارد میتوانند نشان دهند که مایکوویروسها ممکن است نقشهای مهمی در بیماریزایی قارچهای بیماریزای انسانی ایفا کنند.
طبقهبندی
بیشتر ویروسهای قارچی به ویروسهای آرانای دورشتهای تعلق دارند، اما حدود ۳۰٪ متعلق به ویروسهای آرانای تکرشتهای با سوی مثبت هستند.[۱] با این حال، ویروسهای آرانای تکرشتهای با سوی منفی و ویروسهای دیانای تکرشتهای نیز توصیف شدهاند.[۹][۱۱][۴۸][۱۰] ویرایش نهم گزارش کمیته بینالمللی آرایهشناسی ویروسها بیش از ۹۰ ویروس قارچی متعلق به ۱۰ خانواده را فهرست کرده است که حدود ۲۰٪ از ویروسها به دلیل دادههای توالی ناکافی incertae sedis هستند و هنوز تعیین نشدهاند.[۱۲] شکل بیشتر ویروسهای قارچی ایزومتریک است.[۱۳]
منابع
- Tebbi CK, Badiga A, Sahakian E, Arora AI, Nair S, Powers JJ, Achille AN, Jaglal MV, Patel S, Migone F. Plasma of Acute Lymphoblastic Leukemia Patients React to the Culture of a Mycovirus Containing Aspergillus flavus. J Pediatr Hematol Oncol. 2020 Jul;42(5):350-358. doi: 10.1097/MPH.0000000000001845. PMID 32576782.
- Tebbi CK, Badiga A, Sahakian E, Powers JJ, Achille AN, Patel S, Migone F. Exposure to a mycovirus containing Aspergillus Flavus reproduces acute lymphoblastic leukemia cell surface and genetic markers in cells from patients in remission and not controls. Cancer Treat Res Commun. 2021;26:100279. doi: 10.1016/j.ctarc.2020.100279. Epub 2020 Dec 11. PMID 33348275.
- 1 2 3 4 5 6 Pearson MN, Beever RE, Boine B, Arthur K (January 2009). "Mycoviruses of filamentous fungi and their relevance to plant pathology". Molecular Plant Pathology. 10 (1): 115–28. doi:10.1111/j.1364-3703.2008.00503.x. PMC 6640375. PMID 19161358.
- 1 2 3 Bozarth RF (October 1972). "Mycoviruses: a new dimension in microbiology". Environmental Health Perspectives. 2 (1): 23–39. doi:10.1289/ehp.720223. PMC 1474899. PMID 4628853.
- ↑ Göker M, Scheuner C, Klenk HP, Stielow JB, Menzel W (2011). "Codivergence of mycoviruses with their hosts". PLOS ONE. 6 (7) e22252. Bibcode:2011PLoSO...622252G. doi:10.1371/journal.pone.0022252. PMC 3146478. PMID 21829452.
- 1 2 3 4 Ghabrial SA, Suzuki N (2009). "Viruses of plant pathogenic fungi". Annual Review of Phytopathology. 47: 353–84. doi:10.1146/annurev-phyto-080508-081932. PMID 19400634.
- 1 2 Hollings M (1962). "Viruses Associated with A Die-Back Disease of Cultivated Mushroom". Nature. 196 (4858): 962–965. Bibcode:1962Natur.196..962H. doi:10.1038/196962a0. S2CID 28710444.
- ↑ Romaine CP, Schlagnhaufer B (June 1995). "PCR analysis of the viral complex associated with La France disease of Agaricus bisporus". Applied and Environmental Microbiology. 61 (6): 2322–5. Bibcode:1995ApEnM..61.2322R. doi:10.1128/AEM.61.6.2322-2325.1995. PMC 167503. PMID 7793952.
- ↑ Anagnostakis SL, Chen B, Geletka LM, Nuss DL (July 1998). "Hypovirus Transmission to Ascospore Progeny by Field-Released Transgenic Hypovirulent Strains of Cryphonectria parasitica". Phytopathology. 88 (7): 598–604. doi:10.1094/PHYTO.1998.88.7.598. PMID 18944931.
- ↑ Liu YC, Milgroom MG (2007). "High diversity of vegetative compatibility types in Cryphonectria parasitica in Japan and China". Mycologia. 99 (2): 279–84. doi:10.3852/mycologia.99.2.279. PMID 17682780.
- 1 2 Li, P; Wang, S; Zhang, L; Qiu, D; Zhou, X; Guo, L (2020). "A tripartite ssDNA mycovirus from a plant pathogenic fungus is infectious as cloned DNA and purified virions". Science Advances. 6 (14) eaay9634. Bibcode:2020SciA....6.9634L. doi:10.1126/sciadv.aay9634. PMC 7138691. PMID 32284975. S2CID 215746433.
- 1 2 3 Yu, X.; Li, B.; Fu, Y.; Jiang, D.; Ghabrial, S. A.; Li, G.; Peng, Y.; Xie, J.; Cheng, J.; Huang, J.; Yi, X. (2010). "A geminivirus-related DNA mycovirus that confers hypovirulence to a plant pathogenic fungus". Proceedings of the National Academy of Sciences of the United States of America. 107 (18): 8387–8392. Bibcode:2010PNAS..107.8387Y. doi:10.1073/pnas.0913535107. PMC 2889581. PMID 20404139.
- 1 2 Liu, Lijiang; Xie, Jiatao; Cheng, Jiasen; Fu, Yanping; Li, Guoqing; Yi, Xianhong; Jiang, Daohong (2014-08-19). "Fungal negative-stranded RNA virus that is related to bornaviruses and nyaviruses". Proceedings of the National Academy of Sciences of the United States of America. 111 (33): 12205–12210. Bibcode:2014PNAS..11112205L. doi:10.1073/pnas.1401786111. ISSN 1091-6490. PMC 4143027. PMID 25092337.
- 1 2 3 King AM, Lefkowitz EM, Adams J, Carstens EB. "Virus Taxonomy: Ninth Report of the International Committee on Taxonomy of Viruses (ICTV)". San Diego, USA: Elsevier Academic. Archived from the original on 2017-02-03. Retrieved 2018-09-01.
- 1 2 3 4 Varga, J.; Tóth, B.; Vágvölgyi, C. (2003). "Recent advances in mycovirus research" (PDF). Acta Microbiologica et Immunologica Hungarica. 50 (1): 77–94. doi:10.1556/AMicr.50.2003.1.8. PMID 12793203.
- 1 2 3 4 5 Ghabrial, S. A., Suzuki, N. (2008). Fungal Viruses. In B. W. J. Mahy and M. H. V. Van Regenmortel (ed.), Encyclopedia of Virology, 3rd ed., vol. 2. Elsevier, Oxford, United Kingdom. p. 284-291.
- ↑ Howitt RL, Beever RE, Pearson MN, Forster RL (March 2006). "Genome characterization of a flexuous rod-shaped mycovirus, Botrytis virus X, reveals high amino acid identity to genes from plant 'potex-like' viruses". Archives of Virology. 151 (3): 563–79. doi:10.1007/s00705-005-0621-y. PMID 16172841. S2CID 6741139.
- ↑ Adams, M. J. (1991). "Transmission of plant viruses by fungi". Annals of Applied Biology. 118 (2): 479–492. doi:10.1111/j.1744-7348.1991.tb05649.x.
- ↑ Buck, K. W. (1986). Fungal Virology- An overview', in K. Buck (ed.), Fungal Virology (Boca Raton: CRC Press): 1-84.
- ↑ Deng F, Xu R, Boland GJ (November 2003). "Hypovirulence-Associated Double-Stranded RNA from Sclerotinia homoeocarpa Is Conspecific with Ophiostoma novo-ulmi Mitovirus 3a-Ld". Phytopathology. 93 (11): 1407–14. doi:10.1094/PHYTO.2003.93.11.1407. PMID 18944069.
- ↑ Chen B, Choi GH, Nuss DL (June 1994). "Attenuation of fungal virulence by synthetic infectious hypovirus transcripts". Science. 264 (5166): 1762–4. Bibcode:1994Sci...264.1762C. doi:10.1126/science.8209256. PMID 8209256.
- ↑ Kotta-Loizou I, Coutts RH (2017). "Aspergilli: A Comprehensive Review". Frontiers in Microbiology (in English). 8: 1699. doi:10.3389/fmicb.2017.01699. PMC 5592211. PMID 28932216.
- 1 2 3 Lau SK, Lo GC, Chow FW, Fan RY, Cai JJ, Yuen KY, Woo PC (June 2018). "Novel Partitivirus Enhances Virulence of and Causes Aberrant Gene Expression in Talaromyces marneffei". mBio. 9 (3) e00947–18. doi:10.1128/mBio.00947-18. PMC 6016240. PMID 29895639.
- ↑ Forterre P (April 2006). "The origin of viruses and their possible roles in major evolutionary transitions". Virus Research. 117 (1): 5–16. doi:10.1016/j.virusres.2006.01.010. PMID 16476498.
- 1 2 Koonin EV, Wolf YI (December 2008). "Genomics of bacteria and archaea: the emerging dynamic view of the prokaryotic world". Nucleic Acids Research. 36 (21): 6688–719. doi:10.1093/nar/gkn668. PMC 2588523. PMID 18948295.
- 1 2 Dawe AL, Nuss DL (2001). "Hypoviruses and chestnut blight: exploiting viruses to understand and modulate fungal pathogenesis". Annual Review of Genetics. 35: 1–29. doi:10.1146/annurev.genet.35.102401.085929. PMID 11700275.
- ↑ Fauquet CM, Mayo MA, Maniloff J (2005). Virus Taxonomy: Classification and Nomenclature of Viruses: The Eighth Report of the International Committee on the Taxonomy of Viruses. San Diego, CA: Elsevier Academic.
- ↑ Ghabrial SA (1994). "New Developments in Fungal Virology". In Murphy FA, Maramorosch K, Aaron JS (eds.). Advances in Virus Research. Vol. 43. Academic Press. pp. 303–388.
- ↑ Liu H, Fu Y, Jiang D, Li G, Xie J, Peng Y, Yi X, Ghabrial SA (February 2009). "A novel mycovirus that is related to the human pathogen hepatitis E virus and rubi-like viruses". Journal of Virology. 83 (4): 1981–91. doi:10.1128/JVI.01897-08. PMC 2643757. PMID 19073734.
- ↑ Liu YC, Linder-Basso D, Hillman BI, Kaneko S, Milgroom MG (June 2003). "Evidence for interspecies transmission of viruses in natural populations of filamentous fungi in the genus Cryphonectria". Molecular Ecology. 12 (6): 1619–28. doi:10.1046/j.1365-294x.2003.01847.x. PMID 12755889. S2CID 31537342.
- ↑ Melzer MS, Deng F, Boland GJ (December 2005). "Asymptomatic infection, and distribution of Ophiostoma mitovirus 3a (OMV3a), in populations of Sclerotinia homoeocarpa". Canadian Journal of Plant Pathology. 27 (4): 610–5. doi:10.1080/07060660509507262. S2CID 84507238.
- ↑ Van Diepeningen AD, Debets AJ, Slakhorst SM, Fekete C, Hornok L, Hoekstra RF (2000). "Interspecies virus transfer via protoplast fusions between Fusarium poae and black Aspergillus strains". Fungal Genetics Newsletter. 47: 99–100. doi:10.4148/1941-4765.1216.
- 1 2 van Diepeningen AD, Debets AJ, Hoekstra RF (June 2006). "Dynamics of dsRNA mycoviruses in black Aspergillus populations". Fungal Genetics and Biology. 43 (6): 446–52. doi:10.1016/j.fgb.2006.01.014. PMID 16546419.
- ↑ Sasaki A, Kanematsu S, Onoue M, Oyama Y, Yoshida K (April 2006). "Infection of Rosellinia necatrix with purified viral particles of a member of Partitiviridae (RnPV1-W8)". Archives of Virology. 151 (4): 697–707. doi:10.1007/s00705-005-0662-2. PMID 16307176. S2CID 13393656.
- ↑ Vilches S, Castillo A (October 1997). "A double-stranded RNA mycovirus in Botrytis cinerea". FEMS Microbiology Letters. 155 (1): 125–30. doi:10.1016/S0378-1097(97)00377-7. PMID 9345772.
- ↑ Wu M, Zhang L, Li G, Jiang D, Ghabrial SA (October 2010). "Genome characterization of a debilitation-associated mitovirus infecting the phytopathogenic fungus Botrytis cinerea". Virology. 406 (1): 117–26. doi:10.1016/j.virol.2010.07.010. PMID 20674953.
- ↑ McCabe PM, Pfeiffer P, Van Alfen NK (September 1999). "The influence of dsRNA viruses on the biology of plant pathogenic fungi". Trends in Microbiology. 7 (9): 377–81. doi:10.1016/S0966-842X(99)01568-1. PMID 10470047.
- ↑ May RM, Nowak MA (August 1995). "Coinfection and the evolution of parasite virulence" (PDF). Proceedings. Biological Sciences. 261 (1361): 209–15. Bibcode:1995RSPSB.261..209M. doi:10.1098/rspb.1995.0138. PMID 7568274. S2CID 202574889.
- ↑ Araújo, A., Jansen, A. M., Bouchet, F., Reinhard, K., Ferreira, L. F. (2003). Parasitism, the Diversity of Life, and Paleoparasitology. Memórias do Instituto Oswaldo Cruz, 98 (SUPPL. 1): 5-11.
- 1 2 Ro HS, Lee NJ, Lee CW, Lee HS (December 2006). "Isolation of a novel mycovirus OMIV in Pleurotus ostreatus and its detection using a triple antibody sandwich-ELISA". Journal of Virological Methods. 138 (1–2): 24–9. doi:10.1016/j.jviromet.2006.07.016. PMID 16930731.
- ↑ Yu HJ, Lim D, Lee HS (September 2003). "Characterization of a novel single-stranded RNA mycovirus in Pleurotus ostreatus". Virology. 314 (1): 9–15. doi:10.1016/S0042-6822(03)00382-9. PMID 14517055.
- 1 2 Moleleki N, van Heerden SW, Wingfield MJ, Wingfield BD, Preisig O (July 2003). "Transfection of Diaporthe perjuncta with Diaporthe RNA virus". Applied and Environmental Microbiology. 69 (7): 3952–6. Bibcode:2003ApEnM..69.3952M. doi:10.1128/AEM.69.7.3952-3956.2003. PMC 165159. PMID 12839766.
- ↑ Suzaki K, Ikeda KI, Sasaki A, Kanematsu S, Matsumoto N, Yoshida K (June 2005). "Horizontal transmission and host-virulence attenuation of totivirus in violet root rot fungus Helicobasidium mompa". Journal of General Plant Pathology. 71 (3): 161–168. doi:10.1007/s10327-005-0181-8. S2CID 32799546.
- 1 2 Özkan S, Coutts RH (March 2015). "Aspergillus fumigatus mycovirus causes mild hypervirulent effect on pathogenicity when tested on Galleria mellonella". Fungal Genetics and Biology. 76: 20–6. doi:10.1016/j.fgb.2015.01.003. hdl:2299/16060. PMID 25626171.
- ↑ Ihrmark K, Stenström E, Stenlid J (February 2004). "Double-stranded RNA transmission through basidiospores of Heterobasidion annosum". Mycological Research. 108 (Pt 2): 149–53. doi:10.1017/S0953756203008839. PMID 15119351.
- ↑ Xie J, Wei D, Jiang D, Fu Y, Li G, Ghabrial S, Peng Y (January 2006). "Characterization of debilitation-associated mycovirus infecting the plant-pathogenic fungus Sclerotinia sclerotiorum". The Journal of General Virology. 87 (Pt 1): 241–9. doi:10.1099/vir.0.81522-0. PMID 16361437.
- 1 2 3 Schmitt MJ, Breinig F (August 2002). "The viral killer system in yeast: from molecular biology to application". FEMS Microbiology Reviews. 26 (3): 257–76. doi:10.1016/S0168-6445(02)00099-2. PMID 12165427.
- ↑ Marquina D, Santos A, Peinado JM (June 2002). "Biology of killer yeasts" (PDF). International Microbiology. 5 (2): 65–71. doi:10.1007/s10123-002-0066-z. PMID 12180782. S2CID 3056365.
- ↑ Márquez LM, Redman RS, Rodriguez RJ, Roossinck MJ (January 2007). "A virus in a fungus in a plant: three-way symbiosis required for thermal tolerance". Science. 315 (5811): 513–5. Bibcode:2007Sci...315..513M. doi:10.1126/science.1136237. PMID 17255511. S2CID 220420.
- ↑ Kondo H, Chiba S, Toyoda K, Suzuki N (2013). "Evidence for negative-strand RNA virus infection in fungi". Virology. 435 (2): 201–209. doi:10.1016/j.virol.2012.10.002. PMID 23099204.
مطالعه بیشتر
- Boine, Barbara (2012). A study of the interaction between the plant pathogenic fungus Botrytis cinerea and the filamentous ssRNA mycoviruses Botrytis virus X and Botrytis virus F (PhD thesis). The University of Auckland, School of Biological Sciences, Plant and Fungal Virology.
پیوند به بیرون
 پروندههای رسانهای مربوط به Mycoviruses در ویکیانبار
- "International Committee on Taxonomy of Viruses".
| اجزاء |  | |
|---|---|---|
| چرخه زندگی ویروس | ||
| ژنتیک | ||
| توسط میزبان | ||
| سایر | ||
| ||


- قارچشناسی