واژهنامه ژنتیک و زیستشناسی فرگشتی
این واژهنامه ژنتیک و زیستشناسی فرگشتی فهرستی از تعریفهای اصطلاحات و مفاهیم بهکاررفته در مطالعهٔ ژنتیک و زیستشناسی فرگشتی، و نیز زیرشاخهها و رشتههای مرتبط با آن است؛ با تأکید بر ژنتیک کلاسیک، ژنتیک کمی، زیستشناسی جمعیت، تبارزایی، گونهزایی و سازگانشناسی. این واژهنامه بهعنوان مکملی برای واژهنامه زیستشناسی یاختهای و مولکولی طراحی شدهاست که بسیاری از اصطلاحات همپوشان و مرتبط را دربردارد؛ دیگر واژهنامههای مرتبط عبارتاند از واژهنامه زیستشناسی و واژهنامه بومشناسی.
الف
- اپیدمیولوژی ژنتیکی
- مطالعه نقش عوامل ژنتیکی در تعیین سلامت و بیماری، بهویژه از طریق برهمکنش عوامل ژنتیکی با عوامل محیطی، و معمولاً آنگونه که در افراد از نظر ژنتیکی خویشاوند مشاهده میشود، اغلب خانوادهها یا دودمانها اما همچنین جمعیتها و زیرجمعیتها.
- اپیژنتیک
- اپیستازی
- کنش جمعی چندین ژن که در حین بیان ژن با هم برهمکنش میکنند. اپیستازی بهعنوان نوعی کنش ژنی، میتواند در اثرگذاری بر صفات فنوتیپی خاص، افزایشی یا ضربی باشد.
- اثر بنیانگذار
- از دست رفتن گوناگونی ژنتیکی که هنگامی رخ میدهد که یک جمعیت جدید و از نظر فیزیکی جداافتاده توسط شمار بسیار اندکی از افراد بنیانگذاری میشود که از یک جمعیت بزرگتر مهاجرت کردهاند و بهطور کامل نمایندهٔ تنوع ژنتیکی جمعیت بزرگتر نیستند. در نتیجه، جمعیت جدید اغلب هم از نظر ژنوتیپی و هم از نظر فنوتیپی بهطور متمایزی با جمعیت والد متفاوت است. علاوه بر مهاجرت، گلوگاههای جمعیت نیز میتوانند به نوعی اثر بنیانگذار بینجامند؛ اثرهای بنیانگذار شدید میتوانند به گونهزایی منجر شوند.
- اثر تولیدمثلی
- کاهش نرخ تولیدمثل افراد جدید بهازای هر عضو کلونی با افزایش اندازهٔ کلونی.[۱]
- اثر چیرگی ژنی
- اثر ریش سبز
- اثر مادری
- هرگونه اثر غیرژنتیکی مادر بر فنوتیپ فرزند خود، بهسبب عواملی مانند وراثت سیتوپلاسمی، انتقال بیماری مادرزادی و اشتراک در شرایط تغذیهای.[۲]
- اثر موقعیت
- هر اثری بر بیان یا کارکرد یک ژن یا توالی که پیامد مکان یا موقعیت آن درون یک کروموزوم یا دیگر مولکول دیانای باشد. مکان دقیق یک توالی نسبت به دیگر توالیها و ساختارها تمایل دارد فعالیت و دیگر ویژگیهای آن را بهشدت تحت تأثیر قرار دهد، زیرا جایگاههای متفاوت بر روی همان مولکول میتوانند پیشینههای ژنتیکی و محیطهای فیزیکی/شیمیایی بهطور قابلتوجهی متفاوتی داشته باشند، که ممکن است در طول زمان نیز تغییر کنند. برای مثال، رونویسی یک ژن واقعشده بسیار نزدیک به یک نوکلئوزوم، سانترومر یا تلومر اغلب سرکوب یا کاملاً مهار میشود، زیرا پروتئینهایی که این ساختارها را میسازند دسترسی به دیانای را برای عوامل رونویسی مسدود میکنند، در حالی که همان ژن هنگامی که در یوکروماتین واقع شود با نرخ بسیار بالاتری رونویسی میشود. نزدیکی به پیشبرها، تقویتکنندهها و دیگر عناصر تنظیمی، و نیز به نواحی با جابهجایی مکرر توسط عناصر متحرک، نیز میتواند مستقیماً بر بیان اثر بگذارد؛ واقعشدن نزدیک انتهای یک بازوی کروموزومی یا نزدیک نقاط رایج تقاطع ممکن است بر زمان رخداد همانندسازی و احتمال نوترکیبی اثر بگذارد. اثرات موقعیت یکی از کانونهای عمده پژوهش در حوزه وراثت اپیژنتیک فرانسلی هستند.
- اثر نرینهٔ محبوب
- اثر والاس
- اثر والوند
- پدیدهای که در آن کاهش تخمیدگی در یک جایگاه ژنی مشخص در سراسر یک جمعیت بهطور کلی مشاهده میشود، هنگامی که دو یا چند زیرجمعیت در آن جایگاه فراوانی آلل متفاوتی دارند، حتی اگر هر یک از زیرجمعیتها بهتنهایی در تعادل هاردی-واینبرگ باشند.
- آخرین نیای مشترک جهانی (LUCA)
- جدیدترین جمعیت از موجودات زنده که همهٔ موجودات زندهٔ کنونی روی زمین از آن نیای مشترک دارند؛ یعنی نزدیکترین نیای مشترک همهٔ موجوداتی که اکنون زندهاند. تصور نمیشود که LUCA نخستین حیات روی زمین بوده باشد، بلکه تنها موجودِ زمان خود است که هنوز بازماندگان زنده دارد. وجود آن از هیچ سابقهٔ فسیلی مشخصی شناخته نشده، بلکه از مقایسههای تبارزایی موجودات امروزی—که همگی بازماندگان آناند—استنباط میشود.
- آدم کروموزوم Y
- آرایه
- آرایهشناسی
- آرایههای ناهمجا
- گونههای ویژهای که بهصورت ناهمجا پراکنده شدهاند.
- آزمایش ژنتیک
- دسته گستردهای از روشها که برای شناسایی ویژگیهای کروموزومها، ژنها، یا پروتئینهای خاص یک فرد بهکار میروند تا والدینی یا نیاکان را تعیین کنند، آسیبپذیریها در برابر بیماریهای ارثی را تشخیص دهند، یا اللهای جهشیافتهای را که با خطرات افزایشیافته ابتلا به ناهنجاری ژنتیکی مرتبطاند آشکار سازند. آزمایش ژنتیک بهطور گسترده در پزشکی انسانی، کشاورزی، و پژوهش زیستی بهکار میرود.
- آزمایش گونهزایی
- آزمایشی که میکوشد جدایی تولیدمثلی موجود در طبیعت را در یک محیط آزمایشگاهیِ کنترلشده علمی بازآفرینی کند.
- اسپندرل
- استحکام
- پایداری یک صفت یا ویژگی فنوتیپی معین در یک سامانهٔ زیستی بهرغم اختلالها یا شرایط عدم قطعیت. استحکام از راه ترکیب سازوکارهای ژنتیکی و مولکولی بسیاری بهدست میآید که بهطور مؤثری یکپارچگی یک سازگاری معین را حفظ میکنند، و میتواند از راه گزینش مستقیم یا غیرمستقیم فرگشت یابد.
- آشیان بومشناختی
- آشیان بومشناختی را ببینید.
- اصل هاردی-واینبرگ
- اصلی در ژنتیک جمعیت که بیان میکند بسامد الل و ژنوتیپ یک جمعیت در غیاب دیگر تأثیرات فرگشتی از نسلی به نسل دیگر ثابت میماند. در سادهترین حالتِ یک جمعیتِ آمیزشتصادفی از جاندارانِ دیپلوئید که یک جایگاه ژنی با دو الل A و a دارند، با بسامدهای f(A) = p و f(a) = q بهترتیب، بسامدهای ژنوتیپی مورد انتظار عبارتاند از f(AA) = p2 برای تخمیدگیهای AA، f(aa) = q2 برای تخمیدگیهای aa، و f(Aa) = 2pq برای تخمیدگیها. در غیاب نیروهای فرگشتی مانند انتخاب طبیعی، جهش، جورآمیزی، شارش ژن و رانش ژن، p و q میان نسلها ثابت میمانند، بهگونهای که گفته میشود جمعیت نسبت به جایگاه مورد نظر در تعادل هاردی-واینبرگ است.
- افسردگی خویشآمیزی
- الل
- یکی از چندین نسخهٔ جایگزین یک ژن منفرد، که هر کدام توالی دیانای زیستپذیری است که موقعیت معینی، یا یک جایگاه، را روی یک کروموزوم اشغال میکند. برای نمونه، در انسان، یک الل از ژن رنگ چشم چشمان آبی پدید میآورد و الل دیگری از ژن رنگ چشم چشمان قهوهای پدید میآورد.
- آلل خنثی
- هر اللی که از طریق یک جهش ژنتیکی غیرکارکردی شده باشد. این جهش ممکن است به ناکامی کامل در تولید یک فراوردهٔ ژنی یا به فراوردهٔ ژنیای بینجامد که بهدرستی کار نمیکند؛ در هر دو حالت، الل را میتوان غیرکارکردی بهشمار آورد.
- آلوپاتری بومشناختی
- آلوپلیپلوئید
- یک سلول یا جاندار پلیپلوئید که در آن چندین دستهٔ کروموزوم از بیش از یک گونه سرچشمه میگیرند، مانند یک دورگه درونگونهای.[۲]
- آمیزش آزمونی
- نگاه کنید به آمیزش بازگشتی.
- آمیزش متقابل
- آزمایشی از دورگهسازی که برای آزمودن این طراحی شده است که آیا جنسیت والد بر وراثت یک صفت معین اثر میگذارد یا نه. در آمیزشهایی که والدین در ژنوتیپ یا فنوتیپ یا هر دو متفاوتاند و از این رو تنها یکی از والدین (والد نر یا والد ماده) صفت موردنظر را بروز میدهد، آمیزش متقابل همان حالت وارون است که در آن والد جنس دیگر صفت موردنظر را بروز میدهد. برای نمونه، اگر در آمیزش نخست یک نرِ بروزدهندهٔ صفت با یک مادهٔ بروزندهندهٔ آن آمیزش داده شود، آنگاه در آمیزش متقابل یک مادهٔ بروزدهندهٔ صفت با یک نرِ بروزندهندهٔ آن آمیزش داده میشود. ژنتیکدانان با مشاهدهٔ زادگان حاصل از هر آمیزش میتوانند دربارهٔ اینکه کدام کروموزوم جنسی، اگر چنین کروموزومی دخیل باشد، بر بروز صفت اثر میگذارد، استنتاج کنند.
- انتخاب ازهم گسیخته
- حالتی از انتخاب طبیعی که در آن مقادیر حدی یک صفت یا فنوتیپ درون یک جمعیت زادآور نسبت به مقادیر میانی ترجیح داده میشوند و باعث میشود فراوانیهای آلل در طول زمان از مقدار میانی دور شوند. این موجب افزایش واریانس در صفت میشود و در نتیجه جمعیت به دو گروه متمایز تقسیم میشود که هر یک مقادیر صفت در یکی از دو انتهای منحنی توزیع صفت را دارند.
- انتخاب خویشاوندی
- گونهای از گزینش ژنی که در آن اللها در نرخهای انتشار خود تفاوت دارند، از این راه که بر بقا یا موفقیت تولیدمثلی افرادی که همان اللها را از طریق نیای مشترک دارند (یعنی خویشاوندان آنها) اثر میگذارند.[۲]
- انتخاب طبیعی
- انتخاب هدایتی
- حالتی از انتخاب طبیعی که در آن یک صفت یا فنوتیپ حدی نسبت به دیگر فنوتیپها ترجیح داده میشود و باعث میشود فراوانیهای آلل در طول زمان در جهت آن صفت یا فنوتیپ تغییر کنند. این تغییر میتواند رخ دهد چه آللهای حاکم بر فنوتیپ حدی غالب یا مغلوب باشند یا نباشند.
- انتقال افقی ژن (HGT)
- هر فرایندی که از راه آن مادهٔ ژنتیکی میان جانداران تکیاختهای و/یا پریاختهای بهجز از طریق انتقال عمودی از والد به فرزند منتقل میشود، برای نمونه همیوغی باکتریایی.
- انتقال جانبی ژن (LGT)
- نگاه کنید به انتقال افقی ژن.
- انشعاب دودمان
- هنگامی که شارش ژن میان دو جمعیت بهطور کامل از میان برود.[۳]
- انقراض
- انقراضزدایی
- انگل میزبانویژه
- آنیداسیون
- اورفون
- هر توالی DNA رمزگذار یا غیررمزگذاری که از یک خانوادهٔ چندژنی پشتسرهم یا خوشهٔ ژنی مشتق شده اما بهطور فیزیکی از دیگر ژنهای آن خانواده جدا افتاده است، زیرا در جایگاه دوردستی در ژنوم پراکنده شده است. اورفونها معمولاً شبهژنهای ناکارا با تعداد نسخهٔ بسیار متغیر هستند.[۴]
- اونتوژنی
- پیدایش و رشد زیستشناختی یک جاندار در طول دوران زندگی خودش، در برابر درخت تبارزایی که به تاریخ فرگشتی نیاکان آن جاندار اشاره دارد. در جانداران دارای تولیدمثل جنسی، اونتوژنی مطالعهٔ رشد یک جاندار از زمان لقاح تا رسیدن به شکل بالغ و بارور آن است؛ این اصطلاح ممکن است برای اشاره به مطالعهٔ کل طول عمر یک جاندار نیز به کار رود.
- آهنگ جهش
- فراوانی جهشهای جدید در یک جایگاه ژنی خاص یا در یک ژن، توالی، ژنوم، یا موجود زنده خاص در یک بازه زمانی مشخص، برای نمونه طی یک نسل واحد. آهنگ جهش ممکن است برای یک رده خاص از جهش یا برای همه انواع بهصورت جمعی محاسبه شود؛ آنها بهطور گستردهای بر حسب موجود زنده و با محیط موجود زنده تغییر میکنند.
- ایستایی
- دودمان گونهای که در طول زمان تغییر فنوتیپی یا ژنوتیپی اندکی را تجربه میکند.[۳]
- اینترکراس
- یک تلاقی که در آن هر دو والد نر و ماده در یک جایگاه خاص دگرتخمهاند.[۵]
ب
- بار جهشی
- نگاه کنید به بار ژنتیکی.
- بار ژنتیکی
- هرگونه کاهش در میانگین شایستگی یک جمعیت بهسبب وجود یک یا چند ژنوتیپ با شایستگی پایینتر از شایستگی شایستهترین ژنوتیپ.[۲]
- بارزیت ناکامل
- بارزیت نسبی
- نگاه کنید به بارزیت ناقص.
- بازگشتی
- ژن یا اللی که در آن یک جهش معکوس رخ میدهد، یا جانداری که چنین ژن یا اللی را حمل میکند.[۵]
- بازمانده
- گونه یا جمعیتی که آخرین نمایندهٔ بازمانده از گروهی است که در غیر این صورت منقرض شده است، یا یک آرایه، دودمان یا تبارشاخه، یا گونهای که پس از انقراض در بیشتر یک گسترهٔ جغرافیایی که زمانی بزرگتر بوده، در یک موقعیت محلی برجای مانده است.[۲]
- برازش
- موفقیت تولیدمثلی، یا گرایش به تولید زادهها، در طول زندگی یک فرد
- برازش فراگیر
- شمار معادلهای فرزندی که یک جاندار از راه رفتارش پرورش میدهد، نجات میدهد یا بهگونهای دیگر پشتیبانی میکند، صرفنظر از اینکه آن فرد واقعاً والد زیستی آن معادلهای فرزندی باشد یا نباشد. برازش فراگیر یکی از دو سنجهٔ کامیابی فرگشتی است که ویلیام دی همیلتون در سال ۱۹۶۴ تعریف کرد و دیگری برازش شخصی است.
- بروز
- بسامد رخدادِ تازهٔ یک ناهنجاری ژنتیکی (یا بهطور گستردهتر هر وضعیت یا صفت ژنتیکی، زیانبار یا جز آن) در میان اعضای یک جمعیت خاص و در یک بازهٔ زمانی معین.[۶]
- برونگروه
- بقای اصلح
- بکرزایی
- نوعی تولیدمثل غیرجنسی که در آن رشد و تکوین رویانها بدون لقاح رخ میدهد. در جانورانی که بهروش بکرزایی تولیدمثل میکنند، یک گامت لقاحنیافته از والد ماده قادر است بدون هیچ سهمی از والد نر به یک فرد بالغ تبدیل شود، که نتیجه آن فرزندانی است که تنها مواد ژنتیکی مادر را دارند (که نسبت دقیق آن به ساز و کار بکرزایی بستگی دارد که گونههای متعددی از آن وجود دارد). برخی گونهها منحصراً از طریق بکرزایی تولیدمثل میکنند، در حالی که برخی دیگر میتوانند تحت شرایط محیطی خاص میان تولیدمثل جنسی و بکرزایی جابهجا شوند.
- بنیانگذار همه را میبرد
- فرضیهای که مزایای فرگشتی نخستین دودمانهای واردشده به یک بومسازگان جدید را توصیف میکند.[۷] نمونهای از آن میتواند زمانی باشد که یک گونه در یک جزیره جدا از نظر تولیدمثلی میشود، مانند آنچه در گونهزایی پیرابوم رخ میدهد.
- بنیانگذار-شکوفایی-فروپاشی
- بومزادی
- حالت بومشناختی منحصربهفرد بودن یک گونه به یک مکان جغرافیایی واحد، مانند یک جزیره، ملت، کشور یا هر ناحیهٔ بهروشنی تعریفشدهٔ دیگر، یا به یک نوع زیستگاه واحد.
- بهینگی
- اصل توضیح مشاهدات تجربی بر پایه فرضیهای که به کمترین یا سادهترین مفروضاتی نیاز دارد که برای آنها شواهد اندکی وجود دارد یا اصلاً وجود ندارد. در ردهبندی زیستی، بیشترین بهینگی یک معیار بهینگی است که برای استنباط روابط تبارزایی کمترین میزان دگرگونیهای فرگشتی را فرض میکند؛ یعنی آن درخت تبارزایی که مجموع تعداد دگرگونیهای حالت-صفت را کمینه میکند ارجح است.[۲]
- بیان ژن
- مجموعه فرایندهایی که طی آنها از اطلاعات رمزگذاریشده در یک ژن در ساخت یک فرآورده ژن، مانند یک پروتئین یا آرانای غیرکدکننده، استفاده میشود، یا بهگونهای دیگر برای تأثیرگذاری بر یک یا چند فنوتیپ در دسترس قرار میگیرد. بیان در سطح مولکولی بهطور متعارف از رونویسی و ترجمه تشکیل میشود، هرچند اطلاعات موجود در یک توالی DNA لزوماً نباید رونویسی و ترجمه شوند تا بر رویدادهای مولکولی اثر بگذارند؛ تعاریف گستردهتر طیف عظیمی از راههای دیگری را که اطلاعات ژنتیکی میتوانند بیان شوند دربرمیگیرند.
- بیانایی
- برای یک ژنوتیپ معین که با یک فنوتیپ متغیر و غیردودویی همراه است، نسبت افرادی با آن ژنوتیپ که فنوتیپ را تا حد مشخصی نشان میدهند یا بیان میکنند، که معمولاً بهصورت درصد بیان میشود. بهدلیل برهمکنشهای پیچیدهٔ متعددی که بیان ژن را تنظیم میکنند، یک الل یکسان ممکن است طیف گستردهای از فنوتیپهای ممکن با کیفیتها یا درجات متفاوت در افراد گوناگون پدید آورد؛ در چنین مواردی، میتوان گفت که هم فنوتیپ و هم ژنوتیپ بیانایی متغیر نشان میدهند. بیانایی میکوشد دامنهٔ سطوح ممکن گوناگونی فنوتیپی را در جمعیتی از افرادی که فنوتیپ موردنظر را بیان میکنند کمّی کند. با نفوذپذیری مقایسه شود.
- بیشترین بهینگی
- نگاه کنید به بهینگی.
پ
- پارالوگ
- یکی از مجموعهای از ژنها (یا، بهطور کلیتر، هر توالی دیانای که homology نشان دهد) که از طریق یک یا چند رویداد دوپلیکاسیون ژنتیکی مستقیماً با یکدیگر مرتبطاند؛ چنین ژنها یا توالیهایی پارالوگ نامیده میشوند. پارالوگها از مضاعف شدن یک توالی واحد در درون یک ژنوم واحد و سپس دیورژانس بعدی توالیهای مضاعفشده در اثر جهش و گزینش طبیعی (یا در درون ژنوم اصلی، یا در طول گونهزایی، در ژنومهای متفاوت) پدید میآیند. در مقابلِ ارتولوگ.
- پدریگرا
- (دربارهٔ یک فرزند) شباهت بیشتر به والد نر، از نظر ژننمودی یا رخنمودی، تا والد ماده؛[۵] برگرفته از پدر. در مقابلِ مادریگرا.
- پدیدارش
- ویژگی صفات ژنتیکیِ صفات که از یک آرایش خاص از ژنهای برهمکنشگر ناشی میشود، نه صرفاً از ترکیب آنها.
- پراکنش
- پروباند
- اصطلاحی که در ژنشناسی پزشکی و نسبشناسی برای اشاره به یک آزمودنی خاص که مورد مطالعه یا گزارش قرار میگیرد بهکار میرود.
- پروژنز
- بلوغ جنسی زودرس یا شتابیافته یک جاندار که هنوز در مرحلهای از نظر ریختشناختی نابالغ است.[۱]
- پلوئیدی
- تعداد مجموعههای کامل کروموزوم در یک سلول، و در نتیجه تعداد اللهای ممکن موجود در سلول در هر جایگاه اتوزومی معین.
- پلیپلوئید
- (دربارهٔ یک سلول یا جاندار) دارای بیش از دو نسخه همتای از هر کروموزوم. پلیپلوئیدی ممکن است بهعنوان یک وضعیت طبیعی کروموزومها در برخی سلولها یا حتی کل جانداران رخ دهد، یا ممکن است از تقسیم سلولی غیرعادی یا جهشی که موجب مضاعف شدن کل مجموعه کروموزومی میشود، ناشی شود. در مقابلِ هاپلوئید و دیپلوئید؛ همچنین نگاه کنید به پلوئیدی.
- پلیژن
- پناهگاه
- یک موقعیت جغرافیایی (یا، بهطور دقیقتر، یک آشیان) که در آن یک یا چند گونه پایدار ماندهاند در حالی که در جاهای دیگر منقرض شدهاند.[۲]
- پهنه دورگه
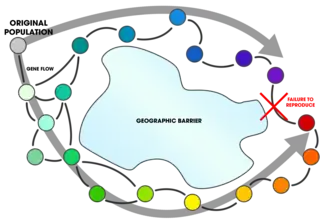
- یک ناحیهٔ جغرافیایی که در آن گسترهٔ دو گونه یا جمعیت آمیزنده با یکدیگر همپوشانی دارد و به آنها امکان میدهد که همبارورسازی کنند و فرزندان دورگه پدید آورند. شکلگیری یک پهنهٔ دورگه یکی از چهار پیامد تماس پسین میان دودمانهای ژنتیکی واگرا است.
- پیراتبار
- پیراسانترومری
- (دربارهٔ یک ژن یا ناحیهای از یک کروموزوم) واقعشده نزدیک سانترومر کروموزوم.
- پیشبروزی
- پدیدهای که در آن نشانههای یک ناهنجاری ژنتیکی در افراد مبتلا با هر نسلی که بیماری را به ارث میبرد، در سنی زودتر (و اغلب شدیدتر) آشکار میشوند.
- پیشجنسی
- از یا مربوط به جاندارانی که نوترکیبی ژنی را از طریق همیوغی، ترارسانی یا لیزوژنیشدن بهدست میآورند.[۱] مقایسه کنید با یوسکسوال و پاراسکسوال.
- پیشسازگاری
- دارا بودن ویژگیهای لازم برای امکان جابهجایی به یک آشیان یا زیستگاه جدید. یک ساختار پیشسازگار نامیده میشود اگر بتواند پیش از آنکه خود توسط گزینش دگرگون شود، کارکرد جدیدی بپذیرد.[۲]
- پیشگونه
- یک گونه نیایی.[۱]
- پیشگونهنام
- در آرایهشناسی، یک نمونه کامل که جایگزین یک گونهنام ناقص میشود.[۱]
- پیوستگی
- گرایش توالیهای دیانای که از نظر فیزیکی روی یک کروموزوم نزدیک به یکدیگرند به اینکه در طول میوز با هم به ارث برده شوند. از آنجا که فاصلهٔ فیزیکی میان آنها نسبتاً کوچک است، احتمال اینکه هر دو بخش نزدیک یک توالی دیانای (اغلب جایگاهها یا نشانگرهای ژنتیکی) در طول کراسینگاور روی کروماتیدهای متفاوت جدا شوند، از نظر آماری بسیار پایین است؛ چنین جایگاههایی آنگاه گفته میشوند بیش از جایگاههایی که دورتر از هماند پیوستهاند. جایگاههایی که روی کروموزومهای کاملاً متفاوت قرار دارند گفته میشوند بهطور کامل ناپیوستهاند. واحد استاندارد سنجش پیوستگی ژنتیکی سانتیمورگان (cM) است.
- پیوستگی ژنتیکی
- همرخدادی یک یا چند الل یا ژنوتیپ با یک صفت فنوتیپی معین در یک جمعیت، بیش از آنچه که صرفاً از روی شانس انتظار میرود؛ از چنین همبستگی آماری میتوان برای استنباط این موضوع استفاده کرد که اللها یا ژنوتیپها مسئول تولید فنوتیپ معین هستند.
ت
- تأخیر رخنمودی
- تأخیری در بیان رخنمودی یک جهش ژنتیکی بهدلیل زمان مورد نیاز برای آشکار شدن دگرگونیها در مسیرهای زیستشیمیایی متأثر.[۶]
- تافته گونهای
- تبارزایش
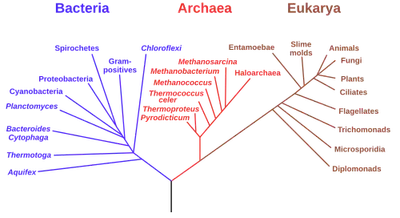
- تبارزایی
- مطالعه تاریخ فرگشتی و روابط میان افراد یا گروههایی از جانداران، مانند گونهها یا جمعیتها، از طریق روشهایی که شباهتها و تفاوتهای میان صفات وراثتپذیر مشاهدهشده، شامل ویژگیهای ریختشناختی و توالی دیانای را ارزیابی میکنند. ارائه گرافیکی دادههای چنین تحلیلهایی با عنوان یک درخت تبارزایی یا درخت تبارزایی شناخته میشود.
- تبارشاخه
- یک گروهبندی تبارزایی از جانداران که از یک نیای مشترک واحد و همهی بازماندگان مستقیم آن تشکیل شده است و بنا به تعریف تکتبار است. نیای مشترک ممکن است یک جاندار، یک جمعیت، یک گونه، یا هر آرایهی دیگری باشد؛ هر یک و همهی اعضای یک تبارشاخه ممکن است موجود یا منقرض باشند. تبارشاخهها را میتوان با تبارشاخهنماها نمایش داد و آنها پایهی تبارشاخهشناسی هستند.
- تبارشاخهزایی
- انشعاب دودمان یک گونهی واحد درون یک درخت تبارزایی به چندین دودمان.[۳]
- تبارشاخهشناسی
- رویکردی به ردهبندی زیستی که در آن جانداران در تبارشاخههایی گروهبندی میشوند که با نیای مشترک تعریف شدهاند؛ روابط فرضی میان جانداران معمولاً بر پایهی صفات مشتق مشترک است که میتوان آنها را تا نزدیکترین نیای مشترک ردیابی کرد و در نیاکان دورتر یا گروههای نامرتبط حضور ندارند.
- تبارشاخهنما
- تبارشاخهنمای ناحیهای
- تبارشناسی ژنتیکی
- استفاده از آزمایش دیانای تبارشناسی در ترکیب با روشهای سنتی نسبشناسی برای استنباط سطح و نوع روابط ژنتیکی میان افراد، یافتن نیاکان، و ساخت درختهای خانوادگی، ژننگارها، یا دیگر نمودارهای تبارشناختی.
- تثبیت
- فرایندی که طی آن یک الل منفرد برای یک ژن مشخص با چند الل، فراوانی آلل آن در یک جمعیت معین افزایش مییابد بهگونهای که بهطور دائمی بهعنوان تنها الل در آن جایگاه درون خزانه ژنی جمعیت تثبیت میشود. مدتزمان تثبیت به فشارهای فرگشتی و نوسانهای تصادفی در فراوانی اللها بستگی دارد.
- تحلیل خوشهای
- تخمیدگی
- میزانی که نسخههای متعدد یک ژن، کروموزوم یا ژنوم توالی ژنتیکی یکسانی دارند؛ برای نمونه در یک جاندار دولاد با دو نسخهٔ کامل از ژنوم خود (یکی مادری و یکی پدری)، میزان شباهت اللهای موجود در هر نسخه. گفته میشود افرادی که دو الل متفاوت برای یک ژن خاص دارند برای آن ژن ناخالص هستند؛ و افرادی که دو الل یکسان دارند برای آن ژن خالص هستند. تخمیدگی را میتوان بهطور جمعی برای گروهی از ژنها، یا برای کل مجموعهٔ ژنها و جایگاههای ژنی تشکیلدهندهٔ ژنوم نیز در نظر گرفت.
- تخمیدگی نیمهای
- در یک جاندار دیپلوئید، داشتن تنها یک الل در یک جایگاه ژنی مشخص (جایی که معمولاً دو الل وجود میداشت). نیمهتخمیدگی ممکن است هنگامی مشاهده شود که تنها یک نسخه از یک کروموزوم در یک یاخته یا جاندار معمولاً دیپلوئید موجود باشد، یا هنگامی که بخشی از یک کروموزوم که حاوی یک نسخه از یک الل است حذف شود، یا هنگامی که یک ژن روی یک کروموزوم جنسی در جنس هتروگامتیک قرار گرفته باشد (که در آن کروموزومهای جنسی بهصورت جفتهای همتا وجود ندارند)؛ برای نمونه، در مردان انسان با کروموزومهای طبیعی، تقریباً همهٔ ژنهای وابسته به ایکس نیمهتخمیده گفته میشوند زیرا تنها یک کروموزوم ایکس وجود دارد و شمار اندکی از همان ژنها روی کروموزوم Y وجود دارند.
- تدریجگرایی
- تغییر فرگشتی پیوسته درون یک دودمان گونهای.[۳] همچنین نگاه کنید به تدریجگرایی تباری.
- تدریجگرایی تباری
- مدلی از فرگشت که نظریه میپردازد بیشتر گونهزاییها بهکندی، یکنواخت و تدریجی رخ میدهند، و اینکه بهندرت مرز روشنی میان گونههای نیایی و گونههای نسلی وجود دارد مگر آنکه یک گسستِ ناگهانی رخ دهد که اعضای یک جمعیت واحد را بهلحاظ تولیدمثلی جدا کند. این نظریه اغلب با تعادل نقطهای مقایسه میشود.
- ترجیح کنامی
- تشخیص خویشاوندی
- تعادل نقطهای
- تغییرپذیری ژنتیکی
- شکلگیری یا حضور افرادی که از نظر ژنوتیپ درون یک جمعیت یا گروه دیگری از جانداران با هم متفاوتاند، در مقابل افرادی با تفاوتهای ناشی از محیط، که تنها تغییرات موقت و غیرارثی در فنوتیپ ایجاد میکنند. به شرط نبود محدودیتهای دیگر، جمعیتی با گوناگونی ژنتیکی بالا توان بیشتری برای سازگاری موفق با شرایط محیطی در حال تغییر نسبت به جمعیتی با گوناگونی ژنتیکی پایین دارد. گوناگونی ژنتیکی شبیه به تنوع ژنتیکی است، هرچند از آن متمایز است.
- تفکیک غیرتصادفی کروموزومها
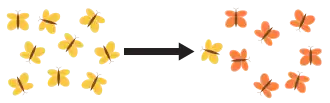
- تقلید
- فرایندی که طی آن یک موجود زنده فرگشت مییابد تا به شیء دیگری شبیه شود، که اغلب موجود زندهای از گونهای دیگر است. تقلید میتواند میان افراد یک گونه نیز رخ دهد. تقلید که نوعی پیامدهی سازگارانه است، هنگامی فرگشت مییابد که یک گیرندهپیام، که به آن فریبخورده گفته میشود، شباهت میان مقلد و شیء یا موجودی را که از آن تقلید میکند، که به آن الگو گفته میشود، درک کند و در نتیجه رفتار خود را بهگونهای تغییر دهد که برتری گزینشی برای مقلد فراهم آورد؛ الگو نیز ممکن است از شباهت مشترک سود ببرد، که در این صورت یک همیاری وجود دارد، یا تقلید ممکن است به زیان الگو باشد، که آن را انگلی یا رقابتی میسازد. شباهت فرگشتیافته میتواند دیداری، شنیداری، شیمیایی، لمسی یا الکتریکی، یا هر ترکیبی از حالتهای حسی باشد. گونههای بسیاری از تقلید وجود دارد، مانند تقلید بیتسی، تقلید مولری و تقلید واویلوفی.
- تقویت (گونهزایی)
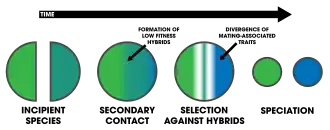
- فرایندی از گونهزایی که با آن انتخاب طبیعی جدایی تولیدمثلی میان دو جمعیت از یک گونه را، در نتیجهٔ گزینش علیه تولید افراد دورگه با شایستگی پایین، افزایش میدهد.[۸] همچنین ببینید شواهد گونهزایی از راه تثبیت.
- تکتبار
- تکرار فرگشتی
- گذر اونتوژنیک ویژگیهای یک جاندار از مراحلی که به ویژگیهای بالغ نیاکان تبارزایی آن جاندار شباهت دارند.[۲]
- تکزادآوری
- راهبردی تولیدمثلی که با یک رویداد تولیدمثلی واحد در طول عمر یک موجود زنده مشخص میشود، بهویژه راهبردی که در آن مرگ برنامهریزیشده موجود بلافاصله پس از رویداد تولیدمثلی، بخشی از یک راهبرد کلی است که شامل صرف همه منابع موجود برای بیشینهکردن احتمال موفقیت تولیدمثلی به بهای زندگی آینده موجود میشود. گفته میشود موجوداتی که از چنین راهبردی استفاده میکنند تکزادآور هستند. تکزادآوری معمولاً در تقابل با چندزادآوری قرار میگیرد.
- تکگروه
- تلاش تولیدمثلی
- نسبتی از کل منابع سوختوسازی یک فرد که به تولیدمثل اختصاص مییابد.[۱]
- تلاقی برگشتی
- زادآوری یک موجود زنده دورگه با یکی از والدینش یا فردی که از نظر ژنتیکی به یکی از والدینش شبیه است، اغلب بهصورت عمدی بهعنوان نوعی زادگیری گزینشی، با هدف تولید فرزندی که هویت ژنتیکی نزدیکتری به والد دارد. هم رویداد تولیدمثلی و هم نتاج حاصل، هر دو تلاقی برگشتی نامیده میشوند که اغلب در نمادگذاری کوتاهشده ژنتیک با نماد BC خلاصه میشود.
- تماس پسین
- فرایندی که طی آن دو جمعیت از یک گونه که بهصورت allopatrically پراکنده شدهاند، از نظر جغرافیایی دوباره به هم میپیوندند. تماس میان جمعیتهای واگرا ممکن است امکان شارش ژن میان آنها را بسته به میزان جدایی تولیدمثلییافتن جمعیتها، دوباره برقرار سازد.
- تنوع ژنتیکی
- شمار کل صفتها یا ویژگیهای ژنتیکی در ساختار ژنتیکی یک جمعیت، گونه، یا گروه دیگری از جانداران. اغلب بهعنوان سنجهای از سازگاریپذیری یک گروه با محیطهای در حال تغییر بهکار میرود. تنوع ژنتیکی شبیه به گوناگونی ژنتیکی است، هرچند از آن متمایز است.
- تنوعبخشی
- توارث غیرمندلی
- هر الگوی توارث که در آن صفات بر طبق قوانین مندل تفکیک نمیشوند، قوانینی که توارث بهآسانی مشاهدهپذیر صفات رخنمودی بهطور گسسته متغیر را که تحت تأثیر تکژنهای واقع بر کروموزومهای هستهای قرار دارند توصیف میکنند. اگرچه قوانین مندل بسیاری از مشاهدات بنیادی توارث را بهدرستی تبیین میکنند، تنها در سادهترین و عامترین حالات سودمندند؛ فرایندها و پدیدههای ژنتیکی پرشماری، چه عادی و چه ناهنجار، وجود دارند که آنها را نقض میکنند، مانند بارزیت ناقص، همبارزی، پیوستگی ژنتیکی، برهمکنشهای اپیستازی و صفات چندژنی، تفکیک غیرتصادفی کروموزومها، توارث فراهستهای، تبدیل ژنی، و بسیاری از پدیدههای اپیژنتیک.
- توازن ژنی
- سازوکاری از تعیین جنسیت که به نسبت تعداد کروموزومهای ایکس (X) به تعداد مجموعههای اتوزوم (A) بستگی دارد. نرها زمانی تکوین مییابند که نسبت X/A برابر ۰٫۵ یا کمتر باشد، مادهها زمانی که برابر ۱٫۰ یا بیشتر باشد، و یک بیناجنس زمانی که میان ۰٫۵ و ۱٫۰ باشد، تکوین مییابد.[۵]
- تولیدمثل جنسی
- تولیدمثل غیرجنسی
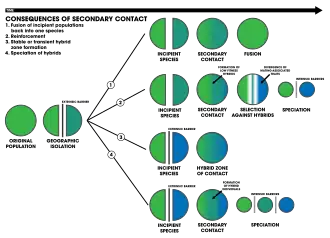
۱. یک سد بیرونی جمعیت یک گونه را به دو بخش تقسیم میکند اما آنها پیش از آنکه جدایی تولیدمثلی برای منجرشدن به گونهزایی کافی باشد، با هم تماس پیدا میکنند. دو جمعیت دوباره در یک گونه ادغام میشوند.
۲. گونهزایی از طریق تقویت.
۳. دو جمعیت جداشده از نظر ژنتیکی متمایز باقی میمانند در حالی که انبوهههای دورگه در پهنه تماس شکل میگیرند.
۴. نوترکیبی ژنگانی به گونهزایی دو جمعیت میانجامد، همراه با یک گونه دورگه اضافی. هر سه گونه با سدهای تولیدمثلی درونی از هم جدا شدهاند.[۹]
ج
- جابهجایی رابرتسونی (ROB)
- نوعی از جابهجایی کروموزومی که با آن شکستهای دورشتهای در یا نزدیکِ سانترومرهای دو آکروسانتریک کروموزوم سبب مبادلهای متقابل از قطعات میشود که به یک کروموزوم بزرگ متاسانتریک (متشکل از بازوهای بلند) و یک کروموزوم بسیار کوچک (متشکل از بازوهای کوتاه) میانجامد، که دومی اغلب پس از آن با اثری اندک از یاخته از دست میرود زیرا ژنهای بسیار کمی دارد. کاریوتیپ حاصل یکی کمتر از شمار کل کروموزومهای مورد انتظار را نشان میدهد، زیرا دو کروموزوم پیشتر مجزا اساساً با هم جوش خوردهاند. حاملان جابهجاییهای رابرتسونی عموماً با هیچ ناهنجاری فنوتیپی مرتبط نیستند، اما خطر بالاتری برای تولید گامتهای نامتعادل میوزی دارند.
- جابهجایی متقابل
- نوعی از جابهجایی کروموزومی که با آن مبادلهای متقابل از قطعات کروموزوم میان دو یا چند کروموزوم ناهمتا رخ میدهد. هنگامی که مبادلهٔ مواد بهطور یکنواخت متعادل باشد، جابهجاییهای متقابل معمولاً بیضرر هستند.
- جایگاه
- یک موقعیت مشخص و ثابت روی یک کروموزوم که در آن یک ژن یا نشانگر ژنتیکی خاص جای دارد.
- جایگاه صفت کمی (QTL)
- جایگزینی صفت
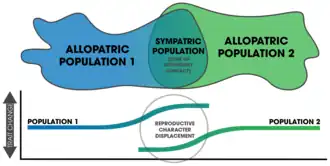
- پدیدهای که از طریق آن تفاوتهای میان گونههای مشابهی که آشیانهای مشابه را اشغال میکنند و توزیعهای جغرافیایی جزئاً همپوشان دارند، در نواحیای که گونهها با هم رخ میدهند تشدید میشود، اما در جایی که توزیعهای گونهها همپوشانی ندارند، کمینه یا از میان میرود. این پدیده به این دلیل رخ میدهد که رقابت میان گونههای مشابه بر سر یک یا چند منبع محدود، تغییر فرگشتیای را به پیش میراند که گونهها را در نواحی جغرافیایی مشترک متمایز میکند، چنانکه دیگر آشیان یکسانی را اشغال نمیکنند و در نتیجه میتوانند همزیستی کنند و از طرد رقابتی پرهیز کنند.
- جایگزینی صفت بومشناختی
- جایگزینی صفت تولیدمثلی
- جبران دوز
- هر سازوکاری که از طریق آن موجودات زنده تفاوت بزرگ در دوز ژن ناشی از وجود تعداد متفاوتی از کروموزومهای جنسی در جنسهای مختلف را خنثی میکنند و بدینترتیب بیان ژنهای پیوسته به جنس را برابر میکنند تا اعضای هر جنس مقادیر یکسان یا مشابهی از فراوردههای چنین ژنهایی دریافت کنند. نمونهای از آن غیرفعالسازی کروموزوم ایکس در پستانداران ماده است.
- جداافتادگی زیستگاهی
- جداریختی
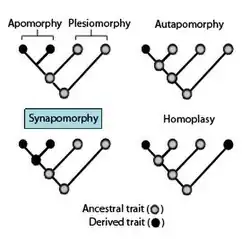
- حالت یک صفت جداگشته؛ یعنی حالت یا وضعیت یک صفت یا ویژگی مشخص (برای نمونه یک فنوتیپ مشخص) که از یک صفت نیایی متمایز و برآمده از آن است، بهسبب دگرگونی آن در طول زمان در یک یا چند نوادهٔ مستقیمِ یک تبارشاخه معین. جداریختیها اغلب بهعنوان «نوآوریهای» فرگشتی دیده میشوند که آرایههایی را که در آنها پدیدار میشوند از نیای مشترک تبارشاخه و نیز از دیگر تبارشاخهها جدا میکنند؛ جداریختیهای مشترک برای ساختن و تعریف تبارشاخهها بهکار میروند. این اصطلاح نسبی است؛ صفتی که در یک تبارشاخه جداریختی شمرده میشود ممکن است در تبارشاخهای دیگر جداریختی شمرده نشود. در برابر نزدیکریختی.
- جدایی
- جدایی بر پایهٔ فاصله
- جدایی بومجغرافیایی
- جدایی بومشناختی
- جدایی پسازآمیزش پیشازآمیزهای
- جدایی پسازیگوتی
- جدایی پسزیگوتی برونزاد
- جدایی پسزیگوتی درونذاتی
- جدایی پیشازیگوتی
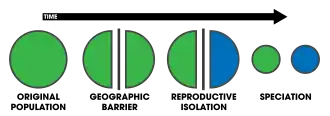
- جدایی تولیدمثلی
- وضعیتی که در آن دورگهگیری میان دو یا چند جمعیت از جانداران توسط عوامل درونزاد بازداشته میشود، بهگونهای که اعضای یک جمعیت نمیتوانند با اعضای جمعیتی دیگر جفتگیری کنند و فرزندان بارور پدید آورند. فرگشت جدایی تولیدمثلی میان اعضای جمعیتهای متفاوت معمولاً نخستین گام در فرایند گونهزایی دانسته میشود، زیرا بهطور مؤثری از شارش ژن میان جمعیتها جلوگیری میکند و بدینسان به هر یک امکان میدهد مستقل فرگشت یابد؛ از این رو وجود سدهای تولیدمثلی اغلب بهعنوان معیاری برای تعریف گونهها در مفاهیم گوناگون گونه بهکار میرود. جدایی ممکن است هنگامی رخ دهد که جمعیتها بهسبب تغییرات محیطی یا مهاجرت بهطور فیزیکی از هم جدا شوند، چنانکه اعضای جمعیت دیگر صرفاً دسترسناپذیر باشند، یا ممکن است هنگامی رخ دهد که تفاوتهای کالبدشناختی یا ژنتیکی جفتگیری میان اعضای جمعیتهای متفاوت را ناممکن سازند یا دستکم تضمین کنند که هر فرزندی که بر حسب اتفاق پدید آید نازا باشد، حتی اگر جمعیتها بهطور فیزیکی از یکدیگر جدا نباشند. سازوکارهای جداکننده معمولاً به دو دستهٔ پیشزیگوتی (سدهای جداکنندهای که پیش از تشکیل یک زیگوت رخ میدهند) و پسزیگوتی (سدهای جداکنندهای که پس از تشکیل زیگوت رخ میدهند) ردهبندی میشوند.
- جدایی دگرزمانی
- جدایی دو جمعیت از یک گونه بهسبب تغییر در دورههای زادآوری. این جدایی بهعنوان پیشدرآمدی برای گونهزایی دگرزمانی عمل میکند، نوعی گونهزایی که هنگامی رخ میدهد که دو جمعیت از یک گونه بهسبب تفاوت در زمانبندی تولیدمثلی جدا شوند. نمونهای از آن گونههای دورهای ۱۳ و ۱۷ ساله Magicicada است.[۸]
- جدایی رفتارشناختی
- جدایی رفتارشناختی گردهافشان
- جدایی رفتاری
- جدایی رفتاری جفتگیری
- جدایی زمانی
- جدایی سیتوپلاسمی
- جدایی سیستم جفتگیری
- جدایی گامتی
- جدایی گامتی رقابتی
- جدایی گامتی ناهمچشمانه
- جدایی گردهافشانی
- جدایی گلی
- جدایی مکانیکی
- جدایی مکانیکی گردهافشان
- جداییِ پیشازآمیزش
- جغجغه مولر
- جغرافیای تبارزایی
- جغرافیای زیستی
- مطالعه علمی توزیعهای مکانی موجودات زنده، جمعیتها و گونههای زیستی. این شامل مطالعه هر دو موجود منقرضشده و موجود میشود.[۱۰]
- جفتشدگی
- جمعیت
- گروهی از جانداران از یک گونه واحد که یک ناحیه جغرافیایی کموبیش مشخص را اشغال میکنند و از نسلی به نسل دیگر پیوستگی تولیدمثلی نشان میدهند. عموماً فرض بر آن است که برهمکنشهای بومشناختی و تولیدمثلی میان اعضای گروه بیشتر از میان آنها و اعضای دیگر جمعیتهای همان گونه رخ میدهد.[۲]
- جورآمیزی
- یک سیستم جفتگیری که در آن افراد با فنوتیپهای مشابه بیش از آنچه در یک سیستم جفتگیری کاملاً تصادفی انتظار میرود با یکدیگر جفت میشوند. جورآمیزی معمولاً اثر افزایش خویشاوندی ژنتیکی میان اعضای جمعیت جفتگیرنده را دارد. در برابر ناجورآمیزی.
- جورآمیزی واگرا
- یک سیستم جفتگیری که در آن افرادی با فنوتیپهای ناهمسان بیش از آنچه در یک سیستم جفتگیری کاملاً تصادفی انتظار میرود با یکدیگر جفتگیری میکنند. جورآمیزی واگرا معمولاً اثر کاهش خویشاوندی ژنتیکی میان اعضای جمعیت جفتگیرنده را دارد. در تقابل با جورآمیزی.
- جهش
- هرگونه تغییر دائمی در توالی اسید نوکلئیک یک رشته دیانای یا آرانای، یا در توالی آمینو اسید یک پپتید. جهشها هم در فرایندهای زیستی بهنجار و هم نابهنجار نقش دارند؛ رخداد طبیعی آنها جزء جداییناپذیر فرایند فرگشت است. آنها میتوانند از خطا در همانندسازی، آسیب شیمیایی، قرارگیری در معرض تابش پرانرژی، یا دستکاری توسط عناصر ژنتیکی متحرک ناشی شوند. سازوکارهای ترمیم در بسیاری از موجودات زنده فرگشت یافتهاند تا آنها را اصلاح کنند. با درک اثری که یک جهش بر فنوتیپ دارد، میتوان کارکرد ژن یا توالیای را که در آن رخ میدهد تعیین کرد.
- جهش بازگشتی
- یک جهش که اثر یک جهش پیشین را که یک ژن را غیرفعال کرده بود معکوس میکند و بدینترتیب عملکرد گونه وحشی را بازمیگرداند.[۱۱] همچنین جهش معکوس را ببینید.
- جهش بدمعنی
- نوعی جهش نقطهای که به رمز ژنتیکیای منجر میشود که آمینو اسید متفاوتی نسبت به توالی جهشنیافته را رمزگذاری میکند. مقایسه کنید با جهش بیمعنی.
- جهش بیمعنی
- نوعی جهش نقطهای که به یک کدون پایان زودهنگام در توالی mRNA رونویسیشده میانجامد و بدینسان موجب پایان زودهنگام ترجمه میشود، که نتیجهٔ آن یک پروتئین کوتاهشده، ناقص و اغلب غیرکارکردی است.
- جهش خنثی
- 1. هر جهش در یک توالی اسید نوکلئیک که نه برای توانایی یک جاندار در بقا و تولیدمثل سودمند است و نه زیانبار.
- 2. هر جهشی که در آن انتخاب طبیعی بر گسترش جهش در درون یک جمعیت تأثیری نمیگذارد.
- جهش غیرمترادف
- نوعی جهش که در آن جایگزینی یک باز نوکلئوتیدی با دیگری، پس از رونویسی و ترجمه، به یک توالی اسید آمینه میانجامد که با توالی تولیدشده توسط ژن اصلیِ جهشنیافته متفاوت است. از آنجا که جهشهای غیرمترادف همواره به یک تغییر زیستی در جاندار میانجامند، اغلب در معرض فشار فرگشتی قوی قرار دارند. در تقابل با جایگزینی مترادف.
- جهش کشنده
- هر جهشی که به مرگ زودرس موجودِ حامل آن بینجامد. جهشهای کشندهٔ مغلوب تنها برای هموزیگوتها مرگبارند، در حالی که جهشهای کشندهٔ غالب حتی در هتروزیگوتها نیز مرگبارند.[۵]
- جهش معکوس
- هر جهشی در یک ژن یا توالی دیانای که کارکرد یا فنوتیپ اصلی را که با جهشی پیشین در همان توالی تغییر یافته یا از میان رفته بود، بازمیگرداند یا نجات میدهد.[۵] مقایسه کنید با جهش مستقیم؛ همچنین ببینید جهش فروکوبنده.
- جهش ناگهانی
- تغییر جهشی ناگهانی و بزرگ از یک نسل به نسل بعد که برای ایجاد گونهزایی سریع یا فوری کافی است. اشکال گوناگون جهش ناگهانی، مانند جهش از طریق پلیپلوئیدی در گیاهان، اغلب در طول تاریخ بهعنوان شاهدی برای نظریههای خاصی از جهشگرایی تفسیر شدهاند، در تقابل با gradualism داروینی.
- جهش de novo
- یک جهش خودبهخودی در ژنوم یک موجود زنده که برای دودمان آن موجود تازه است و نخستینبار در یک سلول زایا از یکی از والدین آن موجود یا در تخمک بارورشدهای که به آن موجود تبدیل میشود ظاهر شده است؛ یعنی جهشی که در ژنوم هیچیک از والدین وجود نداشته است.[۵]
- جهشگرایی
- جهشیافته
- یک موجود زنده، فراورده ژنی، یا صفت فنوتیپی که از یک جهش حاصل میشود، از نوعی که بهطور طبیعی در نمونههای گونه وحشی مشاهده نمیشود.
چ
- چشمانداز فرگشتی
- چندتبار
- گروهبندی جاندارانی که یک نیای مشترک بیواسطه ندارند؛ چنین گروههایی چندتبار نامیده میشوند. این اصطلاح اغلب درباره گروههایی از جانداران بهکار میرود که ویژگیهایی مشترک دارند که بهنظر مشابه میرسند اما در واقع خویشاوندی نزدیکی ندارند، که اغلب در نتیجه فرگشت همگرا است. پرهیز از گروهبندیهای چندتبار اغلب انگیزهای برای بازنگریهای عمده در طرحهای ردهبندی زیستی است. در مقابلِ تکتبار و پیراتبار.
- چندریختی
- رخداد منظم و همزمان دو یا چند الل (یا ژنوتیپ) در یک جایگاه واحد در یک جمعیت با فراوانیهایی که نمیتوان آنها را تنها با جهش مکرر توضیح داد (عموماً دستکم ۱٪)، که دلالت بر آن دارد که اللهای متعدد بهطور پایدار توسط اعضای جمعیت بهارث میرسند.[۶]
- چندشاخگی
- نگاه کنید به چندشاخگی.
- چندشاخگی
- چندنمودی
- پدیدهای که در آن یک ژن بر دو یا چند صفت رخنمودی بهظاهر نامرتبط، از طریق هر یک از چند ساز و کار متمایز اما بالقوه همپوشان، اثر میگذارد.
- چندنمودی
- نگاه کنید به چندنمودی.
ح
خ
- خردفرگشت
- تغییر فرگشتی آنگونه که در مقیاسی نسبتاً کوچک، معمولاً درون یک گونه یا جمعیت خاص رخ میدهد، در تقابل با کلانفرگشت که در مقیاسی بزرگتر روی میدهد. بهسبب سهولت مشاهده و مدلسازی تغییرات کوچکمقیاس در فراوانی آلل درون جمعیتهای گسسته، اصول ژنتیک جمعیت اغلب در مقیاسهای خردفرگشتی مفهومسازی میشوند.
- خردناهمجا
- گونهزایی ناهمجایی که در مقیاس جغرافیایی کوچک رخ میدهد.[۱۴]
- خزانه ژنی
- مجموع همه اللهای گوناگونی که اعضای یک جمعیت واحد در آن سهیماند.
- خودآلوپلیپلوئید
- خودپلیپلوئید
- خودتخمی
- یک سلول یا جاندار که برای یک جایگاه که در آن دو الل همولوگ بهسبب نیا یکسان هستند تخمی است، که هر دو از یک ژن واحد در یک نیای مشترک برآمدهاند.[۵] در برابر دگرتخمی.
- خودجداریختی
- خوشهبندی
- خویشآمیزی
- تولیدمثل جنسی میان نژادها یا افرادی که از نظر ژنتیکی بهنزدیکی خویشاوندند. خویشآمیزی به همتخمگی میانجامد که میتواند هم احتمال متأثرشدن زادگان از صفات نهفتهٔ زیانبار را افزایش دهد و هم احتمال تثبیت صفات سودمند را در جمعیت زادآور بالا ببرد. خود رویداد زادآوری و زادگان حاصل از آن، هر دو ممکن است اینکراس (incross) خوانده شوند و گفته میشود زادگان همنژاد (inbred)اند. در تقابل با لقاح بیرونی.
- خویشاوند
د
- داروینیسم
- درک از فرگشت زیستی آنگونه که توسط طبیعیدان انگلیسی چارلز داروین و دیگران بسط داده شد، که بیان میکند همهٔ موجودات زندهٔ زیستی از طریق انتخاب طبیعی تغییرات کوچک و به ارث رسیدهای پدید میآیند و رشد میکنند که توانایی فرد را در رقابت، بقا و تولیدمثل افزایش میدهند. در گفتار عامیانه، این اصطلاح گاهی بهطور گستردهتری برای اشاره به نظریهٔ فرگشتی نوین بهعنوان یک کل به کار میرود، هرچند در محافل علمی معمولاً میان ایدههای داروین و افزودههای بعدی به زیستشناسی فرگشتی تمایز قائل میشوند.
- درخت تبارزایی
- بازنمایی گرافیکی یک درخت تبارزایی، که از یک نمودار شاخهای و درختمانند تشکیل شده که روابط فرگشتی میان گونههای زیستی یا دیگر آرایهها را، آنگونه که از شباهتها و تفاوتهای ویژگیهای ریختشناختی یا ژنتیکی آنها استنباط میشود، و چگونگی تبار یافتن همگی آنها از یک نیای مشترک را نشان میدهد.
- درونآمیزی
- درونگرایی (دورگه)
- جابهجایی یک ژن از خزانهٔ ژنی یک جمعیت یا گونه به درون خزانهٔ ژنی جمعیتی دیگر از راه تلاقی برگشتی مکرر دورگههای این دو جمعیت با یکی از جمعیتهای والد. درونگرایی منبعی فراگیر و مهم از گوناگونی ژنتیکی در جمعیتهای طبیعی است، اما ممکن است بهعمد نیز در پرورش گیاهان و جانوران اهلی بهکار رود.
- دستهٔ دورگه
- دگرزمانی
- اغراق در یک یا چند ویژگی فنوتیپی یک جاندار نسل بعد در مقایسه با ویژگیهای نیاکان آن، به دلیل افزایش مدتزمان رشد اونتوژنتیک در طول تاریخ فرگشتی.[۲]
- دوبخشی
- (دربارهٔ یک سلول یا موجود زنده) داشتن دو نسخهٔ همتا از هر کروموزوم. در تقابل با تکلاد و پلیپلوئید.
- دودمان
- یک توالی فرگشتی خطی که یک سلول، موجود زنده یا گونهٔ نیایی را به یک سلول، موجود زنده یا گونهٔ بازماندهٔ خاص پیوند میدهد، شامل همهٔ موجودات واسطه و دربرگیرندهٔ هر تعداد نسل؛ پیشروی مستقیم رویدادهای تولیدمثلی (یعنی خط نسب) میان دو فرد، شامل افراد بهصورت عمودی مرتبط، مانند والد(ین) و فرزندان، اما معمولاً بهاستثنای افراد بهصورت افقی مرتبط که خودشان مستقیماً مادهٔ ژنتیکی به هیچیک از افراد دربرگرفته ندادهاند، مانند خواهر و برادرها.
- دودمان زایا
- 1. در جانداران پرسلولی، جمعیت سلولهایی که قادر به انتقال مواد ژنتیکی خود به زادگان جاندار هستند و بنابراین (دستکم بهلحاظ نظری) از سلولهای سوماتیک که نمیتوانند مواد ژنتیکی خود را جز به سلولهای دختر میتوزی بلافصل خود منتقل کنند، متمایز هستند. سلولهای دودمان زایا را سلولهای زایا مینامند.
- 2. دودمان سلولهای زایا، که در طول نسلهای بسیار گسترده است، و حاوی مواد ژنتیکی است که از نیاکان به یک فرد منتقل شده است.
- دورگه
- فرزندی که از ترکیب ویژگیهای دو جاندار از سردههای، گونههای، نژاد دامیهای یا گونههای مختلف از طریق تولیدمثل جنسی حاصل میشود. دورگهها ممکن است بهطور طبیعی یا مصنوعی پدید آیند، مانند هنگام زادگیری گزینشی جانوران و گیاهان اهلی. سدهای تولیدمثلی معمولاً از دورگهگیری میان جانداران دور-خویشاوند جلوگیری میکنند، یا دستکم تضمین میکنند که فرزندان دورگه نازا باشند، اما دورگههای بارور ممکن است به گونهزایی بینجامند.
- دورگهسازی
- آمیزش والدین نژاد اصیل متعلق به دو نژاد، گونه یا جمعیت مختلف، اغلب بهعمد بهعنوان نوعی زادگیری گزینشی، با هدف تولید فرزندانی که صفات هر دو دودمان والد را به اشتراک میگذارند یا هتروزیس نشان میدهند. در دامپروری، فرزند یک آمیزش میان نژادهای یک گونهی واحد دورگه نامیده میشود، در حالی که فرزند یک آمیزش میان گونههای مختلف هیبرید نامیده میشود.
- دورگهگیری
- فرایندی که از راه آن یک جاندار دورگه از دو والد از سردهها، گونهها، نژادها یا گونههای مختلف تولید میشود.
- دورگهٔ متقابل
- یک دورگهٔ فرزند حاصل از یک آمیزش متقابل میان والدینی که در ژنوتیپ یا فنوتیپ یا هر دو متفاوتاند.[۵]
- دوز ژن
- تعداد نسخههای یک ژن معین که در یک ژنوم وجود دارد. دوز ژن مستقیماً بر میزان فرآورده ژنی که یک سلول قادر به بیان آن است اثر میگذارد، هرچند طیف گوناگونی از سازوکارهای کنترلی تکامل یافتهاند که بیان ژن را بهدقت تنظیم میکنند. تغییرات در دوز ژن که از جهشها ناشی میشوند شامل تنوع تعداد کپی میشود.
- دیانای انگلی
- نگاه کنید به عنصر ژنتیکی خودخواه.
- دیرینپلیپلوئیدی
- دیرینشناسی
ذ
ر
- رانش ژن
- تغییری در فراوانی رخداد یک الل موجود در یک جمعیت، که ناشی از تغییر تصادفی در توزیع اللها از یک نسل به نسل بعد است. اغلب بهعنوان نقشی تعبیر میشود که شانس تصادفی در تعیین این موضوع ایفا میکند که آیا یک الل معین با هر نسل رایجتر یا کمیابتر میشود، صرفنظر از تأثیر انتخاب طبیعی. رانش ژن ممکن است موجب شود برخی اللها، حتی اللهای در غیر این صورت سودمند، بهکلی از خزانه ژنی ناپدید شوند و بدینترتیب گوناگونی ژنتیکی را کاهش دهند، یا ممکن است موجب شود اللهایی که در ابتدا کمیاباند، حتی اللهای خنثی یا زیانبار، بسیار فراوانتر یا حتی تثبیت شوند.
- رانه ژنی
- راهبرد K
- راهبردهای زایشی
- یک راهبرد زادآوری که با چند چرخهٔ زادآوری در طول زندگی یک جاندار مشخص میشود. گفته میشود جاندارانی که از چنین راهبردی بهره میبرند، چندبارزا (iteroparous)اند. چندبارزایی معمولاً در تقابل با یکبارزایی قرار میگیرد.
- رشدسنجی
- مطالعهٔ تطبیقی رابطهٔ میان اندازهٔ بدن یک جاندار (یا یک اندام مشخص، برای نمونه مغز) و دیگر ویژگیهای زیستی گوناگون، مانند شکل بدن، آناتومی، فیزیولوژی، یا رفتار.
- روبش گزینشی
- فرایندی که طی آن گزینش مثبت قوی یک جهش جدید و سودمند در یک جمعیت سبب میشود که جهش چنان بهسرعت به تثبیت برسد که توالیهای دیانای پیوسته مجاور نیز از طریق همسواری ژنتیکی تثبیت شوند و بدینترتیب گوناگونی ژنتیکی جایگاههای مجاور در درون جمعیت کاهش یابد یا از میان برود.
- رویداد بنیانگذار
- رویداد جهش
- پیدایش واقعی یک جهش خاص در زمان و مکان؛ نمونه معرفی اصلی آن به یک ژنوم، در تقابل با نمود فنوتیپی آن، که ممکن است تنها نسلها پس از واقعه رخ دهد.
- ریزگونه
ز
- زادهها
- یک نسل ژنتیکی یا گروهی از نسلها؛ فرزندان یک رویداد تولیدمثلی واحد، خواه جنسی خواه غیرجنسی.[۱]
- زمانگونه
- زیرگونه
- یک نژاد جغرافیایی نامگذاریشده، یا مجموعهای از جمعیتهای یک گونه واحد که یک یا چند ویژگی متمایز مشترک دارند و ناحیهای را اشغال میکنند که از نظر جغرافیایی از دیگر زیرگونهها جدا است.[۲] همه گونهها بهطور رسمی به زیرگونهها تقسیم نمیشوند، و خود آرایه گونه مفهومی بهخوبی تعریفشده نیست.
- زیستجغرافیای جانشینی
- رویکردی جغرافیای زیستی به پراکنش گونهها که از تاریخچههای تبارزایی آنها بهره میگیرد—الگوهایی که از رویدادهای گونهزایی ناهمجا در گذشته پدید آمدهاند.[۱۵]
- زیستشناسی رشد
- زیستشناسی فرگشتی
- رشتهای از زیستشناسی که فرگشت موجودات زیستی و فرایندهایی که از طریق آنها عمل میکند را مطالعه میکند، از جمله انتخاب طبیعی، سازگاری، نیای مشترک و گونهزایی. زیستشناسی فرگشتی بهعنوان یک عنصر بنیادی از همنهش نوین، مفاهیمی را از ژنتیک، سازگانشناسی، بومشناسی، دیرینشناسی، زیستشناسی رشد و رشتههای متعدد دیگر یکپارچه میکند.
- زیگوت
- نوعی یاختهٔ یوکاریوتی که مستقیماً در نتیجهٔ رویداد لقاح میان دو گامت پدید میآید. در جانداران پُریاختهای، زیگوت نخستین مرحلهٔ رشدی است.
ژ
- ژن
- هر بخش یا مجموعهای از بخشهای یک مولکول نوکلئیک اسید که حاوی اطلاعات لازم برای تولید یک رونوشت کارکردی RNA بهصورت کنترلشده است. ژنها اغلب واحد بنیادی واحد گزینش وراثت در نظر گرفته میشوند و معمولاً در DNA رمزگذاری میشوند. یک ژن معین میتواند چندین نسخه متفاوت، یا الل، داشته باشد و یک ژن واحد ممکن است بر بسیاری از فنوتیپهای گوناگون اثر بگذارد.
- ژن احتمالی
- یک توالی نوکلئوتیدی خاص که بر پایه شناسایی چارچوب خواندن باز آن، گمان میرود یک ژن کارکردی باشد. این ژن به این معنا «احتمالی» نامیده میشود که هنوز هیچ کارکردی برای فراوردههای آن توصیف نشده است.
- ژن جهشزا
- هر ژن یا توالی جهشیافتهای که آهنگ آهنگ جهش خودبهخودی یک یا چند ژن یا توالی دیگر را افزایش میدهد. جهشزاها اغلب عناصر جابهجا شونده هستند، یا ممکن است ژنهای خانهدار جهشیافته باشند مانند آنهایی که هلیکازها یا پروتئینهای دخیل در نمونهخوانی را رمزگذاری میکنند.[۵]
- ژن یتیم
- یک ژن که هیچ همتافت کارکردی شناختهشدهای در خارج از یک گونه یا دودمان مشخص ندارد و بنابراین تاریخ فرگشتی آن مبهم است.
- ژنتیک
- شاخهای از زیستشناسی که ژنها، گوناگونی ژنتیکی، و وراثت را در جانداران زنده مطالعه میکند.
- ژنتیک بومشناختی
- مطالعهٔ ژنتیک در ارتباط با بومشناسی و شایستگی جمعیتهای طبیعی موجودات زنده.
- ژنتیک پیشرو
- رویکردی آزمایشی در ژنتیک مولکولی که در آن پژوهشگر از یک فنوتیپ مشخص و شناختهشده آغاز میکند و میکوشد مبنای ژنتیکی آن فنوتیپ را با هر یک از گسترهای از فنون آزمایشگاهی تعیین کند، که معمولاً با القای جهشهای تصادفی در ژنوم موجود و سپس غربالگری برای تغییرات در فنوتیپ موردنظر انجام میشود. فرض بر این است که تغییرات فنوتیپی مشاهدهشده از جهش (یا جهشهای) موجود در نمونهٔ غربالشده ناشی شدهاند، که سپس میتوان آنها را به جایگاههای ژنومی مشخص و در نهایت به یک یا چند ژن نامزد مشخص نقشهبرداری کرد. این روششناسی در تقابل با ژنتیک معکوس است، که در آن یک ژن مشخص یا فراوردهٔ ژنی آن بهطور جداگانه دستکاری میشود تا کارکرد آن ژن شناسایی شود.
- ژنتیک جمعیت
- زیرشاخهای از ژنتیک و زیستشناسی فرگشتی که تفاوتهای ژنتیکی درون و میان جمعیتهای جانداران را مطالعه میکند.
- ژنتیک حفاظت
- شاخهای میانرشتهای از ژنتیک جمعیت که روشها و مفاهیم ژنتیکی را در تلاش برای درک پویایی ژنها در جمعیتها به کار میبرد، با هدف اصلی پرهیز از انقراضها و حفظ و بازگرداندن تنوع زیستی.
- ژنتیک سنتی
- شاخهای از ژنتیک که صرفاً بر مشاهدهی نتایج مرئی کنشهای تولیدمثلی استوار است، در برابر آنچه با فنون و روششناسیهای مدرن زیستشناسی مولکولی ممکن شده است. مقایسه کنید با ژنتیک مولکولی.
- ژنتیک کمی
- شاخهای از ژنتیک جمعیت که فنوتیپهایی را بررسی میکند که بهطور پیوسته تغییر میکنند (مانند قد یا جرم)، در برابر آنهایی که در دستههای مجزای قابلتشخیص قرار میگیرند (مانند رنگ چشم یا وجود یا نبود یک صفت خاص). ژنتیک کمی از روشها و مفاهیم آماری برای پیوند دادن مقادیر فنوتیپی توزیعشده بهطور پیوسته با ژنوتیپها و فراوردههای ژنی مشخص بهره میگیرد.
- ژنتیک معکوس
- رویکردی آزمایشی در ژنتیک مولکولی که در آن پژوهشگر با یک ژن شناختهشده آغاز میکند و میکوشد با هر یک از گوناگونی فنون آزمایشگاهی، کارکرد آن یا اثر آن بر فنوتیپ را تعیین کند، که این کار معمولاً با جهشدادن عمدی توالی اسید نوکلئیک ژن یا با فروکوب یا خاموشکردن بیان آن و سپس غربالگری جانداران جهشیافته برای یافتن تغییرات آشکار در فنوتیپ انجام میشود. هنگامی که ژن موردنظر تنها ژنی در ژنوم باشد که بیانش دستکاری شده، فرض میشود که هر تغییر فنوتیپی مشاهدهشده تحت تأثیر آن است. این روش وارونِ ژنتیک مستقیم است، که در آن یک فنوتیپ شناختهشده به یک یا چند ژن ناشناخته پیوند داده میشود.
- ژنتیک مولکولی
- شاخهای از ژنتیک که از روشها و فنون زیستشناسی مولکولی برای مطالعه ساختار و کارکرد ژنها و فراوردههای ژنی در سطح مولکولی بهره میبرد. در تقابل با ژنتیک سنتی.
- ژنشناسی پزشکی
- شاخهای از پزشکی و علوم پزشکی که به مطالعه، تشخیص و مدیریت ناهنجاریهای ارثی میپردازد، و در معنای گستردهتر، کاربرد دانش درباره ژنتیک انسان در مراقبت پزشکی.
- ژنوتیپ
- کل مجموعه اللهای موجود در ژنوم یک فرد خاص، که فنوتیپ آن فرد را پدید میآورد.
- ژنوم
- کل مجموعه مواد ژنتیکی موجود در کروموزومهای یک جاندار، اندامک، یا ویروس. این اصطلاح همچنین برای اشاره به مجموعه جمعی جایگاههای ژنتیکی جایگاه مشترک میان هر عضو از یک جمعیت یا گونه بهکار میرود، صرفنظر از اللهای مختلفی که ممکن است در این جایگاهها در افراد مختلف وجود داشته باشند.
- ژنومیک
- رشتهای بینرشتهای که ساختار، کارکرد، تکامل، نگاشت، و ویرایش کل ژنومها، در مقابل ژنهای منفرد، را مطالعه میکند.
- ژنهای همساناثر
- دو یا چند ژن که همارز و افزونبر یکدیگرند، به این معنا که با وجود رمزگذاری برای فراوردههای ژنی متمایز، هر یک هنگامی که در همان زمینهٔ ژنتیکی قرار گیرند، به یک فنوتیپ یکسان میانجامند. اگر چند ژن همساناثر در یک ژنوتیپ واحد وجود داشته باشند، ممکن است سهم آنها در فنوتیپ یا تجمعی باشد یا غیرتجمعی.[۶]
س
- ساختارهای قیاسی
- مجموعهای از ساختارهای ریختشناختی در جانداران مختلف که شکل یا کارکرد مشابهی دارند ولی در نزدیکترین نیای مشترک آن جانداران حضور نداشتهاند. اصطلاح تبارشاخهشناختی برای همین پدیده همریختی است.
- سازش کنامی
- سازگاری
- 1. فرایند پویای فرگشتی که از طریق آن جانداران زیستی ویژگیهایی را پدید میآورند که به آنها امکان میدهد در محیطهای خود زنده بمانند و تولیدمثل کنند.
- 2. حالت یا وضعیتی که یک جمعیت در جریان آن فرایند به آن میرسد.
- 3. هر صفت یا phenotypic trait که نقشی کارکردی در یک جاندار منفرد دارد و از طریق انتخاب طبیعی فرگشت یافته و حفظ شده است.
- سازگاری همزمان
- سازگاری متقابل جاندارانی که به جمعیتها یا گونههای مختلف تعلق دارند، یا بخشهای مختلف یک جاندار واحد، یا ژنهایی در جایگاههای مختلف در یک ژنوم واحد، بهویژه با این دلالت که سازگاری در هر دو موجودیت توسط نیروی فرگشتی یکسانی به پیش رانده میشود.[۱۶]
- سازگاریگرایی
- دیدگاه داروینی مبنی بر اینکه بسیاری یا بیشتر صفات فیزیولوژیک و رفتاری جانداران سازگاریهایی هستند که برای کارکردهای ویژه یا به دلایل ویژه فرگشت یافتهاند (در برابر اینکه فراوردههای جانبی فرگشت دیگر صفات، پیامد محدودیتهای زیستی، یا نتیجهٔ تغییرات تصادفی باشند).
- سازوکار جداکننده
- سد پسازآمیزش
- سد پیشازآمیزش
- سد ناژنتیکی
- سدهای جداکنندهٔ تولیدمثلی
- مجموعهٔ سازوکارهای فرگشتی، رفتارها و فرایندهای فیزیولوژیک مسئول جدایی تولیدمثلی دو یا چند جمعیت.
- سلول زایا
- هر سلولی که گامتهای یک جانداری را که بهصورت جنسی تولیدمثل میکند پدید میآورد. سلولهای زایا حاملهای مواد ژنتیکیاند که در نهایت به نوادگان جاندار منتقل خواهد شد و معمولاً از سلولهای سوماتیک که کاملاً جدا از دودمان زایا هستند متمایز میشوند.
- سنتز نوین
- سوارشدن ژنتیکی
- نوعی گزینش پیوسته که در آن گزینش مثبت یک الل که در حال طی یک روبش گزینشی است موجب میشود اللهای ژنهای مختلف در جایگاههای مجاور نیز فراوانی خود را تغییر دهند و به آنها امکان میدهد همراه با الل گزینششده مثبت تا تثبیت «سوار شوند». اگر گزینش در جایگاه نخست بهاندازه کافی قوی باشد، اللهای خنثی یا حتی اندکی زیانبار درون همان گروه پیوستگی ممکن است همان گزینش مثبت را تجربه کنند، زیرا فاصله فیزیکی میان جایگاههای مجاور بهاندازه کافی کوچک است که احتمال رخداد یک رویداد نوترکیبی میان آنها اندک است. سوارشدن ژنتیکی اغلب نقطه مقابل گزینش پسزمینه در نظر گرفته میشود.
- سویههای همنژاد
- هر دودمانی از یک گونهٔ خاص که در آن افراد به دلیل تاریخچهٔ طولانی از خویشآمیزی مکرر — چه به شیوهٔ طبیعی و چه مصنوعی — از نظر ژنتیکی تقریباً یا کاملاً با یکدیگر همساناند. دودمانها معمولاً پس از دستکم ۲۰ نسل خویشآمیزی (برای نمونه از راه خودلقاحی یا آمیزش خواهر-برادری) همنژاد بهشمار میآیند؛ نقطهای که در آن تقریباً همهٔ جایگاههای ژنگان همتخمهاند و بنابراین میتوان همهٔ افراد را عملاً همچون همتاها در نظر گرفت (با وجود اینکه افراد همچنان از راه تولیدمثل جنسی پدید میآیند).
- سیسترون
- سیستم جفتگیری
- سینتنی
ش
- شارش ژن
- انتقال گوناگونی ژنتیکی از یک جمعیت به جمعیت دیگر، به هر وسیلهای که در دسترس باشد، برای مثال از طریق تولیدمثل جنسی، انتقال افقی ژن، یا ادغام رتروویروسی.
- شبهالل
- هر یک از دو یا چند ژن یا توالی متفاوت که سهم یکسان یا مشابهی در رخنمود دارند، و بنابراین بهنظر اللهای حقیقی میرسند، اما در واقع از نظر ساختاری اللی نیستند (یعنی جایگاههای همتا بر روی کروموزومهای همتا را اشغال نمیکنند).[۱]
- شبهچندلاد
- 1. وضعیتی که در آن تعداد کروموزومها در یک مجموعه کروموزومی دو برابر (یا سه برابر و غیره) میشود اما بدون افزایش متناظر در مقدار واقعی مواد ژنتیکی (یعنی سطح پلوئیدی). این زمانی رخ میدهد که کروموزومهای یک مجموعه کروموزومی عادی (برای مثال دیپلوئید) به قطعات کوچکتر تکهتکه میشوند، که تعداد کل کروموزومهای منفرد را افزایش میدهد اما نسخههای همتای بیشتری از آن کروموزومها ایجاد نمیکند (بهگونهای که سلول دیپلوئید باقی میماند).[۱]
- 2. هر رابطه عددی میان مجموعههای کروموزومی در گروههایی از جانداران خویشاوند که نشان میدهد برخی از آن جانداران پلیپلوئید برخی دیگرند در حالی که در واقع چنین نیستند.[۱]
- شبهژن
- یک توالی غیرکارکردی از دیانای که شبیه یک ژن کارکردی است. شبهژنها معمولاً نسخههای زائد ژنهای کارکردی هستند که توسط فرایندهای طبیعی مضاعف شدهاند، با این تفاوت که فاقد توالیهای تنظیمی لازم برای رونویسی یا ترجمه درست هستند یا دارای دیگر نقصها مانند جهشهای تغییر چارچوب، کدونهای پایان زودهنگام یا اینترونهای مفقود هستند.
- شیب محیطی
ص
- صفت پلیژنی
- هر صفت رخنمودی که تحت کنترل مستقیم بیش از یک ژن باشد. صفات پلیژنی اغلب صفات کمّی هستند.
- صفت پیچیده
- نگاه کنید به صفت کمی.
- صفت جداگشته
- برای یک تبارشاخه معین، هر صفت یا ویژگی (مثلاً یک فنوتیپ مشخص) که در یک یا چند زیرگروه از تبارشاخه وجود دارد اما در نیای مشترک آن تبارشاخه نیست. صفات مشتق تفاوتهای چشمگیری با وضعیت «ابتدایی» اولیهٔ یک صفت نیایی موجود در نیای مشترک نشان میدهند، که حاکی از آن است که آن صفت طی تاریخ فرگشتی تبارشاخه سازگاری گستردهای را پشت سر گذاشته تا به وضعیت مشتق خود برسد. هر دو اصطلاح نسبیاند: صفتی که برای یک تبارشاخه مشتق است ممکن است برای تبارشاخهای دیگر صفت نیایی باشد. اصطلاح «صفت مشتق» اغلب بهجای اصطلاح فنیتر جداریختی به کار میرود.
- صفت شمارشی
- صفتی شمارشپذیر با تغییرات گسسته، برای نمونه تعداد انگشتان.[۲]
- صفت کمی
- صفت نیایی
- برای یک تبارشاخه معین، هر صفت یا ویژگی (برای نمونه یک فنوتیپ مشخص) که در نیای مشترک آن تبارشاخه پدیدار میشود؛ همان صفت ممکن است در برخی یا همهٔ نوادگان مستقیمِ دربرگرفته در تبارشاخه نیز پدیدار شود، که نشان میدهد در طول تاریخ فرگشتی تبارشاخه تغییر چندانی نکرده یا اصلاً تغییر نکرده و بدینسان وضعیت «ابتدایی» خود را حفظ کرده است. برخی ولی نه همهٔ زیرگروههای درون تبارشاخه ممکن است صفات جداگشته داشته باشند، که در آنها صفت نیایی در طول زمان فرگشتی بهطور چشمگیری تغییر کرده بهگونهای که وضعیت نیایی اصلی دیگر وجود ندارد. هر دو اصطلاح نسبیاند: یک صفت نیایی برای یک تبارشاخه ممکن است یک صفت جداگشته برای تبارشاخهای دیگر باشد. اصطلاح «صفت نیایی» اغلب هممعنا با اصطلاح فنیترِ نزدیکریختی بهکار میرود.
ض
- ضریب انتخاب
- تفاوت میان میانگین شایستگی نسبی افراد یک ژنوتیپ معین و افراد یک ژنوتیپ مرجع.[۲]
ع
- عادیپسند
- فرضیهای فرگشتی که مطرح میکند طی گزینش جنسی، جانداران ترجیحاً به دنبال جفتهایی با کمترین میزان صفات غیرعادی یا جهشیافته میگردند، برای نمونه از نظر کارکرد، ظاهر یا رفتار. این فرضیه میکوشد خوشهبندی جانداران جنسی در گونههای متمایز و دیگر مسائلی را که با معمای داروین توصیف میشوند، تبیین کند.
- عدم تعادل پیوستگی
- عدم تفکیک
- ناکامی کروموزومهای همتا یا کروماتیدهای خواهر در تفکیک درست در طول تقسیم سلول. عدم تفکیک به سلولهای دختری میانجامد که آنیوپلوئید هستند، یعنی شمار غیرعادی از یک یا چند کروموزوم مشخص را دارند. این پدیده میتواند ناشی از هر یک از عوامل گوناگونی باشد.
غ
- غلبه
- رابطهای میان اللهای یک ژن که در آن یک آلل اثری بر فنوتیپ ایجاد میکند که سهم آلل دیگری را در همان جایگاه تحتالشعاع قرار میدهد یا «میپوشاند»؛ گفته میشود که آلل نخست و صفت فنوتیپی مرتبط با آن غالب، و آلل دوم و صفت مرتبط با آن مغلوب هستند. اغلب، آلل غالب رمز یک پروتئین کارا را میدهد در حالی که همتای مغلوب آن چنین نمیکند. غلبه ویژگی ذاتی هیچ آلل یا فنوتیپی نیست، بلکه صرفاً رابطهٔ آن را با یک یا چند آلل یا فنوتیپ دیگر توصیف میکند؛ ممکن است یک آلل همزمان نسبت به آلل دومی غالب، نسبت به آلل سومی مغلوب، و نسبت به آلل چهارمی همغالب باشد. در نگارش اختصاری ژنتیک، آللهای غالب اغلب با یک حرف بزرگ نشان داده میشوند (مثلاً «A»، در تقابل با «a» مغلوب).
- غیرفعالسازی لیون
- نگاه کنید به غیرفعالسازی کروموزوم ایکس.
ف
- فاجعهٔ خطا
- انقراض یک جمعیت از موجودات (تا جایی که جمعیت بتواند با یک یا چند ویژگی قابلشناسایی تعریف شود) در نتیجهٔ انباشت بیش از حد جهشهای ژنتیکی، بهگونهای که جمعیت هویت خود را از دست میدهد، زیرا همهٔ نوادگان جهشیافتهٔ آن فاقد ویژگیهای قابلشناسایی هستند.
- فاصله جهشی
- کوچکترین تعداد جهشهای لازم برای استخراج یک ژن، توالی یا فنوتیپ خاص از دیگری؛[۵] کمینه تعداد درج، حذف یا جایگزینی نوکلئوبازها که برای تبدیل یک توالی به توالی دیگر لازم است.
- فاصله ژنتیکی
- سنجهای از واگرایی ژنتیکی میان گونهها، جمعیتهای درون یک گونه، یا افراد، که بهویژه در تبارزایی برای بیان زمان سپریشده از وجود یک نیای مشترک یا میزان تمایز در توالیهای دیانای تشکیلدهنده ژنوم هر جمعیت یا فرد بهکار میرود.
- فراوانی آلل
- فراوانی نسبیای که با آن یک الل مشخص از یک ژن معین (در برابر اللهای دیگر همان ژن) در یک جایگاه مشخص در اعضای یک جمعیت رخ میدهد؛ بهطور دقیقتر، این نسبت همهٔ کروموزومهای درون یک جمعیت است که الل مشخصی را حمل میکنند و بهصورت کسر یا درصد بیان میشود. فراوانی الل از فراوانی ژنوتیپ متمایز است، هرچند با هم مرتبطاند.
- فراوانی آلل کمیاب (MAF)
- فراوانی ژنوتیپ
- فراوانی یا نسبت یک جمعیت که دارای یک ژنوتیپ معین است. مقایسه کنید با فراوانی آلل.
- فرآورده ژن
- هر یک از مواد زیستشیمیایی حاصل از بیان یک ژن، که معمولاً بهعنوان رونوشت کارکردی mRNA تولیدشده از طریق رونویسی ژن یا پروتئین کاملاً ساختهشده تولیدشده از طریق ترجمه رونوشت تعبیر میشود، هرچند مولکولهای آرانای غیرکدکننده مانند آرانای حاملها نیز ممکن است فرآورده ژن در نظر گرفته شوند.
- فرزند
- فرسایش ژنتیک
- فرضیه ملکه سرخ
- فرضیهی دلقک دربار
- فرضیهٔ پیوندگاهی
- این فرضیه که هر صفت رخنمودی احتمالاً تحت تأثیر بیش از یک ژن قرار دارد و برعکس، بیشتر ژنها بر بیش از یک رخنمود اثر میگذارند.[۱]
- فرگشت
- پدیدهای که از طریق آن ویژگیهای وراثتپذیر جمعیتهای زیستی در طول نسلهای پیاپی تغییر میکنند. فرگشت زمانی رخ میدهد که فرایندهایی مانند انتخاب طبیعی و رانش ژن بر گوناگونی ویژگیهایی که میان اعضای یک جمعیت وجود دارد عمل میکنند و موجب میشوند برخی ویژگیها در درون جمعیت کموبیش رایج شوند.
- فرگشت بازگردنده
- فرگشت مکرر یک صفت یا منش معین، به هر دلیلی، چه از راه انتخاب طبیعی و چه از راه رانش ژن.
- فرگشت پیشرونده
- تغییر فرگشتی که درون دودمان یک گونه رخ میدهد، در برابر انشعاب دودمان (تبارشاخهزایی).[۳]
- فرگشت تکراری
- فرگشت مکررِ ویژگیها یا صفات فنوتیپی مشابه در جاندارانِ گوناگون و در زمانهای مختلف در طول تاریخ فرگشتی یک تبارشاخه،[۲] پدیدهای که میتواند به انقراضزدایی ظاهریِ جانداری بینجامد که پیشتر منقرضشده پنداشته میشد.
- فرگشت شبکهای
- نگاه کنید به فرگشت شبکهای.
- فرگشت شبکهای
- پیوند دودمانهای متفاوت یک تبارشاخه از راه دورگهگیری.[۲]
- فرگشت کوانتومی
- جابهجایی فرگشتی سریع در یک دودمان به یک حالت فنوتیپی که بهطور آشکار با حالت نیایی متفاوت است.[۲]
- فرگشت موازی
- فرگشت مستقل صفات جداریخت یا ویژگیهای مشابه یا یکسان در دودمانهای خویشاوند، که معمولاً تصور میشود مبتنی بر دگرگونیهای مشابه در مسیرهای تکوینی مشترک است.[۲] در مقابلِ فرگشت همگرا.
- فرگشت موزاییکی
- تغییر فرگشتی برخی ساختارها، صفات یا دیگر اجزای سازگارانه فنوتیپ در زمانهای متفاوت یا با آهنگهای متفاوت نسبت به سایرین، چه درون یک گونه واحد و چه میان گونههای مختلف.[۱]
- فرگشت واگرا
- فرایندی که از طریق آن هرگونه تمایز فنوتیپی یا ژنوتیپی میان دو جمعیت مختلف یا دودمانهای فرگشتی پدید میآید. واگرایی میتواند از طریق هریک از سازوکارهای گوناگون رخ دهد اما اغلب بهویژه پس از آنکه دو دودمان برای نسلهای متمادی جدایی تولیدمثلی داشتهاند چشمگیر است.[۳]
- فرگشت هدفمند
- فرگشت همگرا
- فرگشت مستقل evolution صفات یا سازگاریهای مشابه در دو یا چند آرایهی متفاوت از دورهها یا اعصار مختلف زمانی، که ساختارهای قیاسی پدید میآورد که فرم یا کارکرد مشابهی دارند اما در نزدیکترین نیای مشترک آن آرایهها حضور نداشتند؛ مثلاً ساختارهای امکاندهندهی پرواز بهطور مستقل در دستکم چهار دودمان متمایز فرگشت یافتند: حشرات، پرندگان، تروسورها و خفاشها. در تبارشاخهشناسی، همین پدیده همساختگرایی نامیده میشود. مقایسه کنید با فرگشت واگرا.
- فروپاشی دورگه
- فروکوب
- بنگرید به فروتنظیمی.
- فشار فرگشتی
- فنتیک
- مربوط به شباهت رخنمودی، برای مثال یک ردهبندی فنتیکی.[۲]
- فنوتیپ
- آمیزهای از صفات قابلمشاهده ریختشناختی، فیزیولوژیکی و رفتاری یک جاندار که از بیان ژنوتیپ جاندار و نیز تأثیر عوامل محیطی و برهمکنشهای میان این دو ناشی میشوند.
- فنوم
- مجموعه کامل رخنمودهایی که توسط یک ژنوم، سلول، بافت، جاندار یا گونه بیان میشوند یا میتوانند بیان شوند؛ مجموع تمامی ویژگیها یا صفات شیمیایی، ریختشناختی و رفتاری آشکار آن.
ق
- قاببندی تبارزایی
- روشی که برای استنباط احتمال وجود صفات خاص در جاندارانی که رخنمودشان ناقص یا ناشناخته است، بر پایه جایگاهشان در یک درخت تبارزایی نسبت به نیاکان، نسلها یا جانداران همزمان با رخنمودهای کاملتر، بهکار میرود. کاربرد عمده این روش در دیرینشناسی است، جایی که جانداران منقرضشدهای که تنها از فسیلها شناخته شدهاند با نزدیکترین خویشاوندان شناختهشدهشان مقایسه میشوند تا وجود یا نبود صفات خاصی که فسیلها برای آنها شواهد اندکی فراهم میکنند یا هیچ شواهدی فراهم نمیکنند، مانند بافتهای نرم، ساختارهای پوششی و صفات فیزیولوژیکی و رفتاری، استنباط شود، هرچند این روش بهشدت نسبت به ابهامهای ناشی از فرگشت همگرا حساس است.
- قانون تفکیک
- یکی از سه اصل بنیادی قوانین مندل، که بیان میکند در طول میوز، اللهای هر ژن از یکدیگر تفکیک میشوند بهگونهای که هر گامت حاصل تنها یک الل از هر ژن را حمل میکند.
- قانون تفکیک مستقل
- یکی از سه اصل بنیادی قوانین مندل، که بیان میکند ژنهای مسئول صفات فنوتیپی متفاوت، در طول میوز بهطور مستقل از یکدیگر تفکیک میشوند. ژنهای پیوسته استثنای قابلتوجهی بر این قاعدهاند.
- قانون جردن
- قانون غلبه و یکنواختی
- یکی از سه اصل بنیادی قوانین مندل، که بیان میکند اللهای مختلف یک ژن میتوانند نسبت به دیگران غالب یا مغلوب باشند، و اینکه موجودی با دستکم یک الل غالب، بهطور یکنواخت فنوتیپ مرتبط با الل غالب را بروز میدهد.
- قانون هالدین
- قانونی که توسط جان هالدین صورتبندی شد و بیان میکند که اگر یکی از جنسهای زادهٔ دورگه حاصل از آمیزش میان دو گونهٔ نوپدید ناپایا یا نازا باشد، آن جنس به احتمال بیشتری جنس هتروگامتیک است (یعنی جنسی که دو کروموزوم جنسی متفاوت دارد).[۱۷]
- قوانین مندل
- نظریهای درباره توارث زیستی بر پایه مجموعهای از اصول که در اصل توسط گرگور مندل در سالهای ۱۸۶۵ و ۱۸۶۶ پیشنهاد شد. مندل سه قانون تعمیمیافته درباره بنیاد ژنتیکی توارث استخراج کرد که، همراه با چند نظریه که دانشمندان بعدی توسعه دادند، بنیاد ژنتیک سنتی به شمار میروند. در تقابل با توارث غیرمندلی.
ک
- کانالیزهشدن
- توانایی یک جمعیت برای تولید پیوستهی یک فنوتیپ یکسان، صرفنظر از تغییرپذیری محیط آن یا گوناگونی ژنتیکی درون ژنوم آن. این مفهوم بیشتر در زیستشناسی رشد برای تفسیر این مشاهده به کار میرود که مسیرهای رشدی غالباً چنان توسط انتخاب طبیعی شکل میگیرند که دودمانهای سلولی در حال رشد به سوی یک سرنوشت واحد و مشخص «هدایت» یا «کانالیزه» میشوند و بهتدریج در برابر هرگونه آشفتگی جزئی که ممکن است رشد سلولها را از مسیر اولیهشان منحرف کند، مقاومتر میگردند.
- کروموزوم
- یک مولکول دیانای هستهای که بخشی یا تمام مادهی ژنتیکی یک جاندار را در بر دارد. کروموزومها را میتوان نوعی «بستهبندی» مولکولی برای حمل دیانای درون هستهی سلولها در نظر گرفت و در بیشتر یوکاریوتها از رشتههای بلند دیانای ساخته شدهاند که با پروتئینهای بستهبندی درهم پیچیدهاند که به رشتهها متصل میشوند و آنها را فشرده میکنند تا از تبدیل شدنشان به یک گره مدیریتناپذیر جلوگیری کنند. کروموزومها در فرمهای کاملاً فشردهشان که تنها در طول تقسیم سلولی رخ میدهد، بهآسانی قابل تشخیص و مطالعهاند. برخی جانداران ساده تنها یک کروموزوم حلقوی دارند، در حالی که بیشتر یوکاریوتها چندین کروموزوم خطی دارند.
- کروموزوم متعادلکننده
- کروموزومهای همتا
- مجموعهای از دو کروموزوم همتا، یکی مادری و یکی پدری، که در طول میوز درون هسته با یکدیگر جفت میشوند. آنها ژنهای یکسانی در جایگاههای یکسان دارند، اما ممکن است اللهای متفاوتی داشته باشند.
- کلانفرگشت
- تغییر فرگشتی آنگونه که در مقیاسی نسبتاً بزرگ، در سطح گونه یا بالاتر از آن رخ میدهد، در تقابل با خردفرگشت که در مقیاسی کوچکتر روی میدهد. کلانفرگشت اغلب بهعنوان اثرات انباشته خردفرگشت در نظر گرفته میشود.
- کلاین
- یک شیب فضایی قابل اندازهگیری در یک ویژگی یا صفت زیستی واحد از یک گونه یا جمعیت در سراسر گسترهی جغرافیایی آن. سرشت یک کلاین ممکن است ژنوتیپی باشد (مثلاً تغییر در فراوانی آلل) یا فنوتیپی (مثلاً تغییر در اندازهی بدن یا رنگدانهگذاری) و ممکن است گرادیان هموار و پیوسته یا تغییرات ناگهانی میان نواحی جغرافیایی مختلف را نشان دهد.
- کلاینهای همخوان
- کنام
- 1. نقش بومشناختی یک گونه یا آرایهٔ دیگر مشخص در یک جامعه بزرگتر، که عموماً بهصورت یک فضای چندبُعدی مفهومسازی میشود که مختصات آن پارامترهای گوناگونی هستند که شرایط لازم برای وجود گونه در هر جنبه از شکل کنونیاش را بازنمایی میکنند، شرایطی که یک گونه بهدلیل حضور گونههای رقیب به آن محدود میشود.[۱]
- 2. یک محیط یا شرایط محیطی مشخص که یک گونه با آن سازگار است؛ گوناگونی فعالیتها، رفتارها و کارکردهای بومشناختی که یک جاندار یا جمعیت در پاسخ به بافتار محیطی خود انجام میدهد، مانند توزیع منابع و رقبا، و راههایی که از آن طریق بهنوبهٔ خود همان بافتار را دگرگون میکند. این اصطلاح گاه بهطور غیردقیق همارز با ریززیستگاه بهکار میرود، به معنای فضای فیزیکی اشغالشده توسط یک گونه.[۱] همچنین نگاه کنید به کنام بنیادی و کنام تحققیافته.
- کیمریسم
- حضور دو یا چند جمعیت از سلولها با ژنوتیپهای متمایز درون بدن یک جاندار، که به آن یک کیمرا گفته میشود و از همجوشی سلولهایی که از زیگوتهای جداگانه سرچشمه گرفتهاند رشد یافته است؛ هر جمعیت از سلولها ژنوم خود را حفظ میکند، چنانکه جاندار بهعنوان یک کل آمیزهای از بافتهای ژنتیکی ناهمسان است. کیمریسم ژنتیکی ممکن است ارثی باشد (مثلاً با همجوشی چند رویان در دوران بارداری) یا پس از تولد کسب شود (مثلاً با پیوند دگرژنی سلولها، بافتها یا اندامها از یک اهداکنندهی ژنتیکی ناهمسان)؛ در گیاهان میتواند ناشی از پیوند زدن یا خطاهایی در تقسیم سلولی باشد. این پدیده مشابه ولی متمایز از موزاییکگرایی است.
گ
- گروه تاج
- گرید
- گزینش
- بقا یا تولیدمثل غیرتصادفی و افتراقی دستههایی از موجودیتهای با فنوتیپ متفاوت.[۲] گزینش ممکن است بهصورت طبیعی رخ دهد یا بهصورت مصنوعی القا شود. گزینش اغلب در حالتهای گوناگون (مانند گزینش جنسی و انتخاب خویشاوندی) یا از منظر واحدهای متمایز (مانند گزینش ژنی و انتخاب گروهی) مطالعه میشود.
- گزینش پیشرونده
- نگاه کنید به انتخاب هدایتی.
- گزینش جنسی
- گزینش ژنی
- نوعی انتخاب طبیعی که در سطح ژنها یا اللهای منفرد رخ میدهد، که در آن فراوانی یک الل درون یک جمعیت زادآور با شایستگی آن میانگینگرفتهشده بر گستره ژنوتیپهایی که در آنها رخ میدهد تعیین میشود؛ تکثیر افتراقی اللهای مختلف درون یک جمعیت در نتیجه ویژگیهایی که خود اللها دارند، نه ژنوتیپهایی که در آنها یافت میشوند.[۲]
- گزینش گریزان
- گزینش مثبت
- نگاه کنید به انتخاب هدایتی.
- گزینش r/K
- گزینش طبیعی ترکیبهایی از صفات در جانداران یا گونهها که بهنظر میرسد دربردارندهٔ نوعی بدهبستان میان کمیت و کیفیت فرزند است؛ بهگونهای که یک جاندار یا گونه ممکن است بهسوی بهکارگیری یکی از دو راهبرد تولیدمثلی متفاوت فرگشت یابد: r-راهبردها تمایل دارند فرزندان بسیار و کمکیفیت تولید کنند و در طول عمر خود شمار زیادی زاده پدید آورند اما انرژی کم یا هیچ انرژیای صرف پرورش یا محافظت از آنها نکنند، در حالی که K-راهبردها تمایل دارند فرزندان اندک و باکیفیت تولید کنند و شمار کمی زاده پدید آورند اما با افزایش متناظری در سرمایهگذاری والدینی. اینکه کدام راهبرد فرگشت مییابد به این بستگی دارد که کدامیک به موفقیت تولیدمثلی بیشتری میانجامد، که خودِ آن نیز اغلب به پایداری محیط جاندار وابسته است. در محیطی ناپایدار، که در آن احتمال زندهماندن هر فرزند تا بلوغ پایین است، سرمایهگذاری در مراقبت والدینی ممکن است معقول نباشد، و چهبسا والد در صورتی شانس بیشتری برای انتقال مادهٔ ژنتیکی خود داشته باشد که انرژی سوختوسازی خود را صرف صرفاً تولید هرچه بیشتر فرزند کند تا صرف والدگری. برعکس، در محیطهای پایدارتر که زندهماندن تا بلوغ نسبتاً رایج است، چهبسا والد در صورتی موفقیت بیشتری بیابد که زمان و انرژی بیشتری صرف مراقبت والدینی کند و احتمال تولیدمثل موفق هر فرزند را افزایش دهد. این راهبردهای متفاوت اغلب با صفات کالبدشناختی یا فیزیولوژیک مشخصی همراهاند، برای نمونه گونههای r-گزیده اغلب اندازهٔ بدنی کوچک، رشد سریع و طول عمر کوتاه دارند.
- گلوگاه
- گلوگاه جمعیت را ببینید.
- گلوگاه جمعیت
- نگاه کنید به گلوگاه جمعیت.
- گلوگاه جمعیت
- کاهشی شدید و اغلب ناگهانی در اندازه یک جمعیت زیستی، که اغلب بهدلیل یک رویداد محیطی عمده مانند سیل، آتشسوزی، فوران آتشفشانی، خشکسالی، قحطی یا بیماری رخ میدهد. از آنجا که تنها یک جمعیت کوچک با دامنه باریکتری از تنوع ژنتیکی پس از آن باقی میماند تا ژنها را به نسلهای آینده منتقل کند، چنین رویدادهایی تمایل دارند گوناگونی ژنتیکی را در خزانه ژنی جمعیت کاهش دهند، و اغلب از طریق اثرات بنیانگذار به جمعیتهای جدید و متمایز میانجامند. تنوع تنها زمانی دوباره افزایش مییابد که شارش ژن از جمعیت دیگری رخ دهد، یا بسیار کند در طول زمان همراه با انباشت جهشهای تصادفی.
- گوناگونی ژنتیکی
- تفاوتهای ژنتیکی هم درون و هم میان جمعیتها، گونهها، یا گروههای دیگری از جانداران. اغلب بهصورت تنوع اللهای مختلف در خزانه ژنیهای جمعیتهای مختلف تصور میشود.
- گوناگونی ژنتیکی
- تفاوتهای ژنتیکی هم درون و هم میان جمعیتها، گونهها، یا گروههای دیگری از جانداران. اغلب بهصورت تنوع اللهای مختلف در خزانه ژنیهای جمعیتهای مختلف تصور میشود.
- گونه
- یک واحد بنیادی از ردهبندی زیستی که بهطور سنتی بر اساس مفهوم زیستی گونه بهعنوان مجموع اعضای گروهی از جمعیتهای موجوداتی تفسیر میشود که در شرایط طبیعی با یکدیگر زادآوری میکنند یا بهطور بالقوه میتوانند زادآوری کنند؛[۲] یک رتبه آرایهشناختی بنیادی که نمونههای منفرد به آن نسبت داده میشوند و اغلب اما نه همیشه با تعریف یک گونه زیستی مطابقت دارد؛ و یک واحد بنیادی که برای تفسیر و سنجش تنوع زیستی در زمینههای بومشناختی به کار میرود. مفهوم گونه بهطور شناختهشدهای پیچیده و اغلب تعریف دقیق آن مسئلهساز است؛ تصورات بسیار متفاوتی از آنچه باید از این اصطلاح فهمیده شود در ادبیات علمی تعریف شده است.
- گونه حلقهای
- جمعیتهای بههمپیوستهٔ یک گونهٔ واحد، که هر یک میتواند با جمعیتهای نزدیک و خویشاوند نزدیک دورگهگیری کند، اما برای آن دستکم دو جمعیت «انتهایی» در این رشته وجود دارد که خویشاوندیشان چنان دور است که نمیتوانند با هم دورگهگیری کنند.
- گونه خوشه ژنوتیپی
- گونه نماد
- گونه وحشی (WT)
- فنوتیپ شکل معمول یک جاندار یا گونه آنگونه که در طبیعت رخ میدهد؛ فراوردهی الل استاندارد یا «بهنجار» در یک جایگاه ژنی معین، در برابر آنچه که از یک الل جهشیافته نااستاندارد پدید میآید.
- گونهزایی
- فرایند فرگشتی که طی آن جمعیتها فرگشت مییابند تا به گونههای متمایز تبدیل شوند.
- گونهزایی ایستمیهنی
- گونهزایی بازترکیبی
- گونهزایی بومشناختی
- نوعی گونهزایی که در آن جدایی تولیدمثلی بر اثر برهمکنش افراد یک گونه با محیطشان ایجاد میشود.[۱۸]
- گونهزایی پراجا
- گونهزایی پراجا-ناهمجا
- گونهای از گونهزایی که در آن واگرایی در شرایط پراجایی آغاز میشود اما در شرایط ناهمجایی کامل میگردد.[۸]
- گونهزایی پیرابوم
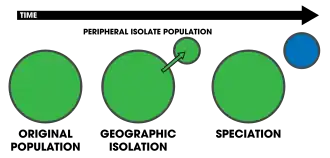
- گونهای از گونهزایی ناهمجا که در آن یک گونه جدید از یک جمعیت کوچک، حاشیهای و جداافتاده شکل میگیرد.[۱۹] گاهی در مقابلِ گونهزایی گریز از مرکز به آن گونهزایی بهسوی مرکز گفته میشود.
- گونهزایی جدایشی
- اصطلاحی در زیستجغرافیا به معنای جدایی جغرافیایی دو جمعیت از یک گونه (مانند گونهزایی ناهمجا).
- گونهزایی جغرافیایی
- گونهزایی در سابقه فسیلی
- گونهزایی که میتوان آن را در موجودات فسیلشده در حال وقوع تشخیص داد.
- گونهزایی دگرجا-همجا
- شیوهای از گونهزایی که در آن واگرایی در ناهمجایی رخ میدهد و با تماس پسین جمعیتها کامل میشود–در عمل گونهای از تثبیت.[۲۰][۸]
- گونهزایی دگرجا-همجوار
- شیوهای از گونهزایی که در آن واگرایی در دگرجایی رخ میدهد و با تماس ثانویه جمعیتها کامل میشود—در عمل گونهای از تثبیت.[۲۱][۸]
- گونهزایی دورگه
- گونهزایی ژنی
- گونهزایی سنگپلهای
- گونهزایی کروموزومی
- گونهزایی کوانتومی
- الگویی کروموزومی از گونهزایی که هنگامی بهسرعت رخ میدهد که یک گونهٔ گیاهی دگرلقاح در حاشیهٔ یک جمعیت بزرگتر جوانه میزند و دستخوش همآمیزی و رانش ژنتیکی نیرومند میشود که به پیدایش گونهای نو میانجامد.[۲۲][۲۳][۲۴] این الگو مشابه گونهزایی پیرابوم ارنست مایر است.[۲۵]
- گونهزایی گریزازمرکز
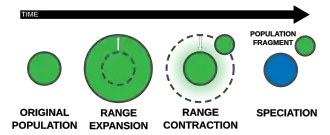
- گونهای از گونهزایی پیرابوم که در آن گونهزایی از طریق جدایی جغرافیایی رخ میدهد، اما جدایی تولیدمثلی به جای جمعیت جداافتادهی پیرامونی، در جمعیت بزرگتر فرگشت مییابد.[۲۶]
- گونهزایی موازی
- گونهزایی ناجغرافیایی
- گونهزایی ناکامل
- گونهزایی ناهمجا
- شیوهای از گونهزایی که در آن فرگشت جدایی تولیدمثلی از جدایی جغرافیایی دو یا چند جمعیت از یک گونهٔ واحد ناشی میشود.[۲۷]
- گونهزایی ناهممیهنی
- گونهزایی نوترکیبی همپلوئید
- گونهزایی نیمهجغرافیایی
- گونهزایی هدایتی
- گونهزایی همجا
- گونهزایی همگام
- گونهای از گونهزایی که در آن بیش از دو گونه بهدلیل پیوندهای بومشناختیشان (مثلاً برهمکنشهای میزبان-انگل) بهطور همزمان گونهزایی میکنند.[۲۸]
- گونهی رمزی
- گونهٔ گریزان
- یک گونه که تنها بهطور موقت محیطها یا زیستگاهها را اشغال میکند (یا به این دلیل که افرادش مکرراً مهاجرت میکنند یا به این دلیل که محیطهایش مکرراً تغییر میکنند) و از این رو در هیچ مکانی برای نسلهای بسیار پایدار نمیماند.[۲]
- گونهٔ میزبانویژه
- گونهٔ نوپدید
- هر جمعیتی که در مرحلهٔ آغازین گونهزایی است.
- گونهٔ همتخمی
- گونهای که نه بهصورت تولیدمثل جنسی بلکه از طریق همانندسازی تولیدمثل میکند.[۲۹] گونههای همتخمی گاهی با تافتههای گونهای بازنمایی میشوند که شامل برخی افراد دیپلوئید و دیگر شکلهای آپومیکتیک هستند—بهویژه گونههای گیاهی که میتوانند از راه آگاموسپرمی تولیدمثل کنند.[۸]
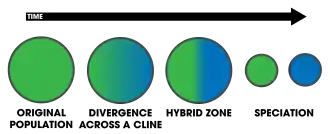
ل
- لقاح بیرونی
- تولیدمثل جنسی میان نژادها یا افراد مختلف، که این توان را دارد که با وارد کردن مادهٔ ژنتیکی نامرتبط به یک جمعیت زادآور، تنوع ژنتیکی را افزایش دهد. هم رویداد تولیدمثلی و هم زادهٔ حاصل از آن ممکن است برونآمیزی (outcross) نامیده شوند و گفته میشود که زاده برونزاد (outbred) است. در تقابل با خویشآمیزی.
م
- مادریرخ
- (درباره یک فرزند) شباهت بیشتر به والد ماده از نظر ژنوتیپی یا فنوتیپی، نسبت به والد نر؛ برگرفته از مادر. در تقابل با پدریرخ.
- متاژنومیک
- مطالعه ماده ژنتیکی که مستقیماً از نمونههای محیطی بازیابی میشود، در تقابل با موجوداتی که در کشتهای آزمایشگاهی پرورش مییابند.
- محدودیتهای زیستی
- مدل بتسون-دوبژانسکی-مولر
- یک مدل فرگشتی از ناسازگاری ژنتیکی که در نتیجه برهمکنشهای اپیستازی منفی میان دو یا چند ژن یا الل با تاریخچههای فرگشتی متفاوت رخ میدهد، که ممکن است هنگام دورگهگیری جمعیتهای متمایز با یکدیگر روبهرو شوند. خود ژنها یا اللهای ناسازگار، که ناسازگاریهای دوبژانسکی-مولر نامیده میشوند، ممکن است نتیجه تصادفی یا جهش خنثی باشند، یا ممکن است سازگاریهای ویژهای باشند که توسط انتخاب طبیعی پیش رانده میشوند. این ناسازگاریها با جلوگیری از آمیزش موفقیتآمیز جمعیتها، میتوانند جدایی تولیدمثلی را تقویت کنند و بدینترتیب احتمال گونهزایی را افزایش دهند.
- مدل جابهجایی قله
- مدل دوبژانسکی-مولر
- نگاه کنید به مدل بتسون-دوبژانسکی-مولر.
- مدل کانهشیرو
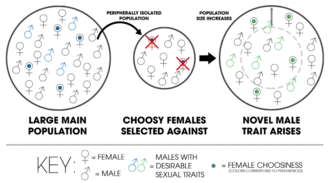
- مدلی از گونهزایی پیرابوم که توسط کنت ی. کانهشیرو توسعه یافت و در آن یک گونه جنسی دچار گلوگاه جمعیت میشود—یعنی هنگامی که تنوع ژنتیکی به دلیل اندازه کوچک جمعیت کاهش مییابد—تبعیض جفتگیری در میان مادهها ممکن است بر اثر کاهش رفتارها یا نمایشهای جفتخواهی نرها دگرگون شود. این امر به گزینش جنسی اجازه میدهد تا صفات جنسی نوینی را در جمعیت تازه پدید آورد.[۳۰]
- مربع پانت
- یک نمودار جدولی که برای پیشبینی ژنوتیپهای ممکنی که میتوانند توسط فرزندان یک آمیزش یا آزمایش پرورشی خاص بهارث برده شوند، با خلاصهکردن همه ترکیبهای گوناگون اللهای مادری با اللهای پدری بهکار میرود. جدول حاصل سپس میتواند برای تعیین احتمالهای اینکه فرزندان دارای یک ژنوتیپ خاص باشند بهکار رود. سودمندی مربعهای پانت به رخنمودهای گسستهای که بر طبق الگوهای ساده مندلی بهارث میرسند محدود است.
- مرز گونهای نیمهتراوا
- این ایده که شارش ژن میتواند میان دو گونه رخ دهد اما برخی اللها در جایگاههای خاص میتوانند مبادله شوند در حالی که برخی دیگر نمیتوانند.[۱۲] این مفهوم اغلب برای توصیف پهنههای دورگه به کار میرود و به آن تراوا نیز گفته شده است.[۱۲]
- مسابقه تسلیحاتی فرگشتی
- سازوکار بازخورد مثبت که میان مجموعههای رقیب از ژنهای همفرگشت، صفات، گونهها یا دیگر آرایهها عمل میکند که در اثر حضور یکدیگر سازگاریهای خاص و ضدسازگاریها را پدید میآورند، که میتوان آن را همانند یک «مسابقه تسلیحاتی» دانست.
- مستعمرهسازی
- گسترش یک جمعیت به یک ناحیهی جغرافیایی جدید.
- مسیر cGAS–STING
- مسئله گونه
- دشواری در تعریف دقیق اینکه یک گونه چیست و در تعیین جایگاه یک موجود در درون یک گونه خاص.[۳۱]
- مشاوره ژنتیک
- فرایند مشاوره با افراد یا خانوادههایی که به ناهنجاری ژنتیکی مبتلا هستند یا در معرض خطر ابتلا به آن قرار دارند، بهمنظور کمک به آنها در درک و سازگاری با پیامدهای فیزیولوژیک، روانشناختی و خانوادگی سهم ژنتیک در بیماری. مشاوره ژنتیک، آزمایش ژنتیک، تبارشناسی ژنتیکی، و اپیدمیولوژی ژنتیکی را در هم میآمیزد.[۳۲]
- مضاعف شدن ژن
- نوعی جهش که بهعنوان هرگونه دوپلیکاسیون از ناحیهای از دیانای که حاوی یک ژن است تعریف میشود. مقایسه کنید با مضاعف شدن کروموزومی.
- مفهوم ریختشناختی گونه
- مفهوم زیستی گونه
- مفهوم گونه
- مفهوم گونه تبارشناختی
- مفهوم گونهی پیوستگی
- مفهوم گونهٔ بازشناسی
- مفهوم گونهٔ بومشناختی
- مفهوم گونهٔ تبارزایشی
- مفهوم گونهٔ فرگشتی
- مقدار معادل کشنده
- میانگین تعداد ژنهای زیانبار مغلوب موجود در حالت ناخالص که توسط عضوی از یک جمعیت موجودات دیپلوئید حمل میشود، ضرب در میانگین احتمال اینکه هر یک از این ژنها در حالت خالص موجب مرگ زودرس شود. برای نمونه، موجودی که هشت الل نیمهکشنده مغلوب حمل میکند، که هر یک تنها ۵۰٪ احتمال مرگ زودرس در حالت خالص ایجاد میکند، گفته میشود بار ژنتیکی معادل چهار «معادل کشنده» را حمل میکند.[۵]
- مقدار میانوالدینی
- میانگین دو مقدار والدینی برای یک صفت کمی در یک فرزند منفرد یا در یک دورگه مشخص.[۵]
- منحنی تولیدمثل
- بازنمایی نموداری رابطهٔ میان شمار افراد در یک مرحلهٔ معین از یک نسل و شمار افراد در همان مرحله در نسلی پیشین.[۱]
- منطقه تنش
- منطقه دورگه موزاییکی
- منطقهای که در آن دو دودمان در حال گونهزایی با توزیعی تکهتکه با هم رخ میدهند–چه از روی شانس، چه استعمار تصادفی، یا برازش پایین دورگهها.[۱۲]
- موجود
- در حال حاضر زنده یا موجود؛ هنوز در حال وجود و نه منقرض. این اصطلاح معمولاً برای اشاره به وضعیت کنونی وجود یک آرایهٔ خاص (مانند یک خانواده، سرده، گونه و غیره) به کار میرود.
- موزاییسم
- حضور دو یا چند جمعیت از سلولها با ژنوتیپهای متفاوت در یک موجود زنده منفرد که از یک تخمک بارورشده واحد رشد یافته است. یک موجود موزاییکی میتواند از انواع بسیاری از پدیدههای ژنتیکی پدید آید، از جمله عدمجدایی کروموزومها، درونهمانندسازی، یا جهش در دودمانهای منفرد سلول بنیادی طی رشد اولیه جنین. موزاییسم شبیه به کیمریسم است اما از آن متمایز است.
- موفقیت تولیدمثلی
- تولید موفق فرزند توسط یک فرد، که اغلب بهصورت شمار فرزندان تولیدشده توسط فرد در هر رویداد تولیدمثلی یا در طول کل عمر فرد، یا بهصورت شمار فرزندان یک فرد که خود تا بلوغ تولیدمثلی زنده میمانند یا در زمانی معین زندهاند، کمیتسنجی میشود.[۱]
- مهاجرت
- میتوز
- در سلولهای یوکاریوتی، بخشی از چرخه سلول که طی آن تقسیم هسته صورت میگیرد و کروموزومهای همانندسازیشده به دو هسته مجزا جدا میشوند. میتوز عموماً پیش از مرحله S اینترفاز رخ میدهد، زمانی که دیانای سلول همانندسازی میشود، و یا همزمان با سیتوکینز رخ میدهد یا پس از آن، زمانی که سیتوپلاسم و غشای سلولی به دو سلول دختر جدید تقسیم میشوند.
- میوز
- نوع تخصصیافتهای از تقسیم سلول که منحصراً در یوکاریوتهای تولیدمثلکننده جنسی رخ میدهد، که طی آن همانندسازی دیانای با دو دور پیاپی تقسیم دنبال میشود تا در نهایت چهار سلول دختر هاپلوئید از نظر ژنتیکی منحصربهفرد تولید شود، که هرکدام نیمی از تعداد کروموزومهای سلول مادر دیپلوئید اصلی را دارند. میوز تنها در سلولهای اندامهای جنسی رخ میدهد و هدف آن تولید گامتهای هاپلوئید مانند اسپرم، تخمکها یا هاگها است، که بعداً طی لقاح با هم آمیخته میشوند. دو تقسیم میوزی، که با نامهای میوز I و میوز II شناخته میشوند، ممکن است شامل رویدادهای گوناگون نوترکیبی ژنی میان کروموزومهای همتا نیز باشند.
ن
- ناباروری
- ناپایایی دورگه
- ناحیهٔ درز
- ناحیهای جغرافیایی که شمار چشمگیری از پهنههای دورگه، پهنههای تماس میان جمعیتها، و گسستهای جغرافیایتباری را نشان میدهد.[۳۳]
- نازایی دورگه
- ناسازگاری دورگه
- ناسازگاری دورگه برونزاد
- ناقل
- فردی که یک الل نهفته برای یک صفت ژنتیکی یا جهش را به ارث برده است، اما این صفت معمولاً در فنوتیپ او بیان یا مشاهده نمیشود. ناقلان معمولاً برای الل نهفته ناجورتخم هستند و بنابراین همچنان میتوانند الل را به فرزندان خود منتقل کنند، که در آنجا فنوتیپ مرتبط ممکن است در صورت ارث بردن نسخهی دیگری از الل توسط فرزند دوباره پدیدار شود. این اصطلاح بهطور رایج در ژنشناسی پزشکی در بافتار یک الل نهفتهی بیماریزا به کار میرود.
- ناماندگاری
- ناهمجایی
- پدیدهای که در آن دو یا چند جمعیت از یک گونهٔ واحد در جدایی جغرافیایی از یکدیگر وجود دارند.
- ناهمزمانی گلدهی
- ناهنجاری ژنتیکی
- هر بیماری، اختلال، یا دیگر مشکل سلامتی که مستقیماً ناشی از یک یا چند ناهنجاری در ژنوم یک جاندار باشد که مادرزادی (در بدو تولد موجود) است و بعداً در زندگی کسب نشده است. علل ممکن است شامل یک جهش در یک یا چند ژن، یا یک ناهنجاری کروموزومی مانند آنیوپلوئیدی یک کروموزوم معین باشد. جهش مسئول ممکن است بهصورت خودبهخودی در حین تکوین جنینی رخ دهد یا ممکن است از یکی یا هر دو والد به ارث برسد، که در این صورت ناهنجاری ژنتیکی بهعنوان یک ناهنجاری ارثی نیز طبقهبندی میشود. هرچند خود ناهنجاری پیش از تولد وجود دارد، بیماری واقعی که موجب میشود ممکن است تا مدتها بعد در زندگی بروز نکند؛ برخی ناهنجاریهای ژنتیکی لزوماً بیماری نهایی را تضمین نمیکنند بلکه صرفاً خطر ابتلای جاندار به آن را افزایش میدهند.
- نجات
- بازگرداندن یک یاخته، بافت یا جاندار معیوب به وضعیت سالم یا بهنجار،[۵] یا بازگشت یا بازیابی یک ژن جهشیافته به کارکرد بهنجارش، بهویژه در زمینهٔ ژنتیک آزمایشی، که در آن گفته میشود آزمایشی (برای نمونه یک دارو، آمیزش، یا انتقال ژن) که به چنین بازگرداندنی میانجامد، فنوتیپ بهنجار را نجات میدهد.
- نرخ گونهزایی
- نزدیکترین نیای مشترک (MRCA)
- نزدیکریختی
- یک حالت صفت نیایی؛ یعنی حالت یا وضعیت یک صفت یا ویژگی خاص (برای مثال یک رخنمود معین) که در نیای مشترک یک تبارشاخه معین وجود دارد. نزدیکریختیها ممکن است توسط برخی یا همه نسلهای درون تبارشاخه بهاشتراک گذاشته شوند یا نشوند. این اصطلاح نسبی است؛ صفتی که در یک تبارشاخه نزدیکریختی محسوب میشود ممکن است در تبارشاخهای دیگر نزدیکریختی محسوب نشود. در مقابلِ جداریختی.
- نژاد اصیل
- نژاد میزبانی
- نسبت Ka/Ks
- نسل
- 1. در هر جاندار معین، یک چرخه تولیدمثلی واحد، یا مرحله میان دو رویداد تولیدمثلی پیاپی، یعنی میان تولیدمثل یک جاندار منفرد و تولیدمثل زادگان حاصل از آن؛ یا مدتزمان واقعی یا میانگین لازم برای تکمیل یک چرخه تولیدمثلی واحد، چه برای یک دودمان معین و چه برای یک جمعیت یا گونه بهطور کلی.
- 2. در یک جمعیت معین، آن دسته از افراد (اغلب اما نه لزوماً همزمان زنده) که با شمار یکسانی از رویدادهای تولیدمثلی که میان آنها و نیا رخ داده است، به یک اندازه از یک نیای مشترک معین فاصله دارند.[۶]
- نفوذ
- نسبت افرادی با یک ژنوتیپ معین که رخنمود مرتبط را بیان میکنند، که معمولاً بهصورت درصد بیان میشود. بهدلیل برهمکنشهای پیچیده بسیاری که بیان ژن را تنظیم میکنند، ممکن است یک الل یکسان در یک فرد رخنمودی قابلمشاهده ایجاد کند اما در فرد دیگر چنین نکند. اگر کمتر از ۱۰۰٪ افراد یک جمعیت که حامل ژنوتیپ مورد نظرند رخنمود مرتبط را نیز بیان کنند، میتوان گفت که هم ژنوتیپ و هم رخنمود نفوذ ناقص نشان میدهند. نفوذ احتمالِ اینکه یک الل به بیان رخنمود مرتبط خود به هر شکلی منجر شود را کمّی میکند، یعنی تا هر اندازهای که یک فرد حامل را از افراد بدون آن الل متمایز سازد. مقایسه کنید با بیانپذیری.
- نقطه داغ جهشی
- نقطه نیاکان همسان
- نماد
- نمودار شجرهنامه
- نواده
- نوترکیبی نامتقابل
- نگاه کنید به اختلاط نابرابر.
- نوترکیبی ناهمتا
- نوسازگاری
- نوسازی
- هر صفت یا صفت فنوتیپی که در حال حاضر در معرض انتخاب طبیعی است، خواه خاستگاه آن را بتوان به فرایندهای گزینشی (سازگاری) نسبت داد یا به فرایندهایی جز گزینش یا گزینش برای کارکردی متفاوت از کارکرد کنونی (نوسازگاری).[۵]
- نوعدوستی
- نولیزایگوت
- نولیزومی
- وضعیت یک سلول یا جاندار که فاقد تمام نسخههای یک کروموزوم مشخص است که برای سطح پلوئیدی آن عادی هستند؛ مثلاً در یک جاندار دیپلوئید، فاقد هر دو عضو جفت عادی. نولیزومی اغلب در مراحل آغازین رشد کشنده است.
- نوینآرایهشناسی
- مطالعهٔ آرایههای موجود، یعنی آنهایی که اعضایشان هنوز در زمان حاضر زندهاند، در تقابل با دیرینشناسی.
- نهفتگی
- رابطهای میان اللها یک ژن که در آن یک الل اثری بر فنوتیپ پدید میآورد که با سهم الل دیگری در همان جایگاه مغلوب یا «پوشانده» میشود؛ گفته میشود که الل نخست و صفت فنوتیپی همراه آن نهفته است، و الل دوم و صفت همراه آن بارز است. اغلب، اللهای نهفته رمزگذار پروتئینهای ناکارآمد یا معیوباند. همانند بارز بودن، نهفتگی نیز ویژگی ذاتی هیچ الل یا فنوتیپی نیست، بلکه صرفاً رابطهٔ آن را با یک یا چند الل یا فنوتیپ دیگر توصیف میکند. در نشانهنویسی ژنتیک، اللهای نهفته اغلب با حرف کوچک نمایش داده میشوند (برای نمونه «a»، در برابر «A»ِ بارز).
- نیا
- نیاسانی
- دگرگونی یک ساختار زیستی که در آن یک صفت نیایی ناگهان پس از آنکه در نسلهای پیشین از طریق تغییر فرگشتی از دست رفته بود، دوباره پدیدار میشود.[۳۴] نیاسانی میتواند به شیوههای گوناگونی رخ دهد، از جمله از طریق بازبیان ژنهای نهفته برای فنوتیپهای نیایی در نتیجهٔ جهش، یا با کوتاه یا طولانی شدن زمان اختصاصیافته به اونتوژنز یک صفت مشخص در طول رشد.
- نیای مشترک
- جاندار یا آرایهای (مثلاً یک گونه) که فرض میشود نیای مستقیم دو یا چند جاندار یا آرایهای است که در نقطهای متأخرتر از زمان فرگشتی موجودند. مفهوم تبار مشترک برای مطالعهی فرگشت، تبارزایی و تبارشاخهشناسی بنیادی است؛ برای نمونه، همهی تبارشاخهها بنا به تعریف در یک نیای مشترک ریشه دارند. همچنین ببینید نزدیکترین نیای مشترک.
- نیمگونه
- یکی از چند گروه از جمعیتهایی که بهطور جزئی اما نه کاملاً از طریق سازوکارهای جداکننده زیستی از یکدیگر جدایی تولیدمثلی دارند،[۲] و بنابراین نه بهآسانی میتوان آنها را متعلق به یک گونه واحد دانست و نه به گونههای جداگانه. خود آرایه گونه مفهومی بهخوبی تعریفشده نیست.
و
- واحد طبقهبندی عملیاتی (OTU)
- واحد گزینش
- واحد نقشه (m.u.)
- نگاه کنید به سانتیمورگان.
- وارونگی پیراسانترومری
- نوعی وارونگی کروموزومی که در آن قطعه وارونشده شامل سانترومر کروموزوم نمیشود. در مقابلِ وارونگی فراسانترومری.
- وارونگی فراسانترومری
- نوعی وارونگی کروموزومی که در آن قطعه وارونشده شامل سانترومر کروموزوم میشود. در مقابلِ وارونگی پیراسانترومری.
- واگرایش سازشی
- واگرایی فرگشتی همزمان یا نزدیک به همزمان (فرگشت واگرا) چندین عضو از یک دودمان تبارزاییی واحد به شکلهای گوناگون با سازگاریهای متفاوت، بهویژه تنوع در کاربرد منابع یا زیستگاهها.[۲]
- واگرایی-با-جریان-ژنی
- وراثت
- ذخیره، انتقال و بیان اطلاعات ژنتیکی در جانداران زیستی،[۶] آنگونه که با انتقال صفتهای فنوتیپی از والدین به فرزندانشان، چه از راه تولیدمثل جنسی و چه تولیدمثل غیرجنسی، آشکار میشود. گفته میشود یاختهها یا جاندارانِ فرزند اطلاعات ژنتیکی والدین خود را به ارث میبرند.
- وراثت
- نگاه کنید به وراثت.
- وراثت ذرهای
- یکی از ایدههای بنیادین قوانین مندل، که میگوید صفات رخنمودی از طریق انتقال «ذرات گسسته» از نسلی به نسل دیگر بهارث میرسند یا میتوانند برسند. این ذرات ممکن است در هر نسلی اثرات قابلتشخیص نداشته باشند اما با این حال توانایی خود را برای بیانشدن در نسلهای بعدی حفظ میکنند.
- وراثتپذیری
- 1. توانایی به ارث برده شدن.
- 2. آمارهای که در ژنتیک کمی به کار میرود و نسبتی از گوناگونی درون یک صفت فنوتیپی معین را که ناشی از گوناگونی ژنتیکی میان افراد در یک جمعیت خاص است برآورد میکند. وراثتپذیری با مقایسهٔ فنوتیپهای فردیِ افراد خویشاوند نزدیک در جمعیت برآورد میشود.
ه
- هاپلوتیپ
- مجموعهای از اللها در یک جاندار که با هم از یک والد واحد به ارث رسیدهاند.
- هاپلودیپلوئیدی
- یک سامانهٔ تعیین جنسیت که در آن جنسیت یک جاندار با تعداد دستههای کروموزومهایی که دارد تعیین میشود: فرزندانی که از تخمکهای بارورشده پدید میآیند دیپلوئید و مادهاند، در حالی که فرزندانی که از تخمکهای بارورنشده پدید میآیند هاپلوئید و نرند و نیمی از تعداد کروموزومهای مادهها را دارند. هاپلودیپلوئیدی در همهٔ اعضای راستهٔ حشرات پردهبالان و چندین آرایهٔ حشرهٔ دیگر مشترک است.
- هاپلوناکافی
- هاپلوئید
- (دربارهٔ یک یاخته یا جاندار) داشتن یک نسخه از هر کروموزوم، بهگونهای که هر نسخه بخشی از یک جفت نباشد. در تقابل با دیپلوئید و پلیپلوئید.
- هتروزیس
- بهبود یا افزایش عملکرد یا کیفیت هر صفت زیستی در یک فرزند دورگه، نسبت به همان صفت در والدین ژنتیکی متمایز آن. اگر یک یا چند صفت از والدین بهطور محسوسی در فرزند در نتیجهٔ آمیختن سهمهای ژنتیکی والدین تقویت شود، گفته میشود فرزند هتروتیک است.
- هتروزیگوت
- در یک جاندار دیپلوئید، داشتن دو الل متفاوت در یک جایگاه ژنی مشخص. در نمادگذاری اختصاری ژنتیک، ژنوتیپهای هتروزیگوت با یک جفت حرف یا نماد ناهمسان نمایش داده میشوند، اغلب یک حرف بزرگ (نشاندهندهٔ یک الل بارز) و یک حرف کوچک (نشاندهندهٔ یک الل نهفته)، مانند «Aa» یا «Bb». در تقابل با تخمیدگی.
- هدفشناسی
- همالل
- یک الل جهشیافته که جهش متفاوتی در همان جایگاهِ الل دیگری دارد. نوترکیبی درونژنی میان هماللها نمیتواند یک سیسترون کارا تولید کند.[۵]
- همبارزی
- همبرتری پیوندی
- پدیدهای که در آن پیوستگی یک جایگاه خنثی به یک چندریختی که بهصورت گزینشی حفظ میشود، سبب افزایش دگرتخمی جایگاه خنثی میشود.[۵]
- همجا
- همجایی موزاییکی
- موردی از همجایی که در آن دو جمعیت با همپوشانی در توزیع جغرافیایی، تخصصیافتگی زیستگاهی نشان میدهند.[۱۲]
- همجداریختی
- همخون
- (دربارهی دو یا چند فرد) از نظر ژنتیکی نزدیکخویشاوند؛ دارای یک نیای مشترک اخیر (معمولاً نه بیش از سه یا چهار نسل دور). اثر آمیزش همخونی، که همچنین با نام خویشآمیزی شناخته میشود، افزایش احتمال این است که فرزندان در هر جفت معین از جایگاههای ژنتیکی جورتخم باشند.[۶]
- همساختشناسی
- شباهت میان یک جفت ساختار، صفت یا توالی دیانای در آرایههای مختلف که ناشی از تبار مشترک است.
- همساختگرایی
- همسانهسازی
- فرایند تولید، چه بهطور طبیعی و چه مصنوعی، جانداران یا سلولهای منفردی که از نظر ژنتیکی با یکدیگر همساناند. همسانهها نتیجهی همهی اشکال تولیدمثل غیرجنسی هستند و سلولهایی که دستخوش میتوز میشوند، سلولهای دختری تولید میکنند که همسانهی سلول مادر و یکدیگرند. همسانهسازی ممکن است به روشهای زیستفناوری نیز اشاره داشته باشد که بهطور مصنوعی نسخههایی از جانداران یا سلولها، یا در همتاسازی مولکولی، نسخههایی از قطعات دیانای یا دیگر مولکولها ایجاد میکنند.
- همسانی بر اثر تبار (IBD)
- (دربارهٔ یک ژن یا دگره) قابل ردیابی به عقب، در طول هر تعداد دلخواه از نسلها بدون جهش، تا یک نیای مشترک از گروه جانداران بازماندهٔ حامل آن ژن یا دگره.[۲] گفته میشود ژن یا دگرهٔ موجود در گروهی از جانداران بازمانده، با ژن یا دگرهای در نیای مشترکِ آن گروه «همسان بر اثر تبار» است، اگر هر دو توالی همسان باشند؛ که نشان میدهد توالی بدون تغییر از نیای مشترک به بازماندگانش منتقل شده است.
- همسانی توالی
- یکی از مجموعهای از ژنها (یا بهطور کلیتر هر توالی DNA که همسانی توالی نشان میدهد) که در ژنومهای مختلف وجود دارند اما از یک توالی نیایی مشترک تبار گرفتهاند، یعنی مستقیماً از طریق تبار عمودی از یک ژن یا توالی واحد در نزدیکترین نیای مشترک آن ژنومها به یکدیگر مرتبطاند. چنین ژنها یا توالیهایی همسان (اورتولوگ) نامیده میشوند. همسانها را میتوان بر پایهٔ شباهت توالیهایشان به هم مرتبط دانست؛ هرچند ممکن است بهطور مستقل در ژنومهای جداگانه از راه جهش و گزینش طبیعی فرگشت یافته باشند، فرآوردههایشان همچنان ممکن است ساختار، کارکرد یا سطوح بیان مشابهی را در گونهها و جمعیتها حفظ کنند. شناسایی همسانها در استنباط روابط تبارزایی میان جانداران اهمیت یافته است. در تقابل با همسانی توالی.
- همفرگشتی
- فرایندی که از طریق آن دو یا چند جمعیت، گونه، یا دیگر گروههای جانداران متمایز، یا دو یا چند صفت متمایز درون یک گونه، بهطور متقابل بر فرگشت یکدیگر از طریق انتخاب طبیعی اثر میگذارند. هر طرف در یک رابطهی همفرگشتی فشارهای گزینشی بر دیگری وارد میکند که به فرگشت صفات جداگانه در هر طرف میانجامد.
- همکاری
- همگونه
- متعلق به همان گونه.
- همنزدیکریختی
- همنهش گستردهٔ فرگشتی
- هموزیگوت
- در یک جاندار دیپلوئید، داشتن دو الل یکسان در یک جایگاه ژنی مشخص. در نمادگذاری اختصاری ژنتیک، ژنوتیپهای هموزیگوت با یک جفت حرف یا نماد همسان نمایش داده میشوند، مانند «AA» یا «aa». در تقابل با تخمیدگی.
- هنجار واکنش
- نگاه کنید به هنجار واکنش.
- هنجار واکنش
- الگو یا مجموعهٔ بیانهای فنوتیپی یک ژنوتیپ معین در گسترهٔ گوناگونی از شرایط محیطی متفاوت.[۲]
- هیپومورف
- یک الل جهشیافته که بیان زیرنرمالی از فنوتیپ طبیعی ژن را امکانپذیر میکند، برای نمونه با رمزگذاری یک آنزیم ناپایدار که بیشازحد سریع تجزیه میشود تا بهطور کامل کارکرد خود را انجام دهد اما با این حال در ظرفیتی محدود کارا است و به مقادیر کافی برای پیشروی کند یا کمسطح واکنش خود تولید میشود.[۵]
ی
- یوپلوئیدی
- وضعیتی که در آن یک یاخته یا اندامگان تعداد غیرعادی از مجموعههای کامل کروموزوم دارد، که احتمالاً کروموزومهای جنسی را شامل نمیشود. یوپلوئیدی با آنیوپلوئیدی تفاوت دارد، که در آن یک یاخته یا اندامگان تعداد غیرعادی از یک یا چند کروموزوم منفرد خاص دارد.
جستارهای وابسته
- چهارچوب نوشتارهای فرگشت
- فهرست نوشتارهای زیستشناسی تکاملی
- واژهنامه زیستشناسی یاختهای و مولکولی
- واژهنامه زیستشناسی یاختهای و مولکولی (بخش نخست)
- واژهنامه زیستشناسی یاختهای و مولکولی (بخش دوم)
منابع
- 1 2 3 4 5 6 7 8 9 10 11 12 13 14 15 16 Lincoln, Roger J. (1982). A Dictionary of Ecology, Evolution, and Systematics. New York: Cambridge University Press. ISBN 9780521239578.
- 1 2 3 4 5 6 7 8 9 10 11 12 13 14 15 16 17 18 19 20 21 22 23 24 25 26 27 Futuyma, Douglas J. (1986). Evolutionary biology (2nd ed.). Sunderland, Mass.: Sinauer Associates, Inc. pp. 550–556. ISBN 0878931880. Retrieved 15 January 2021.
- 1 2 3 4 5 6 Vaux, Felix; Trewick, Steven A.; Morgan-Richards, Mary (2016). "Lineages, splits and divergence challenge whether the terms anagenesis and cladogenesis are necessary". Biological Journal of the Linnean Society. 117 (2): 165–76. doi:10.1111/bij.12665.
- ↑ Childs, G.; Maxson, R.; Cohn, R. H.; Kedes, L. (1981). "Orphons: Dispersed genetic elements derived from tandem repetitive genes of eucaryotes". Cell. 23 (3): 651–663. doi:10.1016/0092-8674(81)90428-1. PMID 6784929. S2CID 44633130.
- 1 2 3 4 5 6 7 8 9 10 11 12 13 14 15 16 17 18 King, Robert C.; Stansfield, William D.; Mulligan, Pamela K. (2006). A Dictionary of Genetics (7th ed.). Oxford: Oxford University Press. ISBN 978-0-19-530762-7.
- 1 2 3 4 5 6 7 Rieger, Rigomar (1991). Glossary of Genetics: Classical and Molecular (5th ed.). Berlin: Springer-Verlag. ISBN 3540520546.
- ↑ Waters JM, Fraser CI, Hewitt GM (2013). "Founder takes all: density-dependent processes structure biodiversity". Trends in Ecology & Evolution. 28 (2): 78–85. Bibcode:2013TEcoE..28...78W. doi:10.1016/j.tree.2012.08.024. PMID 23000431.
- 1 2 3 4 5 6 Jerry A. Coyne; H. Allen Orr (2004), Speciation, Sinauer Associates, pp. 1–545, ISBN 978-0-87893-091-3
- ↑ Hvala, John A.; Wood, Troy E. (2012). "Speciation: Introduction". Encyclopedia of Life Sciences. doi:10.1002/9780470015902.a0001709.pub3. ISBN 978-0470016176.
- ↑ M. V. Lomolino & J. H. Brown (1998), Biography (2 ed.), Sinauer Associates, Sunderland, MA., pp. 3, ISBN 978-0-87893-073-9
- ↑ Lewin, Benjamin (2003). Genes VIII. Upper Saddle River, NJ: Pearson Prentice Hall. ISBN 0-13-143981-2.
- 1 2 3 4 5 6 Richard G. Harrison (2012), "The Language of Speciation", Evolution, 66 (12): 3643–3657, Bibcode:2012Evolu..66.3643H, doi:10.1111/j.1558-5646.2012.01785.x, PMID 23206125, S2CID 31893065
- ↑ B. B. Fitzpatrick, J. A. Fordyce, & S. Gavrilets (2009), "Pattern, process and geographic modes of speciation", Journal of Evolutionary Biology, 22 (11): 2342–2347, doi:10.1111/j.1420-9101.2009.01833.x, PMID 19732257, S2CID 941124
{{یادکرد}}: نگهداری یادکرد:نامهای متعدد:فهرست نویسندگان (رده) - ↑ B. M. Fitzpatrick; A. A. Fordyce; S. Gavrilets (2008), "What, if anything, is sympatric speciation?", Journal of Evolutionary Biology, 21 (6): 1452–1459, doi:10.1111/j.1420-9101.2008.01611.x, PMID 18823452, S2CID 8721116
- ↑ M. V. Lomolino & J. H. Brown (1998), Biography (2 ed.), Sinauer Associates, Sunderland, MA., pp. 352–357, ISBN 978-0-87893-073-9
- ↑ Owen, Elizabeth; Daintith, Eve, eds. (2004). The Facts on File Dictionary of Evolutionary Biology. New York: Market House Books Ltd. ISBN 0-8160-4924-6.
- ↑ Turelli, M; Orr, H.A. (May 1995). "The Dominance Theory of Haldane's Rule". Genetics. 140 (1): 389–402. doi:10.1093/genetics/140.1.389. PMC 1206564. PMID 7635302.
- ↑ Howard D. Rundle and Patrik Nosil (2005), "Ecological Speciation", Ecology Letters, 8 (3): 336–352, Bibcode:2005EcolL...8..336R, doi:10.1111/j.1461-0248.2004.00715.x
- ↑ Michael Turelli, Nicholas H. Barton, and Jerry A. Coyne (2001), "Theory and speciation", Trends in Ecology & Evolution, 16 (7): 330–343, doi:10.1016/s0169-5347(01)02177-2, PMID 11403865
{{یادکرد}}: نگهداری یادکرد:نامهای متعدد:فهرست نویسندگان (رده) - ↑ Guy L. Bush (1994), "Sympatric speciation in animals: new wine in old bottles", Trends in Ecology & Evolution, 9 (8): 285–288, Bibcode:1994TEcoE...9..285B, doi:10.1016/0169-5347(94)90031-0, PMID 21236856
- ↑ Guy L. Bush (1994), "Sympatric speciation in animals: new wine in old bottles", Trends in Ecology & Evolution, 9 (8): 285–288, Bibcode:1994TEcoE...9..285B, doi:10.1016/0169-5347(94)90031-0, PMID 21236856
- ↑ Verne Grant (1971), Plant Speciation, New York: Columbia University Press, p. 432, ISBN 978-0231083263
- ↑ Douglas J. Futuyma (1989), "Speciational trends and the role of species in macroevolution", The American Naturalist, 134 (2): 318–321, Bibcode:1989ANat..134..318F, doi:10.1086/284983, S2CID 84541831
- ↑ Loren H. Rieseberg (2001), "Chromosomal rearrangements and speciation", Trends in Ecology & Evolution, 16 (7): 351–358, doi:10.1016/s0169-5347(01)02187-5, PMID 11403867
- ↑ L. D. Gottlieb (2003), "Rethinking classic examples of recent speciation in plants", New Phytologist, 161: 71–82, doi:10.1046/j.1469-8137.2003.00922.x
- ↑ Sergey Gavrilets; et al. (2000), "Patterns of Parapatric Speciation", Evolution, 54 (4): 1126–1134, doi:10.1554/0014-3820(2000)054[1126:pops]2.0.co;2, PMID 11005282, S2CID 198153997
- ↑ Howard, Daniel J. (2003). "Speciation: Allopatric". Encyclopedia of Life Sciences. doi:10.1038/npg.els.0001748. ISBN 978-0470016176.
- ↑ Page, Roderick DM. (2006). "Cospeciation". Encyclopedia of Life Sciences. doi:10.1038/npg.els.0004124. ISBN 978-0470016176.
- ↑ Oxford Reference (2008), agamospecies, Oxford University Press
- ↑ Anders Ödeen & Ann-Britt Florin (2002), "Sexual selection and peripatric speciation: the Kaneshiro model revisited", Journal of Evolutionary Biology, 15 (2): 301–306, doi:10.1046/j.1420-9101.2002.00378.x, S2CID 82095639
- ↑ William P. Hanage (2013), "Fuzzy species revisited", BMC Biology, 11 (41) 41, doi:10.1186/1741-7007-11-41, PMC 3626887, PMID 23587266
- ↑ Resta R, Biesecker BB, Bennett RL, Blum S, Hahn SE, Strecker MN, Williams JL (April 2006). "A new definition of Genetic Counseling: National Society of Genetic Counselors' Task Force report". Journal of Genetic Counseling. 15 (2): 77–83. doi:10.1007/s10897-005-9014-3. PMID 16761103.
- ↑ Luciano Nicolas Naka, Catherine L. Bechtoldt, L. Magalli Pinto Henriques, and Robb T. Brumfield (2012), "The Role of Physical Barriers in the Location of Avian Suture Zones in the Guiana Shield, Northern Amazonia", The American Naturalist, 179 (4): E115–E132, Bibcode:2012ANat..179E.115N, doi:10.1086/664627, PMID 22437185, S2CID 22939903
{{یادکرد}}: نگهداری یادکرد:نامهای متعدد:فهرست نویسندگان (رده) - ↑ Brian K. Hall (1984), "Developmental mechanisms underlying the atavisms", Biological Reviews, 59 (1): 89–124, doi:10.1111/j.1469-185x.1984.tb00402.x, PMID 6367843, S2CID 29258934
زیستشناسی فرگشتی | ||
|---|---|---|
| ||
| فرگشت |  | |
| ژنتیک جمعیت | ||
| تکوین |
| |
| آرایه |
| |
| عضو |
| |
| فرایند | ||
| تمپوها و مدها | ||
| گونهزایی | ||
| تاریخچه اندیشه فرگشتی |
| |
| فلسفه | ||
| جستارهای وابسته | ||
| ||


| |
| مفهومهای پایهای |
|
| دامنههای جغرافیایی | |
| جدایی تولیدمثلی | |
| دورگه |
|
| گونهزایی در آرایهها |
|
| |

ردهها:
- گونهزایی
- زیستشناسی فرگشتی
- واژهنامههای زیستشناسی