گروه تاج
| بخشی از مجموعه مقالههای |
| زیستشناسی فرگشتی |
|---|
 |
|
درگاه.ویکیپروژه |
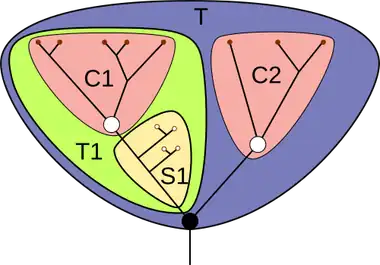
در تبارشناسی، گروه تاج (Crown group) یا کلاد تاج (Crown clade)، مجموعهای از گونهها است که از نمایندگان زنده آن مجموعه، نزدیکترین نیای مشترک آنها و همه نوادگانِ آن نیای مشترک تشکیل شده است. بنابراین، این مفهوم راهی برای تعریف یک کلاد است؛ یعنی گروهی که شامل یک گونه و تمام فرزندان و نوادگان (چه زنده و چه منقرضشده) آن میشود. به عنوان مثال، پرندگان (Aves) را میتوان به عنوان یک گروه تاج تعریف کرد که شامل نزدیکترین نیای مشترک همه پرندگان امروزی و تمام نوادگان زنده یا منقرضشده آن است.
این مفهوم توسط ویلی هنیگ (پایهگذار ردهبندی تبارشناختی) ابداع شد. او از این روش در کتاب خود با نام «تاریخچه تبارزایی حشرات» برای طبقهبندی موجودات زنده در مقایسه با خویشاوندان منقرضشدهشان استفاده کرد.[۱] اصطلاحات گروه «تاج» و «ساقه» نیز در سال ۱۹۷۹ توسط آر. پی. اس. جفریز ابداع شد.[۲] اگرچه این اصطلاح در دهه ۱۹۷۰ شکل گرفت، اما تا سال ۲۰۰۰ که توسط گراهام باد و سورن جنسن دوباره مطرح شد، استفاده از آن چندان رایج نبود.[۳]
محتوای گروه تاج
برای اینکه یک گونه در یک گروه تاج قرار بگیرد، نیازی نیست که حتماً نوادگان زندهای داشته باشد. شاخههای جانبیِ منقرضشده در درخت خانواده (شجرهنامه) که از نزدیکترین نیای مشترک اعضای زنده نشأت گرفتهاند، همچنان بخشی از گروه تاج محسوب میشوند. به عنوان مثال، اگر پرندگانِ تاج (یعنی همه پرندگان زنده و بقیه شجرهنامه آنها تا رسیدن به نزدیکترین نیای مشترکشان) را در نظر بگیریم، شاخههای جانبی منقرضشدهای مانند دودو یا پنگوئن بزرگ همچنان از نوادگان نزدیکترین نیای مشترک همه پرندگان زنده هستند و به همین دلیل درون گروه تاج پرندگان قرار میگیرند.[۴] یک کلادوگرام (نمودار تبارشناسی) بسیار سادهسازیشده برای پرندگان در زیر نشان داده شده است:[۵]
| پرندهبالان (Avialae) |
| ||||||||||||
در این نمودار، کلادی که با نام "Aves" (پرندگان) مشخص شده، همان گروه تاج پرندگان است: این گروه شامل نزدیکترین نیای مشترک همه پرندگان زنده و نوادگان آن (چه زنده باشند و چه منقرضشده) میشود. اگرچه آرکئوپتریکس و دیگر گروههای منقرضشده در نمودار بالا اغلب به عنوان پرنده (یعنی اعضای کلاد آویالای) در نظر گرفته میشوند، اما در گروه تاج قرار نمیگیرند؛ زیرا آنها خارج از کلاد Aves قرار دارند و از اجداد قدیمیتری سرچشمه گرفتهاند.
در یک تعریف جایگزین، برای ایجاد یک گروه تاج نیازی نیست که حتماً اعضای زندهای وجود داشته باشند، بلکه تنها کافی است که این گروه حاصل یک «رویداد مهم شاخهزایی (کلادوژنز)» باشد.[۶] با این حال، مبنای اصلی این مقاله همان تعریف اول است.
گاهی اوقات برای متمایز کردن این گروه از تعریف سنتیِ آن، از پیشوند «تاج-» استفاده میشود. هم پرندگان و هم پستانداران به طور سنتی بر اساس ویژگیهای ظاهری و صفاتشان تعریف شدهاند[۷][۸] و در طبقهبندی سنتی شامل اعضای فسیلی هستند که پیش از آخرین نیای مشترکِ گروههای زنده میزیستهاند؛ یا مانند پستانداری به نام هالداندون (Haldanodon)[۹]، با وجود اینکه در دورههای بعد زندگی میکردهاند، از آن نیای مشترک نشأت نگرفتهاند. بنابراین، گروه "تاج-پرندگان" (Crown-Aves) و "تاج-پستانداران" (Crown-Mammalia) از نظر محتوا با کاربرد سنتی کلمات پرندگان و پستانداران تفاوت اندکی دارند. این موضوع باعث ایجاد برخی سردرگمیها در مقالات علمی شده است.[۱۰][۱۱]
سایر گروهها بر اساس مفهوم گروه تاج
ایده کلادیستیک (شاخهبندی) مبنی بر استفاده صرف از توپولوژی (ساختار) درخت فیلوژنتیک برای تعریف گروهها، ایجاب میکند که برای تعریف دقیق گروههای فسیلی که معمولاً مورد بحث قرار میگیرند، تعاریف دیگری غیر از گروههای تاج نیز وجود داشته باشد. بنابراین، مجموعهای از پیشوندها برای توصیف شاخههای مختلف درخت تبارزایی در مقایسه با موجودات زنده امروزی تعریف شدهاند.[۱۲]
گروه کل یا همهگروه (Pan-group)
یک همهگروه (Pan-group) یا گروه کل (Total group)، شامل گروه تاج و تمام جاندارانی است که نسبت به سایر جاندارانِ زنده، خویشاوندی نزدیکتری با آن گروه تاج دارند. اگر بخواهیم آن را به یک درخت تشبیه کنیم، این گروه شامل گروه تاج و تمام شاخههایی است که به عقب برمیگردند تا به نقطه انشعاب (جدایی) از نزدیکترین شاخهای که دارای اعضای زنده است برسند (اما خود آن نقطه انشعاب را شامل نمیشود). بنابراین، همهگروهِ پرندگان (Pan-Aves) شامل پرندگان زنده و تمام جانداران (فسیلی) است که خویشاوندی نزدیکتری به پرندگان دارند تا به تمساحسانان (که نزدیکترین خویشاوندان زنده آنها هستند). خط تبارزایی که از پرندگان (Aves) به عقب برمیگردد تا جایی که با خط تبارزایی تمساحسانان ادغام میشود، به همراه تمام شاخههای جانبی آن، همهگروه پرندگان را تشکیل میدهد. بنابراین، علاوه بر پرندگان اولیه خارج از گروه تاج مانند آرکئوپتریکس، هسپرورنیس (Hesperornis) و مرغ کنفوسیوس (Confuciusornis)، همهگروه پرندگان شامل تمام دایناسورها و پتروسورها (خزندگان بالدار) و همچنین مجموعهای از حیوانات غیرتمساحی مانند ماراسوچوس (Marasuchus) نیز میشود.
همهگروهِ پستانداران (Pan-Mammalia) شامل تمام پستانداران و اجداد فسیلی آنهاست که به عقب و تا نقطه انشعاب تبارزایی از سایر آبپردهداران (یعنی خزندهچهرگان یا Sauropsida) برمیگردد. بنابراین، همهگروه پستانداران نامی جایگزین برای همکمانان (Synapsida) است؛ درست به همان شکلی که همهگروه پرندگان (Pan-Aves) که پیشتر به آن اشاره شد، مترادف با پرندهخزندگان (Avemetatarsalia) است.
گروههای ساقه (Stem groups)
یک گروه ساقه مجموعهای پیراتبار (پارافیلتیک) است که از اعضای یک همهگروه یا گروه کل (که در بالا توضیح داده شد)، منهای خود گروه تاج (و در نتیجه منهای تمام اعضای زنده همهگروه) تشکیل میشود. این کار باعث میشود که تنها خویشاوندان اولیه گروههای تاج باقی بمانند؛ یعنی در امتداد خط تبارزایی به عقب برمیگردیم تا به آخرین نیای مشترک گروه تاج و نزدیکترین خویشاوندان زنده آنها برسیم (اما خود این نیا را شامل نمیشود). بر اساس این تعریف، نتیجه میگیریم که تمام اعضای یک گروه ساقه، منقرض شدهاند. «گروه ساقه» پرکاربردترین و مهمترین مفهومی است که با گروههای تاج ارتباط دارد، زیرا ابزاری برای عینیت بخشیدن و نامگذاری مجموعههای پیراتبار از فسیلهایی فراهم میکند که در غیر این صورت در سیستماتیکِ (طبقهبندی) مبتنی بر موجودات زنده نمیگنجیدند.
اگرچه این مفهوم اغلب به جفریز (۱۹۷۹) نسبت داده میشود، اما ویلمن (۲۰۰۳)[۱۳] ریشه مفهوم گروه ساقه را به اوتنیو آبل (۱۹۱۴)، متخصص سیستماتیک اتریشی، ردیابی کرد؛[۱۴] همچنین این مفهوم در زبان انگلیسی از سال ۱۹۳۳ توسط ای. اس. رومر مورد بحث قرار گرفت و نمودار آن رسم شد.[۱۵]
از سوی دیگر، اصطلاح «گروه ساقه» گاهی به معنای محدودتری استفاده میشود تا هر عضوی از آرایههای سنتی را که خارج از گروه تاج قرار میگیرد، پوشش دهد؛ مانند اولین سگدندانها (Cynodonts) در اواخر دوره تریاس که اولین پستانداران ساقه محسوب میشوند. همکمانان دوره پرمین مانند دایمترودون یا آنتئوسور (Anteosaurus) در معنای گستردهتر، پستانداران ساقه هستند، اما در معنای محدودتر در این دسته قرار نمیگیرند.[۱۶]
غالباً یک گروه (منقرضشده) به عنوان مجموعهای از اعضای مرتبط به هم شناسایی میشود. اما ممکن است بعداً مشخص شود که گروههای (زنده) دیگری در واقع از درون همین گروه پدید آمدهاند، که این امر آنها را به یک گروه ساقه تبدیل میکند. از نظر کلادیستیک (شاخهبندی)، گروههای جدید باید به این مجموعه اضافه شوند، زیرا گروههای پیراتبار (پارافیلتیک) طبیعی نیستند. در هر صورت، گروههای ساقهای که دارای نوادگان زنده هستند نباید به عنوان یک گروه منسجم و یکپارچه در نظر گرفته شوند، بلکه درخت آنها باید بیشتر بررسی شود تا تبارزایی دوشاخهایِ کامل آنها مشخص گردد.
نمونههایی از گروههای ساقه (در معنای گستردهتر)
پرندگان ساقه (Stem birds) شاید شناختهشدهترین مثال برای یک گروه ساقه باشند، زیرا تبارزایی (شجرهنامه تکاملی) این گروه نسبتاً به خوبی شناخته شده است. کلادوگرام زیر که بر اساس کار بنتون (۲۰۰۵)[۸] رسم شده، این مفهوم را نشان میدهد (علامت † نشاندهنده آرایههای منقرضشده است):
پرندگانِ گروه ساقه
پرندگانِ گروه تاج |
گروه تاج در اینجا پرندگان (Aves) است؛ یعنی تمام خطوط تکاملی پرندگان امروزی تا رسیدن به آخرین نیای مشترکشان. نزدیکترین خویشاوندان زنده پرندگان، تمساحسانان هستند. اگر خط تبارزایی منتهی به پرندگان را به سمت چپ دنبال کنیم، خودِ این خط و تمام شاخههای جانبی آن به پرندگان ساقه تعلق دارند، تا جایی که این خط با خط تبارزایی تمساحسانان ادغام شود. علاوه بر پرندگان اولیه که خارج از گروه تاج هستند (مانند آرکئوپتریکس، هسپرورنیس و مرغ کنفوسیوس)، گروه ساقه پرندگان شامل دایناسورهای غیرپرنده و پتروسورها نیز میشود. آخرین نیای مشترک پرندگان و تمساحسانان—یعنی اولین شاهخزنده (آرکوسور) در گروه تاج—نه پرنده بود و نه تمساح، و هیچیک از ویژگیهای منحصر به فرد این دو گروه را نیز نداشت. با تکامل گروه ساقه پرندگان، ویژگیهای متمایز آنها مانند پر و استخوانهای توخالی پدیدار شدند. در نهایت، در پایه (ابتدای) گروه تاج، تمام ویژگیهای مشترک پرندگان زنده امروزی شکل گرفته بود.
بر اساس دیدگاه پرکاربرد «همهگروه» (Total-group)،[۱۷] گروه کروکودیلومورفا (Crocodylomorpha) مترادف با تمساحسانان (Crocodilia) و پرندهخزندگان (Avemetatarsalia) مترادف با پرندگان در نظر گرفته میشود و درخت بالا را میتوان به این شکل خلاصه کرد:
| شاهخزندگان |
| ||||||
مزیت این رویکرد این است که اگر بگوییم ددپایان (Theropoda) جزو پرندگان ساقه هستند (یعنی همهگروه پرندگانِ غیرپروازی)، توصیفی بسیار دقیقتر از آن است که صرفاً آنها را عضوی از شاهخزندگان بدانیم؛ چرا که کلمه شاهخزندگان به تنهایی آنها را از شاخه تمساحسانان متمایز نمیکند. از طرفی نامگذاری شاخههای پایهای (مثل همهگروه پرندگان) معمولاً برای عموم ناآشناست. با این حال، معایبی هم وجود دارد: «همهگروه پرندگان» و «پرندگان» دقیقاً یک گروه نیستند؛ درک مرزبندیِ مفهوم «همهگروه پرندگان» (که مترادف با پرندهخزندگان است) تنها با بررسی درخت بالا روشن میشود و اینکه هر دو گروه را «پرنده» بنامیم، از نظر علمی مبهم است.
پستانداران ساقه (Stem mammals) شامل آن دسته از جاندارانی هستند که در خط تکاملی منتهی به پستانداران زنده قرار دارند، به همراه تمام شاخههای جانبی آنها؛ این مسیر از زمان جدا شدن خط تکاملیشان از خزندهچهرگان (Sauropsida) آغاز شده و تا آخرین نیای مشترک پستانداران زنده ادامه مییابد. این گروه شامل همکمانان (Synapsids) و همچنین پستاندارریختان (Mammaliaformes) مانند مورگاندندانسانان (Morganucodonts) و موشدندانسانان (Docodonts) میشود؛ این دو گروه اخیر با وجود اینکه خارج از گروه تاج پستانداران قرار میگیرند، اما از نظر کالبدشناسی و به طور سنتی، پستاندار محسوب شدهاند.[۱۸]
چهاراندامان ساقه (Stem tetrapods) حیواناتی هستند که در خط تکاملی منتهی به چهاراندامان قرار دارند. این خط از زمان جدا شدن آنها از شُشماهیها (نزدیکترین خویشاوندان ما در میان ماهیها) آغاز میشود. این گروه علاوه بر تعدادی از گوشتیبالگان، شامل برخی از مازدندانان (Labyrinthodonts) اولیه نیز هست. اینکه دقیقاً کدامیک از مازهدندانان به جای قرار گرفتن در گروه تاج مربوطه، در گروه ساقه چهاراندامان جای میگیرند، هنوز نامشخص است؛ زیرا تبارزایی چهاراندامانِ اولیه به خوبی شناخته نشده است.[۱۹] این مثال نشان میدهد که وقتی اجماع و توافقی بر سر شجرهنامه (تبارزایی) وجود نداشته باشد، استفاده از تعاریف گروه ساقه و تاج کارایی محدودی خواهد داشت.
بندپایان ساقه (Stem arthropods) گروهی هستند که در ارتباط با جانورانِ شیل برجس مورد توجه قرار گرفتهاند. تعدادی از فسیلهای کشفشده، از جمله جانوران اسرارآمیزی مانند اوپابینیا و آنومالوکاریس، دارای برخی (نه همه) ویژگیهای مرتبط با بندپایان هستند و به همین دلیل به عنوان بندپایان ساقه در نظر گرفته میشوند.[۲۰][۲۱] طبقهبندی جانوران شیل برجس در گروههای ساقه مختلف، در نهایت امکان مرتبسازی تبارزاییِ این مجموعه اسرارآمیز را فراهم کرد و همچنین باعث شد تا کرمهای مخملی به عنوان نزدیکترین خویشاوندان زنده بندپایان شناسایی شوند.[۲۱]
پریآپولیدهای ساقه (Stem priapulids) حیوانات دیگری از دورههای کامبرین پیشین تا کامبرین میانی هستند که فسیلهایشان از منطقه چنگجیانگ (Chengjiang) تا شیل برجس یافت شدهاند. سرده اوتویا (Ottoia) کم و بیش ساختاری شبیه به نرینهایتباران امروزی دارد، اما تجزیه و تحلیلهای تبارزایی نشان میدهد که این جانور خارج از گروه تاج قرار میگیرد و به همین دلیل، یک پریآپولید ساقه محسوب میشود.[۳]
گروه پلزیون (Plesion-group)
نام پلزیون (Plesion) تاریخچهای طولانی در سیستماتیک (آرایهشناسی) زیستی دارد و عبارت گروه پلزیون در طول سالها معانی مختلفی به خود گرفته است. یکی از کاربردهای آن به معنای «گروه نزدیک» است (کلمه پلزیون در یونانی به معنای نزدیک به است)؛ یعنی گروه خواهر برای یک آرایه خاص، خواه آن گروه یک گروه تاج باشد یا نه.[۲۲] این اصطلاح همچنین ممکن است به معنای گروهی (احتمالاً پیراتبار) باشد که بر اساس صفات اولیه و ابتدایی (یعنی همجداریختیها یا سیمپلزیومورفیها) تعریف میشود.[۲۳] اما به طور کلی، این اصطلاح برای توصیف یک شاخه جانبی به کار میرود که در درخت تبارزایی، زودتر از گروه مورد نظر جدا شده است.
اهمیت دیرینهشناسی گروههای ساقه و تاج
قرار دادن فسیلها در ترتیب درستِ خود در یک گروه ساقه، به ما اجازه میدهد تا ترتیب به وجود آمدن ویژگیهای جدید را مشخص کنیم؛ و در نتیجه، بستر بومشناختی و عملکردیِ فرگشت (تکامل) ویژگیهای اصلی در گروه مورد نظر را بهتر درک کنیم. بنابراین، گروههای ساقه راهی برای ادغام دادههای منحصربهفرد دیرینهشناسی در مباحث مربوط به تکامل موجودات زنده ارائه میدهند. علاوه بر این، آنها نشان میدهند فسیلهایی که پیشتر به دلیل نداشتن تمام ویژگیهای تشخیصی یک کلاد زنده، در گروهی کاملاً مجزا قرار میگرفتند، در واقع میتوانند با قرار گرفتن در «گروه ساقه»، به آن کلاد زنده مرتبط شوند. چنین فسیلهایی در بررسی خاستگاه و منشأ چهاراندامان، پستانداران و سایر جانوران از اهمیت ویژهای برخوردار بودهاند.
کاربرد مفهوم گروه ساقه همچنین بر نحوه تفسیر جانداران شیل برجس تأثیر گذاشته است. به باور برخی از دانشمندان، طبقهبندی این جانداران در گروههای ساقه متعلق به شاخههای (فایلومهای) امروزی — به جای قرار دادن آنها در شاخههایی کاملاً مستقل و مخصوص به خودشان — باعث میشود پدیده انفجار کامبرین را راحتتر و بدون نیاز به فرض کردن سازوکارهای فرگشتی غیرعادی درک کنیم؛[۲۱] با این حال، استفاده از مفهوم گروه ساقه، مشکلاتی را که پدیدهٔ فشردگی یا «تلسکوپی شدنِ تبارزایی» (Phylogenetic telescoping) ایجاد میکند، برطرف نمیسازد.[۲۴][۲۵] این مشکلاتِ نظری همچنان سد راه نظریهپردازان تکاملی است که در تلاشند تا هم تغییرات کلانفرگشتی و هم ماهیت ناگهانی انفجار کامبرین را درک کنند. تأکید بیش از حد بر مفهوم گروه ساقه میتواند باعث تأخیر در شناخت درست آرایههای جدیدِ ردهبالا شده و یا آن را در هالهای از ابهام قرار دهد.[۲۶]
گروههای ساقه در سیستماتیک (آرایهشناسی)
همانطور که در ابتدا توسط کارل-ارنست لوترباخ پیشنهاد شد، گروههای ساقه باید پیشوند «ساقه-» (مانند ساقه-پرندگان یا Stem-Aves، ساقه-بندپایان یا Stem-Arthropoda) داشته باشند، اما گروههای تاج نباید هیچ پیشوندی بگیرند.[۲۷] این پیشنهاد (یعنی نداشتن پیشوند برای گروه تاج) به طور جهانی برای گروههای شناختهشده پذیرفته نشده است. با این وجود، تعدادی از دیرینهشناسان ترجیح دادهاند از همین رویکرد استفاده کنند.[۲۸]
جستارهای وابسته
منابع
- ↑ Hennig, W. (1969). Die Stammesgeschichte der Insekten (in German). Frankfurt am Main: Waldemar Kramer. ASIN B0000EGSML. OCLC 1612960.
- ↑ Jefferies, R.P.S. (1979). "The Origin of Chordates — A Methodological Essay". In House, M.R. (ed.). The Origin of Major Invertebrate Groups. London; New York: Academic Press for The Systematics Association. pp. 443–447. ISBN 0123574501. OCLC 767789225.
- 1 2 Budd, G.E.; Jensen, S. (2000). "A critical reappraisal of the fossil record of the bilaterian phyla". Biological Reviews. 75 (2): 253–295. doi:10.1111/j.1469-185X.1999.tb00046.x. PMID 10881389. S2CID 39772232.
- ↑ "DNA yields dodo family secrets". BBC News. London. 2002-02-28. Retrieved 2006-09-07.
- ↑ Chiappe, Luis M. (2007), Glorified Dinosaurs: The Origin and Early Evolution of Birds, Sydney: University of New South Wales Press, ISBN 978-0-86840-413-4
- ↑ "UCMP Glossary: Phylogenetics". www.ucmp.berkeley.edu. University of California Museum of Paleontology. 2009-11-12. Archived from the original on 2017-09-29.
- ↑ ed, Rob Nagel (2001). U-X-L encyclopedia of science (2nd ed.). Detroit: U-X-L. ISBN 0787654329.
- 1 2 Benton, M.J. (2005). "Appendix: Classification of the vertebrates". Vertebrate Palaeontology (3rd ed.). Oxford: Blackwell Publishing. pp. 389–403. ISBN 0-632-05637-1. Archived from the original on 2008-10-19.
- ↑ Luo, Zhe-Xi (2007). "Transformation and diversification in early mammal evolution" (PDF). Nature. 450 (7172): 1011–1019. Bibcode:2007Natur.450.1011L. doi:10.1038/nature06277. PMID 18075580. S2CID 4317817. Archived from the original (PDF) on 2012-11-24.
- ↑ Anderson, Jason S. (2002). "Use of Well-Known Names in Phylogenetic Nomenclature: A Reply to Laurin" (PDF). Systematic Biology. 51 (5): 822–827. doi:10.1080/10635150290102447. PMID 12396594. Retrieved 28 December 2011.
- ↑ Laurin, M.; Anderson, J.S. (2004). "Meaning of the Name Tetrapoda in the Scientific Literature: An Exchange". Systematic Biology. 53 (1): 68–80. doi:10.1080/10635150490264716. PMID 14965901.
- ↑ Craske, A.J.; Jefferies, R.P.S. (1989). "A New Mitrate from the Upper Ordovician of Norway, and a New Approach to Subdividing a Plesion" (PDF). Palaeontology. 32: 69–99.
- ↑ Willmann, Rainer (2003). "From Haeckel to Hennig: the early development of phylogenetics in German-speaking Europe". Cladistics. 19 (6): 449–479. doi:10.1016/j.cladistics.2003.09.001.
- ↑ Abel, O. (1914), Die vorzeitlichen Saugetiere, G. Fischer Verlag, Jena
- ↑ Romer, A.S. (1933), "Vertebrate Paleontology", Journal of Geology, 41 (8), University of Chicago Press, Chicago: 842, Bibcode:1933JG.....41..842S, doi:10.1086/624118
- ↑ Czaplewski, Terry A. Vaughan, James M. Ryan, Nicholas J. (2000). Mammalogy (4th ed.). Fort Worth: Brooks/Cole Thomson Learning. p. 61. ISBN 003025034X. Retrieved 27 July 2013.
From a cynodont ancestry, the stem mammals arose in the late Triassic, slightly after the first appearance of dinosaurs
{{cite book}}: نگهداری یادکرد:نامهای متعدد:فهرست نویسندگان (رده) - ↑ Donoghue, Philip C. J. (2005). "Saving the stem group—a contradiction in terms?". Paleobiology (in English). 31 (4): 553. Bibcode:2005Pbio...31..553D. doi:10.1666/04028.1. ISSN 0094-8373. S2CID 198156530.
- ↑ رومر، ای. اس. (1966): دیرینهشناسی مهرهداران. انتشارات دانشگاه شیکاگو؛ چاپ سوم شابک ۰−۷۱۶۷−۱۸۲۲−۷
- ↑ Marjanović, David; Laurin, Michel (1 March 2013). "The origin(s) of extant amphibians: a review with emphasis on the "lepospondyl hypothesis"". Geodiversitas. 35 (1): 207–272. Bibcode:2013Geodv..35..207M. doi:10.5252/g2013n1a8. S2CID 67823991.
- ↑ Budd, G.E. (1996). "The morphology of Opabinia regalis and the reconstruction of the arthropod stem-group". Lethaia. 29 (1): 1–14. Bibcode:1996Letha..29....1B. doi:10.1111/j.1502-3931.1996.tb01831.x.
- 1 2 3 Brysse, K. (2008). "From weird wonders to stem lineages: the second reclassification of the Burgess Shale fauna". Studies in History and Philosophy of Science Part C: Biological and Biomedical Sciences. 39 (3): 298–313. doi:10.1016/j.shpsc.2008.06.004. PMID 18761282.
- ↑ Patterson, C.; Rosen, D.E. (1977). "Review of ichthyodectiform and other Mesozoic teleost fishes, and the theory and practice of classifying fossils". Bulletin of the American Museum of Natural History. 158 (2): 85–172. hdl:2246/1224.
- ↑ Kluge, N. (2000). Modern Systematics of Insects. Part I. Principles of Systematics of Living Organisms and General System of Insects, with Classification of Primary Wingless and Paleopterous Insects (in Russian). St. Petersburg, Russland: Lan'. p. 336. Archived from the original on 2012-09-14. Retrieved 2011-12-31.
- ↑ Conway Morris, S. (2009). "Walcott, the Burgess Shale, an rumours of a post-Darwinian world". Current Biology. 19 (20): R927–R931. Bibcode:2009CBio...19.R927C. doi:10.1016/j.cub.2009.08.046. PMID 19889363. S2CID 2723134.
- ↑ McMenamin, M. A. S. (2013). "Breakthrough on the Cambrian Explosion". BioScience. 63 (10): 834–835. doi:10.1525/bio.2013.63.10.14.
- ↑ McMenamin, M.A.S. (2015). Paramphibia: A New Class of Tetrapods. South Hadley, Massachusetts: Meanma. ISBN 978-1-893882-20-1.
- ↑ Lauterbach, K-E. (1989): Das Pan-Monophylum – ein Hilfsmittel für die Praxis der Phylogenetischen Systematik. Zoologischer Anzeiger, no 223, pp 139–156.
- ↑ Gauthier, J., and de Queiroz, K. (2001). "Feathered dinosaurs, flying dinosaurs, crown dinosaurs, and the name Aves." Pp. 7-41 in New perspectives on the origin and early evolution of birds: proceedings of the International Symposium in Honor of John H. Ostrom (J. A. Gauthier and L. F. Gall, eds.). Peabody Museum of Natural History, Yale University, New Haven, Connecticut, U.S.A.
برای مطالعه بیشتر
- Budd, G. (2001), "Climbing Life's Tree", Nature, 412 (6846): 487, Bibcode:2001Natur.412..487B, doi:10.1038/35087679, PMID 11484029, S2CID 27322225
- Budd, G. E. (2001), "Tardigrades as 'stem-group' Arthropods: the Evidence from the Cambrian Fauna", Zoologischer Anzeiger, 240 (3–4): 265–279, Bibcode:2001ZooAn.240..265B, doi:10.1078/0044-5231-00034
- زیستشناسی فرگشتی
- تبارزایی