سازند دوشانتو
| سازند دوشانتو سن: ادیاکاران ~۶۳۵ تا ۵۵۱ میلیون سال پیش ۰ ۶۳۵ ۵۵۱ | |
|---|---|
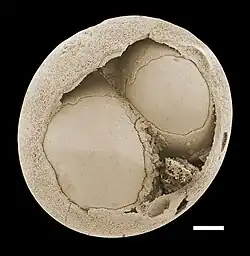 | |
| واحد بالایی | سازند دنگیینگ (Dengying Formation) |
| واحد زیرین | سازند نانتو (Nantuo Formation) |
| ضخامت | تا ۴۰۰ متر؛ معمولاً بین ۲۰۰ تا ۲۵۰ متر |
| سنگشناسی | |
| سنگ اصلی | شیل |
| دیگر سنگها | گِلسنگ، مارن، کانیهای کربنات یا فسفات |
| موقعیت | |
| منطقه | جنوب چین |
| کشور | چین |
| مقطع نمونه | |
| دلیل نامگذاری | دوشانتو، هوبئی |
| نامگذار | لی سیگوانگ (Li Siguang) و ژائو یازنگ (Zhao Yazeng) |
| سال توصیف | ۱۹۲۴[۱] |
| بخشی از مجموعهای در مورد |
| انفجار کامبرین |
|---|
 |
سازند دوشانتو (Doushantuo Formation - در گذشته با نامهای Toushantuo یا Toushantou رونویسی میشد، بهمعنای «خلیج کوهستانی پرشیب») یک سازند زمینشناسی در غرب هوبئی، شرق گوئیژو، جنوب شاآنشی، مرکز جیانگشی و سایر نقاط چین است.[۲] این سازند بهخاطر «لاگرشتاتنهای» (Lagerstätten) فسیلیِ خود در مناطق زیگویی (Zigui) در هوبئی، شیونینگ (Xiuning) در آنهوئی، و ونگآن (Weng'an) در گوئیژو شناخته میشود و یکی از قدیمیترین بسترهایی است که ریزفسیلهای بهخوبی حفظشده و فسیلهای فسفاتی را در خود جای داده است؛[۳] این فسیلها چنان ویژگیهای منحصربهفردی دارند که نام خود را به سبکِ «حفظشدگی نوع دوشانتو» (Doushantuo type preservation) دادهاند.
این سازند که رسوبات آن به دورههای ادیاکاران پیشین و میانی برمیگردد،[۴][۵] از اهمیت ویژهای برخوردار است، زیرا بازهٔ زمانیِ ناشناخته و مبهمی را میان پایانِ دورهٔ کریوژنین و جانورانِ آشناتر در اواخر ادیاکاران (انفجار آوالون) پوشش میدهد[۶] و ریزفسیلهای آن قابلیت استفاده بهعنوان نشانگرهای زیستچینهشناختی (Biostratigraphical) را دارند.[۷] درمجموع، سازند دوشانتو از حدود ۶۳۵ میلیون سال پیش (در پایهترین لایه) تا حدود ۵۵۱ میلیون سال پیش (در بالاترین لایه) را در بر میگیرد و غنیترین لایهٔ فسیلیِ آن، احتمالاً ۵ میلیون سال قدیمیتر از کهنترین زیواگانِ «کلاسیک» ادیاکاران در میستیکن پوینت (Mistaken Point) در نیوفاندلندِ کانادا است. این سازند شرایط زمین را تا چهل تا پنجاه میلیون سال پیش از انفجار کامبرین در آغاز دوران پیدازیستی ثبت کرده است.
رسوبشناسی
کل توالیِ این سازند بر روی یک دگرشیبی (Unconformity) با سازندِ زیرین خود یعنی سازند لیانتو (Liantuo formation) قرار گرفته است که فاقد فسیل میباشد؛ دگرشیبی معمولاً بهعنوان یک دورهٔ فرسایشی تفسیر میشود. بر روی این دگرشیبی، تیلیتهای (Tillites) سازند نانتو (Nantuo formation) قرار دارند؛ یخرفتهای بههمچسبیدهای که از رسوبات یخچالی شامل قلوهسنگ و شن تشکیل شده و در پایانِ یخبندان مارینوآن (Marinoan glaciation) به جا ماندهاند (این یخبندان که با نام یخبندان وارانژیان نیز شناخته میشود، دومین و آخرین یخبندان از مجموعه یخبندانهای بسیار گسترده در دورهای به نام کریوژنین است؛ دورهای که بهدلیل شرایط «زمین گوی برفی» به این نام خوانده میشود). این آخرین سطح یخچالی کریوژنین بهطور آزمایشی در حدود ۶۵۴ (۵ ± ۶۶۰) تا ۶۳۵ میلیون سال پیش تاریخگذاری شده است.
سازند دوشانتو دارای سه لایه است که نشاندهندهٔ رسوبات آبیِ تشکیلشده در اثر بالا آمدن سطح آب دریاها همزمان با ذوب شدنِ یخبندانِ جهانی است. نشانگرهای زیستی حاکی از شرایط بسیار شور (مانند شرایط تالابها)، سطح پایین اکسیژن، و رسوبات بسیار اندکی است که از سطوح خشکی شسته شدهاند.
غنیترین یافتهها (لایهٔ اصلی لاگرشتاتن) در پایینِ لایهٔ میانی با قدمت حدود ۵۷۰ میلیون سال پیش قرار دارند؛ یعنی دورانی پس از یخبندان بزرگِ گاسکیرز (Gaskiers glaciation).
فسیلها
تمام فسیلهای دوشانتو آبزی و میکروسکوپی هستند و با جزئیات بالایی حفظ شدهاند. این دو ویژگی نشان میدهد که ساختارِ ارگانیسمهای سازندهٔ آنها در سطح سلولی قابلمطالعه است و بینش قابلتوجهی دربارهٔ مراحل رویانی و لارویِ بسیاری از جانداران اولیه بهدست آمده است. یکی از ادعاهای بحثبرانگیز این است که بسیاری از این فسیلها نشانههایی از تقارن دوطرفه را نشان میدهند؛ ویژگی رایجی در بسیاری از جانوران مدرن که معمولاً تصور میشد بعدها در طول انفجار کامبرین فرگشت یافته است. یک جانورِ فسیلیِ تقریباً میکروسکوپی به نام ورنانیمالکولا (Vernanimalcula) —بهمعنای «حیوان کوچک بهاری»— در اکتبر ۲۰۰۵ معرفی شد و ادعا گردید که قدیمیترین جانور دوسو-تقارنِ شناختهشده است.[۸] با این حال، فقدانِ فرمهای بالغ از تقریباً تمام انواع جانوران در دوشانتو (اسفنجها و مرجانهای دریایی بالغِ میکروسکوپی در آن یافت میشوند)، اثبات این ادعاها را دشوار میسازد: برخی استدلال میکنند که این فقدان نشان میدهد یافتههای مذکور اصلاً فرمهای لاروی یا رویانی نیستند؛ در حالی که طرفدارانِ این یافتهها ادعا میکنند که فرایندی ناشناخته سبب شده تا تمام فرمها بهجز کوچکترین آنها از روند فسیلشدن «فیلتر» شوند. تفسیری جایگزین نشان میدهد که این اشکال توسط فرایندهای غیرزیستیِ سنگساز ایجاد شدهاند.[۹] تیمی که ورنانیمالکولا را کشف کرد، از نتیجهگیریِ خود مبنی بر جانور بودنِ آن دفاع کرد و اشاره نمود که آنها ده نمونه (که در مقاله تصویر نشده بودند) با همان اندازه و پیکربندی پیدا کردهاند و تأکید کردند که بسیار بعید است فرایندهای غیرزیستی بتوانند این تعداد نمونهٔ بسیار مشابه به هم تولید کنند.[۱۰]
این کشف زمانی رخ داد که معادنِ غنیِ فسفات در حال استخراج بودند و نخستین بار در سال ۱۹۹۸ گزارش شد. این یافتهها شواهد مستقیمی ارائه میدهند که پیشبینیها مبنی بر وقوع تنوع عمدهٔ فرگشتیِ جانوران پیش از آغاز دوره کامبرین (که دارای یک «انفجار» ظاهری از فرمهای حیات جانوری است) را تأیید میکنند؛ بنابراین، اجدادِ دورترِ شاخههای جانوری که در فسیلهای بزرگ کامبرین قابلشناسایی هستند، باید پیشتر وجود داشته باشند.
زیواگان ثبتشده اکنون شامل ریزفسیلهای فسفاتی از جلبکها، تالوفیتهای چندسلولی (جلبکهای دریایی)، اکریتارکها، مژکداران،[۱۱] و سیانوفیتها، علاوه بر اسفنجهای بالغ و گزندهتباران بالغ (کیسهتنان؛ که ممکن است فرمهای اولیهٔ مرجانهای تابولاتا باشند) است. همچنین بهنظر میرسد رویانِ جانوران دوسو-تقارن (که پژوهشگران با احتیاط آنها را پاراپاندورینا (Parapandorina) مینامند) و تخمها (مگاسفرا (Megasphaera)) نیز در میان آنها وجود داشته باشند. برخی از رویانهای احتمالیِ جانوران در مراحل اولیهٔ تقسیم سلولی هستند (که در ابتدا بهعنوان هاگ یا سلولهای جلبکی تفسیر میشدند) و شامل تخمها و رویانهایی هستند که بهاحتمال زیاد متعلق به اسفنجها یا گزندهتباران میباشند.
یک احتمالِ جایگزین این است که این «رویانها» و «تخمها» در واقع فسیلِ باکتریهای غولپیکرِ گوگردی شبیه به تیومارگاریتا (Thiomargarita) باشند؛ باکتریای چنان بزرگ که با چشم غیرمسلح قابل مشاهده است.[۱۲] این تفسیر همچنین مکانیسمی برای فسیلشدنِ فسفاتی (از طریق تهنشینیِ فسفات با واسطهٔ میکروبی توسط باکتریها) فراهم میکند که در محیطهای مدرن نیز مشاهده شده است. اگر لکههای تیره در فسیل در واقع هستههای فسیلشده باشند (که ادعایی دور از ذهن است)[۱۳]، فرضیهٔ تیومارگاریتا رد خواهد شد. با این حال، مقایسههای اخیر میان فسیلهای دوشانتو با تیومارگاریتاهای در حال پوسیدگیِ مدرن و رویانهای مردهٔ توتیای دریایی، شباهت اندکی میان این فسیلها و سلولهای در حال پوسیدگی باکتریها نشان میدهد.[۱۴]
تاکنون تنها حدود یکبیستم از فسیلهای این سایت حفاری شدهاند. بسترهای فسیلی با افزایشِ شدتِ عملیات استخراج فسفات در منطقه در معرض خطر قرار دارند. کارگاهی که توسط دیرینهشناسان محلی در اعتراض به این موضوع برگزار شد، به توقف موقت استخراج معادن در سال ۲۰۱۷ انجامید.[۱۵]
دیرینهزیواگان
اگرچه در اینجا نامِ این جانداران در زیرمجموعهٔ سازند دوشانتو آورده شده، اما بیشتر جلبکها در منطقهٔ «زیواگان میاهو» (Miaohe biota) یافت میشوند که ممکن است متعلق به بخش پایینی سازند دنگیینگ (Dengying Formation) باشند.[۱۶]
جلبکها
| جلبکها | |||||
|---|---|---|---|---|---|
| سرده | گونه | آرایه بالاتر | یادداشتها | تصاویر | |
| آنهویفیتون (Anhuiphyton) | A. lineatum | یوکاریوتها (Eukaryota) | اساساً مشابه نمونههای سازند لانتیان (Lantian Formation) است | ||
| آنومالوفیتون (Anomalophyton) | A. zhangzhongyingi | یوکاریوتها | شبیه به دوشانتوفیتون است، اما انشعاباتِ کمتری دارد | ||
| باکولیفیکا (Baculiphyca) | B. taeniata, B. brevistipitata | یوکاریوتها | گونهها در طولِ ساقه با یکدیگر تفاوت دارند | 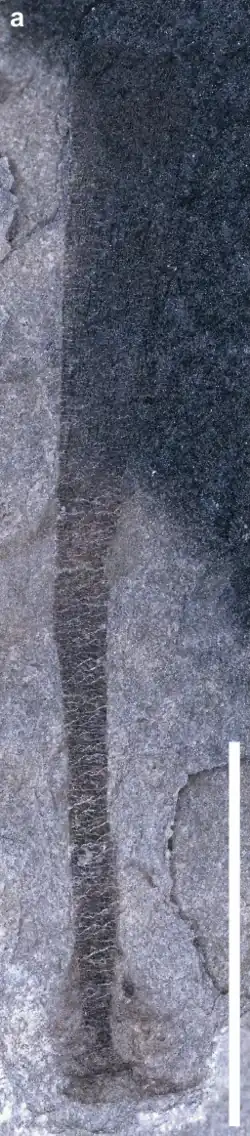 | |
| بلتانلیفورمیس (Beltanelliformis) | B. brunsae | سیانوباکتریها | در ابتدا بهعنوان یک گزندهتبارِ پولیپمانند تفسیر شده بود | 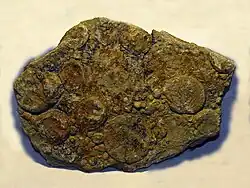 | |
| کراسیتوبوس (Crassitubus) | C. costata | سیانوباکتریها | پیش از آنکه بهعنوان یک سیانوباکتری تفسیر شود، در ابتدا بهعنوان یک جانور لولهای تفسیر شده بود | ||
| کوبیوس (Cobios) | C. rubro | جلبک قرمز (Rhodophyta) | شواهدی از مراحل مختلفِ چرخهٔ حیات را در خود حفظ کرده است[۱۷] | ||
| دوشانتوفیتون (Doushantuophyton) | D. lineare, D. rigidulum, D. quyuani, D. cometa, D. laticladus | یوکاریوتها | نسبتاً کوچک و نازک است | 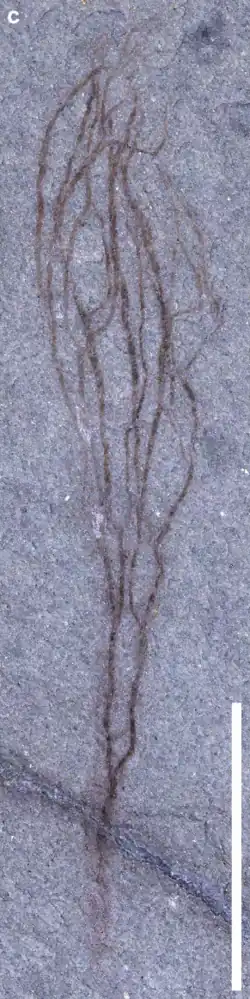 | |
| انترومورفیتس (Enteromorphites) | E. siniansis, E. magnus | یوکاریوتها | یکی از بزرگترین «جلبکهای شاخهدار» از دوشانتو | ||
| جمافیتون (Gemmaphyton) | G. taoyingensis | یوکاریوتها | دارای یک ساقهٔ بسیار بلند و اندام نگهدارندهٔ (Holdfast) گِرد است | ||
| گلوبوسفیتون (Globusphyton) | G. lineare | یوکاریوتها | ریختشناسیِ کاملاً غیرمعمولِ آن نشان میدهد که احتمالاً در کف دریا میخزیده است[۱۸] | ||
| گلومولوس (Glomulus) | G. filamentum | سیانوباکتریها | شبیه به سیانوباکتریهای مدرن مانند میکروکولئوس (Microcoleus) است | ||
| گرمیفیکا (Gremiphyca) | G. corymbiata | جلبک قرمز | احتمالاً یک جلبک قرمزِ پایه (Stem-rhodophyte) است و به جلبکهای کرالین (Coralline) شباهت دارد[۱۹] | ||
| گریپانیا (Grypania) | G. spiralis | یوکاریوتها؟ | یکی از رایجترین فسیلهای بزرگِ دوره پیشینزیستی | 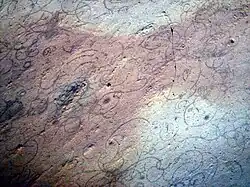 | |
| جیوکونائوولا (Jiuqunaoella) | J. simplicis | یوکاریوتها | شبیه به گریپانیا است، اما تفاوت آن در داشتنِ فشردگیها و تنگیهاست | ||
| جیکسیانیا (Jixiania) | J. lineata | یوکاریوتها؟ | از دوره میانزیستی نیز شناخته شده است؛ احتمالاً یک جلبک رشتهای است | ||
| کونگلینگیفیتون (Konglingiphyton) | K. erecta, K. laterale | جلبک قرمز؟ | احتمالاً یک جلبک قرمز است. یک سردهٔ پیشین ("Ramalga") در واقع نمونهای از همین سرده بود که یک دوشانتوفیتون روی آن قرار گرفته بود | ||
| لاتیورتنویفیتون (Latiortenuiphyton) | L. robusta | یوکاریوتها | دارای ساختارهای رگمانندِ بزرگی در تالوسِ خود است | ||
| لیولینگجیتینیا (Liulingjitaenia) | L. alloplecta | یوکاریوتها | بهطرز غیرمعمولی از مجموعهای از رشتههای درهمبافته تشکیل شده است | ||
| لونگیفونیکولوم (Longifuniculum) | L. dissolutum | یوکاریوتها | شبیه به لیولینگجیتینیا است، اما رشتههای آن در هر انتها تقریباً شبیه به یک طنابِ بافتهشده از هم باز میشوند | ||
| ماکسیفیتون (Maxiphyton) | M. stipitatum | یوکاریوتها | دارای ساقهٔ بهطرز غیرمعمولی ضخیم است | ||
| مگاسپیرلوس (Megaspirellus) | M. houi | یوکاریوتها | هولوتیپ آن بهدلیل وجود دانههای رسوبی، مجدداً بهعنوان یک کوپرولیت (مدفوع فسیلشده) تفسیر شد | ||
| میاهوفیتون (Miaohephyton) | M. bifurcatum | جلبک قهوهای؟ | فسیلها احتمالاً قطعاتِ ریختهشده از تالوسهای بزرگتر هستند[۲۰] | ||
| پارامسیا (Paramecia) | P. incognata | کورالینالیس؟ (Corallinales) | در گذشته بهعنوان یک گلسنگ دریایی تفسیر میشد | ||
| پاراتترافیکوس (Paratetraphycus) | P. gigantea | بانگیوفیسه؟ (Bangiophyceae) | شبیه به مراحل اولیهٔ رشد در جلبکِ پورفیرا (Porphyra) است | ||
| سودودوشانتوفیتون (Pseudodoushantuophyton) | P. wenghuiensis | یوکاریوتها | دارای رشتههای خوشهمانند بر روی شاخههای خود است | ||
| کوادراتیتوبوس (Quadratitubus) | Q. orbigoniatus | سیانوباکتریها | پیش از آنکه بهعنوان یک سیانوباکتری تفسیر شود، در ابتدا بهعنوان یک جانور لولهای تفسیر شده بود | ||
| رامیتوبوس (Ramitubus) | R. increscens, R. decrescens | یوکاریوتها | در ابتدا بهعنوان جانور لولهای تفسیر شد، سپس مشخص شد که جلبکی شبیه به اپیفیتون (Epiphyton) است | ||
| سینوکسیلیندرا (Sinocylindra) | S. linearis, S. yunnanensis | یوکاریوتها | شبیه به سیانوباکتریِ سیفانوفیکوس (Siphonophycus) است |  | |
| سینوسایکلوکایکلیکوس (Sinocyclocyclicus) | S. guizhouensis | سیانوباکتریها | در گذشته در کنار دیگر ریزفسیلهای لولهای، تصور میشد یک لارو یا جانورِ لولهنشین باشد | ||
| سیفانوفیکوس (Siphonophycus) | S. solidum, S. septatum, S. kestron, S. typicum, S. robustum | سیانوباکتریها | سیانوباکتری نسبتاً رایج | ||
| تالوفیکا (Thallophyca) | T. corrugata | جلبک قرمز | شبیه به سولنوپوراسه (Solenoporaceae) است | ||
| تالوفیکوئیدس (Thallophycoides) | T. phloeatus | یوکاریوتها | ممکن است یک جلبک قرمز باشد؟ | ||
| تونگرنفیتون (Tongrenphyton) | T. komma | یوکاریوتها | دارای چندین رشته در طول تالوس خود است که نشاندهندهٔ قرابت واضح با یوکاریوتهاست | ||
| وندوتاینیا (Vendotaenia) | V. sp | وندوتاینید (Vendotaenid) | شبیه به نمونههای اوایل کامبرین است | 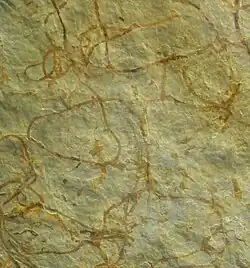 | |
| ونگانیا (Wengania) | W. globosa, W. exquisita, W. minuta[۲۱] | یوکاریوتها | از نظر ساختار پارانشیمیِ خود (بهویژه جلبکهای سبز) شبیه به جلبکهای مختلف است | ||
میکروارگانیسمها
| میکروارگانیسمها | |||||
|---|---|---|---|---|---|
| سرده | گونه | آرایه بالاتر | یادداشتها | تصاویر | |
| آگرگاتوسفرا (Aggregatosphaera) | A. miaoheensis | یوکاریوتها؟ | خوشههای سلولی کروی با شباهتهایی به کیستهای جلبکی | ||
| آنولاریدنس (Annularidens) | A. inconditus | اکریتارک (Acritarch) | دارای زوائدِ توخالیِ متعددی در سطح بیرونی خود است که در مقطع عرضی ظاهری شبیه به چرخدنده به آن میدهد | ||
| آپوداستوئیدس (Apodastoides) | A. basileus | اکریتارک | دارای زوائدی با یک درپوش در پایهٔ آنهاست | ||
| آپندیسفرا (Appendisphaera) | A. anguina, A. clava, A. grandis, A. fragilis, A. longispina, A. setosa, A. tabifica, A. tenuis, A. helicaea, A. brevispina, A. hemisphaerica[۲۲] | اکریتارک | دارای زوائد انعطافپذیر و بلندِ متعددی است | ||
| آرکئوفیکوس (Archaeophycus) | A. yunnanensis | یوکاریوتها؟ | یا یک سیانوباکتری است یا مرحلهٔ اولیهٔ رشدِ یک جلبک | ||
| آستروکاپسوئیدس (Asterocapsoides) | A. sinicus | اکریتارک | هولوتیپ اصلی آن بر اثر شکستن سنگِ پیرامون آسیب دیده است | ||
| باکاتیسفرا (Bacatisphaera) | B. baokangensis | اکریتارک | دارای زوائد بزرگِ جوشمانندی است | ||
| بالتیسفائریدیوم (Baltisphaeridium) | B. rigidum | اکریتارک | دارای زوائد کوتاه و مثلثی است | ||
| بیسپینوسفرا (Bispinosphaera)[۲۲] | B. vacua | اکریتارک | دارای دو نوع زائده مجزاست؛ یکی مخروطی و توخالی، و دیگری توپر و مومانند | ||
| بوتومینلا (Botominella) | B. lineata | یوکاریوتها؟ | از ساختارهای کوچکِ شبیه به تریکوم (Trichome) شناخته شده است | ||
| کاستانئاسفرا (Castaneasphaera) | C. speciosa | اکریتارک | شبیه به «مازوئلوئیدهای» (Mazuelloids) پیدازیستی است | ||
| کاواسپیر (Cavaspira) | C. acuminata, C. basiconica | اکریتارک | دارای زوائد کوتاه و مخروطی است | ||
| سریونوپورا (Cerionopora) | C. ordinata | اکریتارک | ممکن است کیستِ استراحتِ یک جلبک چندسلولی باشد | ||
| کوماسفائریدیوم (Comasphaeridium) | C. magnum | اکریتارک | دارای زوائد بلندِ مومانند است | ||
| کراسیممبرانا (Crassimembrana) | C. crispans, C. multitunica | اکریتارک | دارای دیوارهٔ وزیکولیِ ضخیمی است | ||
| سیانونما (Cyanonema) | C. attenuatum | سیانوباکتریها | شبیه به شکلهای سازند بیتر اسپرینگز (Bitter Springs) است[۲۲] | ||
| سیماتیوسفائروئیدس (Cymatiosphaeroides) | C. forabilatus, C. yinii | اکریتارک | شبیه به ممبرانوسفرا است؛ دارای زوائد استوانهای با نوکِ تیز است | ||
| دیکروسپیناسفرا (Dicrospinasphaera) | D. zhangii | اکریتارک | دارای زوائد نازک و منشعب است | ||
| دیستوسفرا (Distosphaera) | D. jinguadunensis, D. speciosa | اکریتارک | دارای دو لایه از زوائد استوانهای است | ||
| دوشانتونما (Doushantuonema) | D. peatii | سیانوباکتریها | قدیمیترین سیانوباکتریِ گزارششده از این سازند[۲۳] | ||
| دوئوسپینوسفرا (Duospinosphaera) | D. shennongjiaensis, D. biformis | اکریتارک | دارای دو لایه از زوائد است؛ لایه درونی استوانهای که به قندیلهای آویزان تشبیه شده، و لایه بیرونی دارای زوائد مخروطیِ بزرگتر است | ||
| اکینوسفائریدیوم (Echinosphaeridium) | E. maximum | اکریتارک | در گذشته بهدلیل تفسیر اشتباهِ خارهای آن بهعنوان ساختار توپر، در سردهٔ اریشیاسفرا قرار داده شده بود | ||
| ائوتیلوتوپالا (Eotylotopalla) | E. apophysa, E. dactylos, E. delicata | اکریتارک | در گذشته در سردهٔ تیمانیسفرا (Timanisphaera) قرار داشت | ||
| اریشیاسفرا (Ericiasphaera) | E. fibrila, E. magna, E. rigida?, E. densispina,[۲۲] E. sparsa | اکریتارک | دارای زوائد متراکم استوانهای است؛ اکریتارکهای با حفظشدگیِ ضعیف که احتمالاً متعلق به این سرده بودند، بهاشتباه بهعنوان مژکداران تفسیر شده بودند[۲۴] | ||
| گونیوسفائریدیوم (Goniosphaeridium) | G. acuminatum, G. conoideum, G. cratum | اکریتارک | شبیه به بالتیسفائریدیوم است | ||
| گرانیتونیکا (Granitunica) | G. mcfaddenae | اکریتارک | با سایر اکریتارکهای کروی (sphaeromorph) در داشتن دیوارهٔ گرانولی متفاوت است[۲۲] | ||
| هوکوسفائریدیوم (Hocosphaeridium) | H. dilatatum, H. scaberfacium | اکریتارک | دارای زوائد قلابمانند متعددی است | ||
| نولیسفائریدیوم (Knollisphaeridium) | K. maximum, K. coniformum, K. denticulatum, K. longilatum, K. obtusum, K. parvum[۲۲] | اکریتارک | دارای زوائد مخروطی با نوکِ رشتهمانندِ بلندی است | ||
| لیوسفرایدیا (Leiosphaeridia) | L. tenuissima, L. crassa, L. minutissima | اکریتارک | بهشدت فراوان است[۲۲] | ||
| مگاسفرا (Megasphaera) | M. inornata | آغازیان (Protista) | تصور میشد تخم یک جانور باشد، سپس مشخص شد که احتمالاً یک آغازیِ در حال ایجاد کیست (Encysting) است[۲۵] | ||
| مگیستریکوسفائریدیوم (Meghystricosphaeridium) | M. chadianensis, M?. densum, M. gracilentum, M. perfectum, M. magnificum, M. wenganensis | اکریتارک | تا حدودی نامشخص است که کدام گونهها به این سرده تعلق دارند | ||
| منگئوسفرا (Mengeosphaera) | M. angusta?, M. chadianensis, M. constricta, M. gracilis, M. mamma, M. minima, M. stegosauriformis, M. bellula, M. cuspidata, M. grandispina, M. latibasis, M. spicata, M. spinula, M. triangula, M. uniformis, M. membranifera[۲۶] | اکریتارک | گونهٔ M. stegosauriformis بهدلیل شباهت زوائدش به صفحاتِ دایناسورِ استگوسور به این نام خوانده شده است[۲۲] | ||
| اوبروچوولا (Obruchevella) | O. minor | سیانوباکتریها | نسبتاً کمیاب است | ||
| اوسیلاتوریوپسیس (Oscillatoriopsis) | O. amadeus, O. longa, O. obtusa, O. majuscula | سیانوباکتریها | سردهٔ رایجی از سیانوباکتریهاست[۲۲] | ||
| اوسکولوسفرا (Osculosphaera) | O. arcelliformis, O. hyalina, O. membranifera | اکریتارک | شبیه به آرسلینیدهاست (Arcellinids)[۲۲] | ||
| پاپیلوممبرانا (Papillomembrana) | P. compta | اکریتارک | در گذشته در راستهٔ داسیکلادالیس (Dasycladales) قرار داده شده بود | ||
| پوستولیسفرا (Pustulisphaera) | P. membranacea | اکریتارک | دارای دیوارهای سهلایه است که لایهٔ میانی دارای زوائد جوشمانند است | ||
| سالومه (Salome) | S. hubeiensis | سیانوباکتریها | فسیلی که بهعنوان یک «ریزسوراخ نقبزن» (Microburrow) شناسایی شده بود، پیش از آنکه بهعنوان مقطعِ موربِ یک فسیل لولهای شناسایی شود، در این سرده قرار گرفته بود[۲۲] | ||
| سارسینوفیکوس (Sarcinophycus) | S. radiatus, S. papilloformis | یوکاریوتها؟ | تنها از سازند دوشانتو شناخته شده است؛ از دستههایی از بستههای سلولیِ سارسینمانند (Sarcinoid) تشکیل شده است | ||
| شیزوفوسا (Schizofusa) | S. zangwenlongii | اکریتارک | شبیه به لیوسفرایدیا است[۲۲] | ||
| سینوسفرا (Sinosphaera) | S. asteriformis, S. rupina | اکریتارک | دارای خارهای مخروطی کوچک و چند خار بزرگتر است[۲۲] | ||
| سیمفیسوسفرا (Symphysosphaera) | S. basimembrana | اکریتارک | شبیه به ائوسفرا است، اما بزرگتر[۲۲] | ||
| تاناریوم (Tanarium) | T. acus, T. conoideum, T. elegans, T. longitubulare, T. minimum, T. obesum, T. pilosiusculum, T. pycnacanthum, T. varium | اکریتارک | شکل خارها از کوچک و مثلثی تا بلند و سوزنیشکل متغیر است[۲۲] | ||
| تیانزوشانیا (Tianzhushania) | T. spinosa | اکریتارک | دارای دیوارهای چندلایه است که خارها به درون آن نفوذ کردهاند | ||
| اوراسفرا (Urasphaera) | U. fungiformis, U. nupta | اکریتارک | دارای خارهای قارچمانند است، و نام گونهٔ آن (fungiformis) نیز به همین ویژگی اشاره دارد[۲۲] | ||
| واریومارگوسفائریدیوم (Variomargosphaeridium) | V. floridum | اکریتارک | دارای زوائدی است که در نوکِ خود منشعب میشوند[۲۲] | ||
| وولکانوسفرا (Vulcanosphaera) | V. phacelosa | اکریتارک | دارای زوائد دستهای و مومانند است | ||
| ویسلا (Weissiella) | W. grandistella | اکریتارک | فسیلهای دوشانتو شبیه به نمونههای روسی هستند، اما کوچکترند[۲۲] | ||
| زنوسفرا (Xenosphaera) | X. liantuoensis | اکریتارک | دارای زوائد بسیار نازکی است که معمولاً بهخوبی حفظ نمیشوند[۲۲] | ||
| یوشنگیا (Yushengia) | Y. ramispina | اکریتارک | شبیه به ویسلا است، اما خارهای بلندتری دارد[۲۲] | ||
آرایههای متفرقه
| آرایههای متفرقه | |||||
|---|---|---|---|---|---|
| سرده | گونه | آرایه بالاتر | یادداشتها | تصاویر | |
| کوکولوس (Cucullus) | C. fraudulentus | آرایه نامشخص | در ابتدا بهعنوان یک اسفنج، و سپس بهعنوان یک میکروبیالیت (Microbialite) تفسیر شد[۲۷] | ||
| پاراگراپتوبرانکا (Paragraptobranca) | P. curvus | آرایه نامشخص | دارای ویژگیهای مشترکی با گراپتولیتها و ماکروجلبکهاست | ||
| کالیپترینا (Calyptrina) | C. striata | کرمهای حلقوی؟ | تقریباً بهطور قطع یک جانور (متازوآ) است | 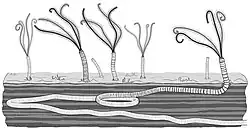 | |
| ائواندرومدا (Eoandromeda) | E. octobrachiata | شانهدارتباران؟ | در ابتدا بهعنوان مرحلهٔ بلوغِ جنینهای مختلف،[۲۸] سپس بهعنوان یک شانهدارتبارِ دیسکمانندِ دریایی (Pelagic)،[۲۹] و در نهایت بهعنوان فرمی چترمانند و کفزی (Demersal) تفسیر شد[۳۰] | 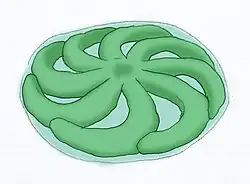 | |
| ائوسیاتیسپونجیا (Eocyathispongia) | E. qiania | اسفنجها | قدیمیترین فسیلِ احتمالیِ اسفنجهاست[۳۱] | 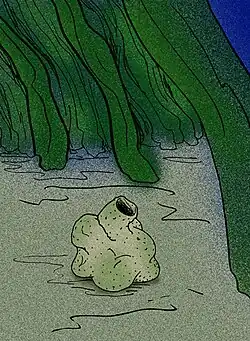 | |
| لینبوتولیتنیا (Linbotulitaenia) | L. globosa | جانوران (Metazoa) | احتمالاً فسیل اثریِ یک جانور پوشیده از مخاط در حالِ خزیدن است (شاید از ونگهوییا) | ||
| پروتوکونیتس (Protoconites) | P. minor | گزندهتباران؟ | احتمالاً ارگانیسمی در سطح گزندهتباران[۳۲] و شبیه به کامبروریتیوم (Cambrorhytium) است | 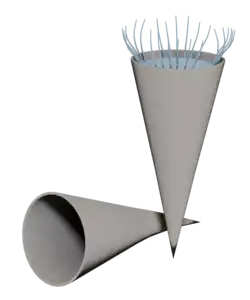 | |
| سینوسپونجیا (Sinospongia) | S. chenjunyuani, S. typica | اسفنجها؟ | ممکن است مانند زیواگان هواینان (Huainan biota) یک جلبکِ کرمشکل (Vermiform) باشد | ||
| تریلوبوزوآ (Trilobozoa indet.) | نامشخص | جانوران | از یک فسیلِ سهپرتوی (Triradial) توصیفنشده شناخته شده است[۳۳] | ||
| ورنانیمالکولا (Vernanimalcula) | V. guizhouensis | دوسوئیان؟ | در ابتدا بهعنوان یک جانور دوسو-تقارن (Bilaterian) تفسیر شد،[۸] سپس مشخص شد که بیشتر شبیه به یک اکریتارکِ نامشخص است،[۹] و دوباره مشخص شد که احتمالاً یک دوسو-تقارن است[۳۴][۱۰] | ||
| ونگهوییا (Wenghuiia) | W. jiangkouensis | کرمهای حلقوی؟ | با اینکه بهنظر میرسد بسیار تکاملیافته باشد، اما احتمالاً قدیمیترین کرم حلقویِ شناختهشده (و همچنین قدیمیترین جانور دوسو-تقارن) است[۳۵] | ||
دیرینهجغرافی
این سازند بر روی یک فلات کربناتی نهشته شده است که لبهٔ آن یک تالاب (Lagoon) را میان پهنههای جزر و مدی در ساحل و اقیانوسِ عمیقتر محصور میکرد. این تالاب بهطور متناوب فاقد اکسیژن یا اوکسینیک (Euxinic - دارای سولفید هیدروژن) بود؛ تغییرات شیمیاییِ درون این تالاب در چرخههای فراوانیِ ایزوتوپی و عنصری در سنگها قابل ردیابی است و احتمالاً در حفظشدگیِ فسیلها نقش داشته است.[۵]
ژئوشیمی
جدیدترین صخرههای دوشانتو کاهش شدیدی را در نسبت ایزوتوپ کربن (۱۳C/۱۲C) نشان میدهند. از آنجایی که بهنظر میرسد این تغییر جهانی بوده است اما زمانِ آن با هیچ رویداد عمدهٔ شناختهشدهٔ دیگری مانند انقراض دستهجمعی مطابقت ندارد، ممکن است نشاندهندهٔ «روابطِ بازخوردی احتمالی میان نوآوریهای فرگشتی و شیمیِ آب دریا» باشد؛ وضعیتی که در آن جانوران (ارگانیسمهای چندسلولی)، کربن را از آب خارج کرده، که این امر غلظت اکسیژن را افزایش داده، و این افزایش سطح اکسیژن نیز بهنوبهٔ خود، فرگشتِ جانوران جدید را امکانپذیر ساخته است.[۳۶]
جستارهای وابسته
پانویس
- ↑ Lee, J. S.; Chao, Y. T. (1924). "Geology of the Gorges Area of the Yangtze (from Ichang to Tzekuei) with special reference to the development of the gorges". Bulletin of the Geological Society of China. 3 (3–4): 351–392. doi:10.1111/j.1755-6724.1924.mp33-4004.x.
- ↑ Xiao, S.; Knoll, A. H. (2000). "Phosphatized Animal Embryos from the Neoproterozoic Doushantuo Formation at Weng'an, Guizhou, South China". Journal of Paleontology. 74 (5): 767–788. doi:10.1666/0022-3360(2000)074<0767:PAEFTN>2.0.CO;2. S2CID 85771456.
- ↑ Awramik, S.M.; McMenamin, D.S.; Yin, C.; Zhao, Z.; Ding, Q.; Zhang, Z. (1985). "Prokaryotic and eukaryotic microfossils from a Proterozoic/Phanerozoic transition in China". Nature. 315 (6021): 655–658. Bibcode:1985Natur.315..655A. doi:10.1038/315655a0.
- ↑ Leiming, Yin; Xunlai, Yuan (8 October 2007). "Radiation of Meso-Neoproterozoic and Early Cambrian protists inferred from the microfossil record of China". Palaeogeography, Palaeoclimatology, Palaeoecology. 254 (1–2): 350–361. Bibcode:2007PPP...254..350L. doi:10.1016/j.palaeo.2007.03.028. Retrieved 16 October 2022.
- 1 2 Jiang, G.; Shi, X.; Zhang, S.; Wang, Y.; Xiao, S. (2011). "Stratigraphy and paleogeography of the Ediacaran Doushantuo Formation (ca. 635-551 Ma) in South China". Gondwana Research. 19 (4): 831–849. Bibcode:2011GondR..19..831J. doi:10.1016/j.gr.2011.01.006.
- ↑ Chuanming, Zhou; Guwei, Xie; McFadden, Kathleen A.; Shuhai, Xiao; Xunlai, Yuan (28 November 2006). "The diversification and extinction of Doushantuo-Pertatataka acritarchs in South China: causes and biostratigraphic significance". Geological Journal. 42 (3–4): 229–262. doi:10.1002/gj.1062. S2CID 129367730.
- ↑ McFadden, Kathleen A.; Xiao, Shu; Chuanming, Zhou; Kowalewski, Michał (September 2009). "Quantitative evaluation of the biostratigraphic distribution of acanthomorphic acritarchs in the Ediacaran Doushantuo Formation in the Yangtze Gorges area, South China". Precambrian Research. 173 (1–4): 170–190. Bibcode:2009PreR..173..170M. doi:10.1016/j.precamres.2009.03.009. Retrieved 16 October 2022.
- 1 2 Chen, Jun-Yuan; Bottjer, David J.; Oliveri, Paola; Dornbos, Stephen Q.; Gao, Feng; Ruffins, Seth; Chi, Huimei; Li, Chia-Wei; Davidson, Eric H. (9 July 2004). "Small Bilaterian Fossils from 40 to 55 Million Years Before the Cambrian". Science (in English). 305 (5681): 218–222. Bibcode:2004Sci...305..218C. doi:10.1126/science.1099213. ISSN 0036-8075. PMID 15178752.
- 1 2 Bengtson, S.; Budd, G. (2004). "Comment on Small bilaterian fossils from 40 to 55 million years before the Cambrian". Science. 306 (5700): 1291a. doi:10.1126/science.1101338. PMID 15550644.
- 1 2 Chen, J.Y.; Oliveri, P.; Davidson, E. & Bottjer, D.J. (2004). "Response to Comment on "Small Bilaterian Fossils from 40 to 55 Million Years Before the Cambrian"". Science. 306 (5700): 1291b. doi:10.1126/science.1102328. PMID 15550644. S2CID 84743928.
- ↑ C.-W. Li; J.-Y. Chen; J. H. Lipps; F. Gao; H.-M. Chi; H.-J. Wu. "Ciliated protozoans from the Precambrian Doushantuo Formation, Wengan, South China". The Rise and Fall of the Ediacaran Biota. pp. 151–156. doi:10.1144/SP286.11.
- ↑ Bailey, Jake V.; Joye, SB; Kalanetra, KM; Flood, BE; Corsetti, FA (2007). "Evidence of giant sulphur bacteria in Neoproterozoic phosphorites". Nature. 445 (7124): 198–201. Bibcode:2007Natur.445..198B. doi:10.1038/nature05457. PMID 17183268. S2CID 4346066.
- ↑ Schiffbauer, J. D.; Xiao, S.; Sharma, K. S.; Wang, G. (2012). "The origin of intracellular structures in Ediacaran metazoan embryos". Geology. 40 (3): 223–226. Bibcode:2012Geo....40..223S. doi:10.1130/G32546.1.
- ↑ Reardon, Sara (6 December 2011). "Dead Fossils Tell the Best Tales". ScienceNOW. Archived from the original on 8 June 2013.
- ↑ Cyranoski, David. "Mining threatens Chinese fossil site that revealed planet's earliest animals". Nature. Retrieved 20 April 2017.
- ↑ Ye, Qin; An, Zhihui; Yu, Yang; Zhou, Ze; Hu, Jun; Tong, Jinnan; Xiao, Shuhai (May 2023). "Phosphatized microfossils from the Miaohe Member of South China and their implications for the terminal Ediacaran biodiversity decline". Precambrian Research. 388 107001. doi:10.1016/j.precamres.2023.107001.
- ↑ Du, Wei; Lian Wang, Xun; Komiya, Tsuyoshi; Zhao, Ran; Wang, Yue (2 January 2017). "Dendroid multicellular thallophytes preserved in a Neoproterozoic black phosphorite in southern China". Alcheringa: An Australasian Journal of Palaeontology. 41 (1): 1–11. doi:10.1080/03115518.2016.1159408.
- ↑ Wang, Ye; Wang, Yue (January 2018). "Globusphyton Wang et al ., an Ediacaran Macroalga, Crept on the Seafloor in the Yangtze Block, South China". Paleontological Research. 22 (1): 64–74. doi:10.2517/2017PR005.
- ↑ Xiao, Shuhai; Knoll, Andrew H.; Yuan, Xunlai; Pueschel, Curt M. (February 2004). "Phosphatized multicellular algae in the Neoproterozoic Doushantuo Formation, China, and the early evolution of florideophyte red algae". American Journal of Botany. 91 (2): 214–227. doi:10.3732/ajb.91.2.214.
- ↑ Xiao, Shuhai; Knoll, Andrew H.; Yuan, Xunlai (November 1998). "Morphological reconstruction of Miaohephyton bifurcatum , a possible brown alga from the Neoproterozoic Doushantuo Formation, South China". Journal of Paleontology. 72 (6): 1072–1086. doi:10.1017/S0022336000027414.
- ↑ Xiao, Shuhai (2004). "New Multicellular Algal Fossils and Acritarchs in Doushantuo Chert Nodules (Neoproterozoic; Yangtze Gorges, South China)" (PDF). Journal of Paleontology. 78 (2): 393–401. ISSN 0022-3360.
- 1 2 3 4 5 6 7 8 9 10 11 12 13 14 15 16 17 18 19 20 Liu, Pengju; Xiao, Shuhai; Yin, Chongyu; Chen, Shouming; Zhou, Chuanming; Li, Meng (January 2014). "Ediacaran Acanthomorphic Acritarchs and Other Microfossils from Chert Nodules of the Upper Doushantuo Formation in the Yangtze Gorges Area, South China". Journal of Paleontology. 88 (S72): 1–139. doi:10.1666/13-009.
- ↑ Zhongying, Zhang (March 1981). "A new Oscillatoriaceae-like filamentous microfossil from the Sinian (late Precambrian) of western Hubei Province, China". Geological Magazine. 118 (2): 201–206. doi:10.1017/S0016756800034397.
- ↑ Dunthorn, Micah; Lipps, Jere H; Stoeck, Thorsten (2010). "Reassessment of the Putative Ciliate Fossils Eotintinnopsis, Wujiangella, and Yonyangella from the Neoproterozoic Doushantuo Formation in China". Acta Protozoologica (in English). 49 (2): 139–144.
- ↑ Zhang, Yuan; Zhang, Xingliang (June 2022). "Non-metazoan affinity of embryo-like Megasphaera fossils from the Ediacaran Zhenba microfossil assemblage". Precambrian Research. 374 106645. doi:10.1016/j.precamres.2022.106645.
- ↑ Shang, Xiaodong; Liu, Pengju; Moczydłowska, Małgorzata (November 2019). "Acritarchs from the Doushantuo Formation at Liujing section in Songlin area of Guizhou Province, South China: Implications for early–middle Ediacaran biostratigraphy". Precambrian Research. 334 105453. doi:10.1016/j.precamres.2019.105453.
- ↑ Antcliffe, Jonathan B.; Callow, Richard H. T.; Brasier, Martin D. (November 2014). "Giving the early fossil record of sponges a squeeze". Biological Reviews. 89 (4): 972–1004. doi:10.1111/brv.12090.
- ↑ Feng, Tang; Chongyu, Yin; Bengtson, Stefan; Pengju, Liu; Ziqiang, Wang; Linzhi, Gao (February 2008). "Octoradiate Spiral Organisms in the Ediacaran of South China". Acta Geologica Sinica - English Edition. 82 (1): 27–34. doi:10.1111/j.1755-6724.2008.tb00321.x.
- ↑ Tang, Feng; Bengtson, Stefan; Wang, Yue; Wang, Xun‐lian; Yin, Chong‐yu (September 2011). "Eoandromeda and the origin of Ctenophora". Evolution & Development. 13 (5): 408–414. doi:10.1111/j.1525-142X.2011.00499.x.
- ↑ Wang, Ye; Wang, Yue; Tang, Feng; Zhao, Mingsheng; Liu, Pei (1 January 2020). "Lifestyle of the Octoradiate Eoandromeda in the Ediacaran". Paleontological Research. 24 (1): 1. doi:10.2517/2019PR001.
- ↑ Yin, Zongjun; Zhu, Maoyan; Davidson, Eric H.; Bottjer, David J.; Zhao, Fangchen; Tafforeau, Paul (24 March 2015). "Sponge grade body fossil with cellular resolution dating 60 Myr before the Cambrian". Proceedings of the National Academy of Sciences. 112 (12). doi:10.1073/pnas.1414577112.
- ↑ Guo, Junfeng; Chen, Yanlong; Song, Zuchen; Zhang, Zhifei; Qiang, Yaqin; Betts, Marissa; Zheng, Yajuan; Yao, Xiaoyong (2020). "Geometric morphometric analysis of Protoconites minor from the Cambrian (Terreneuvian) Yanjiahe Formation in Three Gorges, South China". Palaeontologia Electronica. doi:10.26879/943.
- ↑ Yue, W; Xunlian, W; Yuming, H (June 2008). "Megascopic Symmetrical Metazoans from the Ediacaran Doushantuo Formation in the Northeastern Guizhou, South China". Journal of China University of Geosciences. 19 (3): 200–206. doi:10.1016/S1002-0705(08)60039-4.
- ↑ Petryshyn, Victoria A.; Bottjer, David J.; Chen, Jun-Yuan; Gao, Feng (February 2013). "Petrographic analysis of new specimens of the putative microfossil Vernanimalcula guizhouena (Doushantuo Formation, South China)". Precambrian Research. 225: 58–66. doi:10.1016/j.precamres.2011.08.003.
- ↑ Yue, Wang; Xunlian, Wang (April 2008). "Annelid from the Neoproterozoic Doushantuo Formation in Northeastern Guizhou, China". Acta Geologica Sinica - English Edition. 82 (2): 257–265. doi:10.1111/j.1755-6724.2008.tb00576.x.
- ↑ Condon, D.; Zhu, M.; Bowring, S.; Wang, W.; Yang, A. & Jin, Y. (1 April 2005). "U-Pb Ages from the Neoproterozoic Doushantuo Formation, China". Science. 308 (5718): 95–98. Bibcode:2005Sci...308...95C. doi:10.1126/science.1107765. PMID 15731406. S2CID 11673032.
منابع
- Hagadorn, J. W.; Xiao, S; Donoghue, PC; Bengtson, S; Gostling, NJ; Pawlowska, M; Raff, EC; Raff, RA; et al. (2006). "Cellular and Subcellular Structure of Neoproterozoic Animal Embryos". Science. 314 (5797): 291–294. Bibcode:2006Sci...314..291H. doi:10.1126/science.1133129. PMID 17038620. S2CID 25112751.
- Knoll, A. H., 2003. Life on a Young Planet. Princeton Univ. Press.
- Xiao, S.; Zhang, Y.; Knoll, A. H. (1998). "Three-dimensional preservation of algae and animal embryos in a Neoproterozoic phosphorite". Nature. 391 (6667): 553–558. Bibcode:1998Natur.391..553X. doi:10.1038/35318. S2CID 4350507.
پیوند به بیرون
- سازندهای زمینشناسی چین
- ادیاکاران
- جغرافیای گوئیژو
- پیشینزیستی نو
- زندگی در ادیاکاران